Source material
Capítulo 9 Ciclismo de nutrientes en sistemas acuapónicos
Mathilde Eck, Oliver Körner y M. Haïssam Jijakli
Resumen En acuapónica, los nutrientes se originan principalmente de la alimentación de los peces y las entradas de agua en el sistema. Los peces ingieren una parte sustancial de los piensos y se utilizan para el crecimiento y el metabolismo o se excretan como heces solubles y sólidas, mientras que el resto de los piensos no consumidos se descompone en los depósitos. Mientras que las excreciones solubles están fácilmente disponibles para las plantas, las heces sólidas deben ser mineralizadas por microorganismos para que su contenido nutritivo esté disponible para la absorción de las plantas. Por lo tanto, es más difícil controlar las concentraciones de nutrientes disponibles en acuapónica que en hidroponía. Además, muchos factores, entre otros el pH, la temperatura y la intensidad de la luz, influyen en la disponibilidad de nutrientes y la absorción de las plantas. Hasta hoy, la mayoría de los estudios se han centrado en los ciclos del nitrógeno y el fósforo. Sin embargo, para garantizar un buen rendimiento de los cultivos, es necesario proporcionar a las plantas niveles suficientes de todos los nutrientes clave. Por lo tanto, es esencial comprender y controlar mejor los ciclos de nutrientes en acuapónica.
Palabras clave Aquaponics · Ciclismo de nutrientes · Solubilización · Procesos microbiológicos
- 9.1 Introducción
- 9.2 Origen de los nutrientes
- 9.3 Procesos microbiológicos
- 9.4 Balance de Masa: ¿Qué sucede con los nutrientes una vez que entran en el Sistema Aquapónico?
- 9.5 Conclusiones
- Referencias
—
[M. Eck](mailto: mathilde.eck@uliege.be) · [M. H. Jijakli](mailto: mh.jijakli@uliege.be)
Laboratorio Integral y Urbano de Patología de Plantas, Université de Liège, Agro-Bio Tech, Gembloux, Bélgica
[O. Körner](mailto: koerner@igzev.de)
Leibniz-Instituto de Cultivos Vegetales y Ornamentales (IGZ), Grossbeeren, Alemania
© El Autor (es) 2019 231
S. Goddek y otros (eds.), Aquaponics Food Production Systems, https://doi.org/10.1007/978-3-030-15943-6_9
—
Referencias
Bartelme RP, Oyserman BO, Blom JE, Sepulveda-Villet OJ, Newton RJ (2018) Despojar el suelo: crecimiento vegetal promoviendo oportunidades microbiológicas en acuapónica. Front Microbiol 9 (8). https://doi.org/10.3389/fmicb.2018.00008
Bittsanszky A, Uzinger N, Gyulai G, Mathis A, Junge R, Villarroel M, Kotzen B, Komives T (2016) Suministro de nutrientes de plantas en sistemas acuapónicos. Ecociclos 2 (1720). https://doi.org/10.19040/ ecocycles.v2i2.57
Blancheton JP, Attramadal KJK, Michaud L, d'Orbcastel ER, Vadstein O (2013) Insight sobre la población bacteriana en sistemas acuícolas y su implicación. Aquac Eng 53:30 —39
Boyd CE (2015) Visión general de los piensos de acuicultura: impactos globales del uso de ingredientes. Alimentación Pract Aquac 3—25. https://doi.org/10.1016/B978-0-08-100506-4.00001-5
Bugbee B (2004) Manejo de nutrientes en cultivo hidropónico recirculante. Acta Hortic 648:99 —112. https://doi.org/10.17660/ActaHortic.2004.648.12
Buzby KM, Lin LS (2014) Escalado de sistemas aquapónicos: equilibrando la captación de la planta con la producción de peces. Aquac Eng 63:39 —44. https://doi.org/10.1016/j.aquaeng.2014.09.002
Carsiotis M, Khanna S (1989) Ingeniería genética de nitrificación microbiana. Agencia de Protección Ambiental de Estados Unidos, Laboratorio de Ingeniería de Reducción de Riesgos, Cincinnati
Cerozi BS, Fitzsimmons K (2017) Modelado dinámico de fósforo y balance de masas en un sistema acuapónico. Agric Syst 153:94 —100. https://doi.org/10.1016/j.agsy.2017.01.020
Daims H, Lebedeva EV, Pjevac P, Han P, Herbold C, Albertsen M, Jehmlich N, Palatinszky M, Vierheilig J, Bulaev A, Kirkegaard RH, Von Bergen M, Rattei T, Bendinger B, Nielsen H, Wagner M (2015) Nitrificación completa por _Nitrificación Bacterias spira. Naturaleza 528:504. https://doi.org/ 10.1038/nature16461
Davidson J, Good C, Barrows FT, Welsh C, Kenney PB, Summerfelt ST (2013) Comparando los efectos de alimentar una dieta basada en grano o pescado sobre la calidad del agua, la producción de residuos y el rendimiento de trucha arcoíris Oncorhynchus mykiss dentro de sistemas de recirculación de agua de bajo intercambio. Aquac Eng 52:45 —57. https://doi.org/10.1016/J.AQUAENG.2012.08.001
Delaide B (2017) Estudio sobre los elementos minerales disponibles en acuapónica, su impacto en la productividad de la lechuga y la mejora potencial de su disponibilidad. Tesis doctoral. Gembloux AgroBio Tech, Universidad de Lieja
Delaide B, Goddek S, Gott J, Soyeurt H, Haissam Jijakli M, Lalman J, Junge R (2016) Lechuga (Lactuca sativa L. var. El rendimiento de crecimiento sucrino) en solución acuapónica complementada supera a la hidropónica. Agua 8. https://doi.org/10.3390/w8100467
Delaide B, Delhaye G, Dermience M, Gott J, Soyeurt H, Jijakli MH (2017) Rendimiento de producción de plantas y peces, balance de masa nutritiva, uso de energía y agua de la caja PAFF, un sistema acuapónico a pequeña escala. Aquac Eng 78:130 —139. https://doi.org/10.1016/j.aquaeng.2017. 06.002
Fitzgerald CM, Camejo P, Oshlag JZ, Noguera DR (2015) Comunidades microbianas oxidantes de amoníaco en reactores con nitrificación eficiente a oxígeno poco disuelto. Agua Res 70:38 —51. https://doi.org/10.1016/J.WATRES.2014.11.041
Geay F, Ferraresso S, Zambonino-Infante JL, Bargelloni L, Quentel C, Vandeputte M, Kaushik S, Cahu CL, Mazurais D (2011) Efectos de la sustitución total de la dieta a base de pescado por dieta vegetal sobre el transcriptomo hepático de dos mitsibfamilias de lubina europea (Dicentrarchus labrax) con diferentes tasas con la dieta a base de plantas. BMC Genómica 12:522. https://doi.org/10.1186/1471-2164-12-522
Gentile ME, Lynn Nyman J, Criddle CS (2007) Correlación de patrones de inestabilidad de desnitrificación en comunidades de biorreactores replicados con cambios en la abundancia relativa y los patrones de desnitrificación de poblaciones específicas. ISME J 1:714 —728. https://doi.org/10.1038/ismej.2007.87
Goddek S, Keesman KJ (2018) La necesidad de la tecnología de desalinización para diseñar y dimensionar sistemas acuapónicos de bucle múltiple. Desalinización 428:76 -85. https://doi.org/10.1016/J.DESAL. 2017.11.024
Goddek S, Körner O (2019) Un modelo de simulación completamente integrado de acuapónica multi-bucle: un estudio de caso para el dimensionamiento de sistemas en diferentes ambientes. Agric Syst 171:143
Goddek S, Delaide B, Mankasingh U, Ragnarsdottir KV, Jijakli H, Thorarinsdottir R (2015) Desafíos de la acuapónica sostenible y comercial. Sostenibilidad 7:4199 —4224. https://doi.org/10.3390/su7044199
Goddek S, Schmautz Z, Scott B, Delaide B, Keesman K, Wuertz S, Junge R (2016) Efecto del sobrenadante de lodos de peces anaeróbicos y aeróbicos sobre la lechuga hidropónica. Agronomía 6:37. https://doi.org/10.3390/agronomy6020037
Goddek S, Delaide BPL, Joyce A, Wuertz S, Jijakli MH, Gross A, Eeding EH, Bläser I, Reuter M, Keizer LCP et al (2018) Mineralización de nutrientes y reducción de materia orgánica de lodos basados en RAS en reactores UASB-EGSB secuenciales. Aquac Esp 83:10 —19
Graber A, Junge R (2009) Sistemas aquapónicos: reciclaje de nutrientes a partir de aguas residuales de pescado por producción vegetal. Desalinización 246:147 —156. https://doi.org/10.1016/j.desal.2008.03.048
Guangzhi G (2001) Balance de masa y calidad del agua en tanques de acuicultura. Universidad de las Naciones Unidas, Programa de Capacitación en Pesca, Reyjavik
Hu B, Shen L, Xu X, Zheng P (2011) Oxidación anaeróbica de amonio (anammox) en diferentes ecosistemas naturales. Biochem Soc Trans 39:1811 —1816. https://doi.org/10.1042/BST20110711
Hu Z, Lee JW, Chandran K, Kim S, Brotto AC, Khanal SK (2015) Efecto de especies vegetales sobre la recuperación de nitrógeno en acuapónica. Biorecursos 188:92 —98. https://doi.org/10.1016/j.biortech. 2015.01.013
Hua K, Bureau DP (2012) Explorando la posibilidad de cuantificar los efectos de los ingredientes proteicos vegetales en piensos para peces utilizando métodos basados en meta-análisis y modelos nutricionales. Acuicultura 356— 357:284 —301. https://doi.org/10.1016/J.AQUACULTURE. 2012.05.003
Jorquera M, Martínez O, Maruyama F, Marschner P, de la Luz Mora M (2008) Aplicaciones biotecnológicas actuales y futuras de fitasas bacterianas y bacterias productoras de fitasas. Microbios Environ 23:182 —191. https://doi.org/10.1264/jsme2.23.182
Körner O, Aaslyng JM, Andreassen AU, Holst N (2007) Modelado del microclima para el control dinámico del clima de invernadero. Hortscience 42:272 —279
Körner O, Gutzmann E, Kledal PR (2017) Un modelo dinámico que simula los efectos simbióticos en sistemas acuapónicos. Acta Hortic 1170:309 —316
Kuhn DD, Drahos DD, Marsh L, Flick GJ (2010) Evaluación del producto de bacterias nitrificantes para mejorar la eficacia de la nitrificación en sistemas acuícolas recirculantes. Aquac Eng 43:78 —82. https://doi.org/10.1016/j.aquaeng.2010.07.001
Le Corre KS, Valsami-Jones E, Hobbs P, Parsons SA (2005) Impacto del calcio en el tamaño, forma y pureza del cristal de struvita. J Cryst Crecimiento 283:514 —522. https://doi.org/10.1016/J.JCRYSGRO. 2005.06.012
Lennard WA, Leonard BV (2006) Comparación de tres subsistemas hidropónicos diferentes (lecho de grava, técnica de película flotante y nutriente) en un sistema de prueba Aquaponic. Aquac Int 14:539 —550. https://doi.org/10.1007/s10499-006-9053-2
Letelier-Gordo CO, Dalsgaard J, Suhr KI, Ekmann KS, Pedersen PB (2015) La reducción de la relación proteína:energía (P:E) cambia la solubilización y fermentación de heces de trucha arco iris (Oncorhynchus mykiss). Aquac Esp 66:22 —29
Licamele J (2009) Producción de biomasa y dinámica de nutrientes en un sistema acuapónico. Tesis doctoral. Departamento de Agricultura e Ingeniería de Biosistemas, Universidad de Arizona
Losordo TM, Masser MP, Rakocy J (1998) Sistemas de producción de tanques de acuicultura de recirculación: una visión general de consideraciones críticas. SRAC No. 451, págs. 18—31
Madigan MT, Martinko JM (2007) Biologie des micro-organismes, 11a edn. Pearson Education France, París
Meriac A, Eding EH, Schrama J, Kamstra A, Verreth JAJ (2014) La composición de carbohidratos dietéticos puede cambiar la producción de residuos y la carga de biofiltro en sistemas acuícolas de recirculación. Acuicultura 420— 421:254 —261. https://doi.org/10.1016/j.aquaculture.2013.11.018
Michaud L, Blancheton JP, Bruni V, Piedrahita R (2006) Efecto del carbono orgánico particulado sobre poblaciones bacterianas heterotróficas y eficiencia de nitrificación en filtros biológicos. Aquac Eng 34:224 —233. https://doi.org/10.1016/j.aquaeng.2005.07.005
Munguia-Fragozo P, Alatorre-Jacome O, Rico-García E, Torres-Pacheco I, Cruz-Hernández A, Ocampo-Velazquez RV, Garcia-Trejo JF, Guevara-González RG (2015) Perspectiva para sistemas acuapónicos: tecnologías «ómicas» para el análisis de comunidades microbianas. Biomed Res Int 2015:1. https://doi.org/10.1155/2015/480386
Neto MR, Ostrensky A (2015) Estimación de la carga de nutrientes en los residuos de Nilo Tilapia Oreochromis niloticus (L.) criados en jaulas en condiciones de clima tropical. Aquac Res 46:1309 —1322. https://doi.org/10.1111/are.12280
Orozco-Mosque MC, Rocha-Granados MC, Glick BR, Santoyo G (2018) Ingeniería microbioma para mejorar el biocontrol y el mecanismo de promoción del crecimiento vegetal. Microbiol Res en prensa
Palm HW, Knaus U, Appelbaum S, Goddek S, Strauch SM, Vermeulen T, Haїssam Jijakli M, Kotzen B (2018) Hacia la acuapónica comercial: una revisión de sistemas, diseños, escalas y nomenclatura. Aquac Int 26:813 —842
Prabhu AS, Fageria NK, Berni RF, Rodrigues FA (2007) Fósforo y enfermedad vegetal. En: Datnoff LE, Elmer WH, Huber DM (eds) Nutrición mineral y enfermedad vegetal. The American Fitopatological Society, St. Paul, pp 45—55
Rafiee G, Saad CR (2005) Ciclo de nutrientes y producción de lodos durante diferentes etapas del crecimiento rojo de Tilapia (Oreochromis sp.) en un sistema acuícola recirculante. Acuicultura 244:109 —118. https://doi.org/10.1016/J.AQUACULTURE.2004.10.029
Rakocy JE, Shultz RC, Bailey DS, Thoman ES (2004) Producción acuapónica de Tilapia y albahaca: comparando un sistema de cultivo por lotes y escalonado. Acta Hortic 648:63 —69. https://doi.org/10. 17660/Actahortic.2004.648.8
Rakocy JE, Masser MP, Losordo TM (2006) Sistemas de producción de tanques de acuicultura de recirculación: acuapónica - integración del cultivo de peces y plantas. SRAC Publ South Reg Aquac Cent 16. https://doi.org/454
Randall D, Tsui TK (2002) Toxicidad por amoniaco en peces. Mar Pollut Bull 45:17 -23. https://doi.org/10. 1016/S0025-326X (02) 00227-8
Resh HM (2013) Producción de alimentos hidropónicos: una guía definitiva para el jardinero doméstico avanzado y el cultivador hidropónico comercial, 7th edn. CRC Press, Boca Raton
Roosta HR, Hamidpour M (2011) Efectos de la aplicación foliar de algunos macro y micronutrientes en plantas de tomate en sistemas acuapónicos e hidropónicos. Sci Hortic 129:396 —402. https://doi.org/ 10.1016/J.SCIENTA.2011.04.006
Roosta HR, Hamidpour M (2013) Contenido de nutrientes minerales de plantas de tomate en sistemas acuapónicos e hidropónicos: efecto de la aplicación foliar de algunos macro y micronutrientes. J Tuerca vegetal 36:2070 —2083. https://doi.org/10.1080/01904167.2013.821707
Ru D, Liu J, Hu Z, Zou Y, Jiang L, Cheng X, Lv Z (2017) Mejora del rendimiento acuapónico a través de la adición de micronutrientes y macro. Environ Sci Pollut Res 24:16328-16335. https://doi.org/10.1007/s11356-017-9273-1
Rurangwa E, Verdegem MCJ (2013) Microorganismos en sistemas acuícolas de recirculación y su manejo. Rev Aquac 7:117 —130. https://doi.org/10.1111/raq.12057
Schmautz Z, Graber A, Mathis A, Griessler Bulc T, Junge R (2015) Producción de tomate en sistema aquapónico: balance de masa y reciclaje de nutrientes (resumen)
Schmautz Z, Loeu F, Liebisch F, Graber A, Mathis A, Bulc TG, Junge R (2016) Productividad y calidad del tomate en acuapónica: comparación de tres métodos hidropónicos. Agua 8:1 —22. https://doi.org/10.3390/w8110533
Schmautz Z, Graber A, Jaenicke S, Goesmann A, Junge R, Smits THM (2017) Diversidad microbiana en diferentes compartimentos de un sistema acuapónico. Arch Microbiol 199:613. https://doi.org/10. 1007/s00203-016-1334-1
Schneider O, Sereti V, Eding EH, Verreth JAJ (2004) Análisis de flujos de nutrientes en sistemas integrados de acuicultura intensiva. Aquac Eng 32:379-401. https://doi.org/10.1016/j.aquaeng.2004. 09.001
Seawright DE, Stickney RR, Walker RB (1998) Dinámica de nutrientes en sistemas hidropónicos integrados de acuicultura. Acuicultura 160:215 —237
Shoda M (2014) Nitrificación heterotrófica y desnitrificación aeróbica por Alcaligenes faecalis. J Biosci Bioeng 117:737 —741. https://doi.org/10.5772/68052
Somerville C, Stankus A, Lovatelli A (2014) Producción de alimentos acuapónicos a pequeña escala. Cultivo integrado de peces y plantas. Organización de las Naciones Unidas para la Agricultura y la Alimentación, Roma
Sonneveld C, Voogt W (2009) Nutrición vegetal de cultivos de invernadero. Springer, Dordrecht/ Heidelberg/Londres/Nueva York
Sugita H, Nakamura H, Shimada T (2005) Comunidades microbianas asociadas con materiales filtrantes en sistemas de recirculación de peces de agua dulce. Acuicultura 243:403. https://doi.org/10.1016/j.aquaculture.2004.09.028
Suhl J, Dannehl D, Kloas W, Baganz D, Jobs S, Scheibe G, Schmidt U (2016) Acuapónica avanzada: evaluación de la producción intensiva de tomate en acuapónica vs. hidropónica convencional. Agric Water Manag 178:335 —344. https://doi.org/10.1016/j.agwat.2016.10.013
Tacon AGJ, Metian M (2008) Panorama global sobre el uso de harina de pescado y aceite de pescado en acuafeeds industrialmente compuestos: tendencias y perspectivas de futuro. Acuicultura 285:146 —158. https://doi.org/10.1016/j.aquaculture.2008.08.015
Timmons MB, Ebeling JM (2013) Recirculación de la acuicultura. Ithaca Publishing, Nueva York
Turcios AE, Papenbrock J (2014) Tratamiento sostenible de efluentes acuícolas: ¿qué podemos aprender del pasado para el futuro? Sostenibilidad 6:836 —856. https://doi.org/10.3390/su6020836 van Lier JB, Mahmoud N, Zeeman G (2008) En: Henze M, van Loosdrecht MCM, Ekama GA, Brdjanovic D (eds) Tratamiento anaeróbico de aguas residuales, en: tratamiento biológico de aguas residuales: principios, modelización y diseño. Editorial IWA, Londres. ISBN: 9781843391883
van Rijn J (2013) Tratamiento de residuos en sistemas acuícolas de recirculación. Aquac Eng 53:49 —56. https://doi.org/10.1016/J.AQUAENG.2012.11.010
Wongkiew S, Hu Z, Chandran K, Lee JW, Khanal SK (2017) Transformaciones de nitrógeno en sistemas acuapónicos: una revisión. Aquac Esg 76:9-19. https://doi.org/10.1016/j.aquaeng.2017.01. 004
Xu G, Fan X, Miller AJ (2012) Asimilación de nitrógeno vegetal y eficiencia de uso. Annu Rev Plant Biol 63:153 —182. https://doi.org/10.1146/annurev-arplant-042811-105532
Yildiz HY, Robaina L, Pirhonen J, Mente E, Domínguez D, Parisi G (2017) Bienestar de los peces en sistemas acuapónicos: su relación con la calidad del agua con énfasis en piensos y heces — una revisión. Agua 9. https://doi.org/10.3390/w9010013
Yogev U, Barnes A, Gross A (2016) Análisis de nutrientes y balance energético para un modelo conceptual de tres bucles fuera de la red, acuapónica. Agua 8. https://doi.org/10.3390/w8120589
Zekki H, Gauthier L, Gosselin A (1996) Crecimiento, productividad y composición mineral de tomates de invernadero cultivados hidropónicamente, con o sin reciclaje de soluciones nutritivas. J Am Soc Hortic Sci 121:1082 —1088
Zou Y, Hu Z, Zhang J, Xie H, Guimbaud C, Fang Y (2016) Efectos del pH sobre las transformaciones de nitrógeno en la acuapónica basada en medios. Bioresour Technol 210:81-87. https://doi.org/10.1016/ J.BIORTECH.2015.12.079
Acceso abierto Este capítulo está licenciado bajo los términos de la Licencia Creative Commons Attribution 4.0 International (http://creativecommons.org/licenses/by/4.0/), que permite el uso, uso compartido, adaptación, distribución y reproducción en cualquier soporte o formato, como siempre y cuando dé crédito apropiado al autor o autores originales y a la fuente, proporcione un enlace a la licencia de Creative Commons e indique si se han realizado cambios.
Las imágenes u otro material de terceros en este capítulo se incluyen en la licencia Creative Commons del capítulo, a menos que se indique lo contrario en una línea de crédito del material. Si el material no está incluido en la licencia Creative Commons del capítulo y su uso previsto no está permitido por la normativa legal o excede el uso permitido, deberá obtener el permiso directamente del titular de los derechos de autor.
Aquaponics Food Production Systems contributors.
Ver la edición original · Creative Commons Attribution 4.0
Esta edición de la biblioteca se ha reformateado y consolidado a partir de la fuente original.
9.1 Introducción
Original publication · Publicado por primera vez en FarmHub Learn · Aquaponics Food Production Systems
Los sistemas Aquaponic ofrecen varias ventajas a la hora de producir alimentos de forma innovadora y sostenible. Además de los efectos sinérgicos del aumento de la concentración aérea de COSub2/sub para cultivos de invernadero y la disminución del consumo total de energía térmica al cultivar peces y cultivos en el mismo espacio (Körner et al. 2017), la acuapónica tiene dos ventajas principales para el ciclo de nutrientes. En primer lugar, la combinación de un sistema acuícola recirculante con la producción hidropónica evita la descarga de efluentes de acuicultura enriquecidos en nitrógeno y fósforo disueltos en aguas subterráneas ya contaminadas (Buzby y Lin 2014; Guangzhi 2001; van Rijn 2013), y en segundo lugar, permite la fertilización de los cultivos sin suelo con lo que puede considerarse una solución orgánica (Goddek et al. 2015; Schneider et al. 2004; Yogev et al. 2016) en lugar de utilizar fertilizantes de origen mineral elaborados a partir de recursos naturales que agotan (Schmautz et al. 2016; Cap. 2). Además, la acuapónica produce un crecimiento vegetal comparable en comparación con la hidropónica convencional a pesar de las concentraciones más bajas de la mayoría de nutrientes en el agua acuícola (Graber y Junge 2009; Bittsanszky et al. 2016; Delaide et al. 2016), y la producción puede ser incluso mejor que en el suelo (Rakocy et al. 2004). Se cree que el aumento de las concentraciones de COSub2/sub en el ambiente aéreo y los cambios en los biomas de la zona radicular son las principales razones de ello. Además, se ha informado que el contenido mineral y la calidad nutricional de los tomates cultivados acuapónicamente son equivalentes o superiores al contenido mineral de los cultivados convencionalmente (Schmautz et al. 2016).
A pesar de tener dos activos atractivos (es decir, el reciclaje de efluentes de acuicultura y el uso de fertilizantes orgánicos), el uso de efluentes acuícolas aumenta el desafío de monitorear los nutrientes dentro de la solución. De hecho, es más difícil controlar la composición de una solución donde los nutrientes se originan de una degradación biológica de la materia orgánica que seguir la evolución de la concentración de los nutrientes en una solución hidropónica dosificada con precisión basada en compuestos minerales (Bittsanszky et al. 2016; Timmons y Ebeling 2013). Además, las necesidades nutricionales de una planta varían durante el período de crecimiento de acuerdo con las etapas fisiológicas, y es necesario satisfacer estas necesidades para maximizar los rendimientos (Bugbee 2004; Zekki et al. 1996; Cap. 4).
Para reciclar efluentes de acuicultura para producir biomasa vegetal, es necesario optimizar las tasas de reciclaje de fósforo y nitrógeno (Goddek et al. 2016; Graber y Junge 2009; Cap. 1). Varios factores pueden influir en esto, como las especies de peces, la densidad de los peces, la temperatura del agua, el tipo de plantas y la comunidad microbiana (ibíd.). Por lo tanto, es de suma importancia comprender el funcionamiento de los ciclos nutritivos en acuapónica (Seawright et al. 1998). Este capítulo tiene como objetivo explicar los orígenes de los nutrientes en un sistema acuapónico, describir los ciclos de nutrientes y analizar las causas de las pérdidas de nutrientes.
9.2 Origen de los nutrientes
Original publication · Publicado por primera vez en FarmHub Learn · Aquaponics Food Production Systems
Las principales fuentes de nutrientes de un sistema acuapónico son el alimento para peces y el agua añadida (que contiene Mg, Ca, S) (véase Sect. 9.3.2.) en el sistema (Delaide et al. 2017; Schmautz et al. 2016) según se detalla más detalladamente en Cap. 13. Con respecto a los piensos para peces, existen dos tipos principales: los piensos a base de harina de pescado y los piensos a base de plantas. La harina de pescado es el tipo clásico de alimento utilizado en la acuicultura, donde los lípidos y las proteínas dependen de la harina de pescado y el aceite de pescado (Geay et al. 2011). Sin embargo, desde hace algún tiempo, se han planteado preocupaciones sobre la sostenibilidad de dichos piensos y se ha llamado la atención hacia las dietas basadas en plantas (Boyd 2015; Davidson et al. 2013; Hua y Bureau 2012; Tacon y Metian 2008). Un metaanálisis realizado por Hua y Bureau (2012) reveló que el uso de proteínas vegetales en la alimentación de peces puede influir en el crecimiento de peces si se incorpora en altas proporciones. De hecho, las proteínas vegetales pueden tener un impacto en la digestibilidad y los niveles de factores antinutricionales del alimento. En particular, el fósforo procedente de plantas y, por lo tanto, en forma de fitatos no beneficia, por ejemplo, el salmón, la trucha y varias otras especies de peces (Timmons y Ebeling 2013). No es sorprendente que esta observación dependa en gran medida de las especies de peces y de la calidad de los ingredientes (Hua y Bureau 2012). Sin embargo, poco se sabe sobre el impacto de la composición variable de los piensos para peces en los rendimientos de los cultivos (Yildiz et al. 2017).
El alimento clásico para peces está compuesto por 6-8 macro ingredientes y contiene entre un 6% y un 8% de nitrógeno orgánico, un 1,2% de fósforo orgánico y un 40— 45% de carbono orgánico (Timmons y Ebeling 2013) con alrededor del 25% de proteína para peces herbívoros u omnívoros y alrededor del 55% de proteína para peces carnívoros (Boyd 2015). Los lípidos también pueden ser peces o plantas (Boyd 2015).
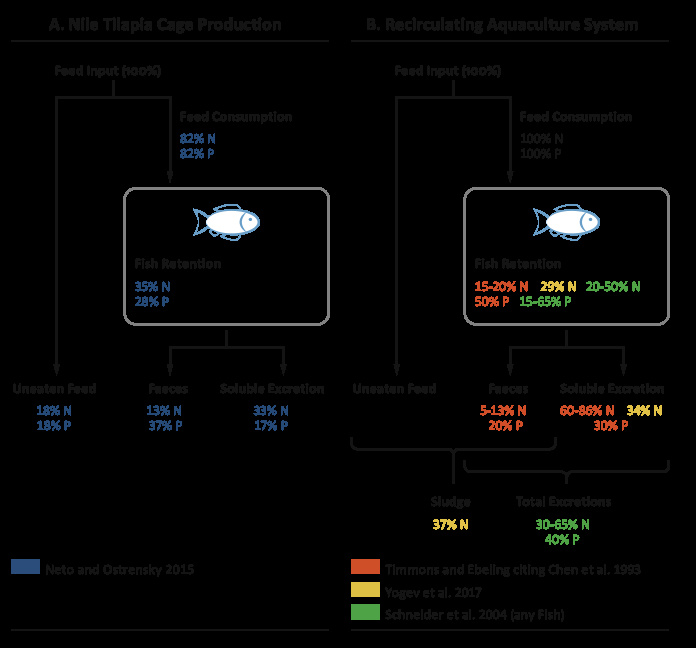
Fig. 9.1 Flujo ambiental de nitrógeno y fósforo en% para (a) producción de jaulas Tilapia del Nilo (después de Neto y Ostrensky 2015) y (b) producción de RAS (a partir de diversas fuentes)
Una vez añadidos los piensos para peces al sistema, los peces consumen una parte sustancial de ellos y se utilizan para el crecimiento y el metabolismo o se excretan como heces solubles y sólidas, mientras que el resto de los piensos dados se desintegran en los tanques (Goddek et al. 2015; Schneider et al. 2004) (Fig. 9.1). En este caso, las sobras de pienso y los productos metabólicos se disuelven parcialmente en el agua acuapónica, lo que permite a las plantas absorber nutrientes directamente de la solución acuapónica (Schmautz et al. 2016).
En la mayoría de los sistemas de cultivo (Caps. 7 y 8, se pueden añadir nutrientes para complementar la solución acuapónica y garantizar una mejor correspondencia con las necesidades de las plantas (Goddek et al. 2015). De hecho, incluso cuando el sistema está acoplado, es posible agregar hierro o potasio (que a menudo faltan) sin dañar los peces (Schmautz et al. 2016).
9.2.1 Sobras de piensos para peces y heces de pescado
Idealmente, todo el alimento dado debe ser consumido por el pescado (Fig. 9.1). Sin embargo, una pequeña parte (menos del 5% (Yogev et al. 2016)) a menudo se deja descomponer en el sistema y contribuye a la carga nutritiva del agua (Losordo et al. 1998; Roosta y Hamidpour 2013; Schmautz et al. 2016), consumiendo oxígeno disuelto y liberando dióxido de carbono y amoníaco (Losordo et al. 1998) , entre otras cosas. La composición de los restos de alimento para peces depende de la composición del alimento.
Lógicamente, la composición de las heces de pescado depende de la dieta de los peces, lo que también influye en la calidad del agua (Buzby y Lin 2014; Goddek et al. 2015). Sin embargo, la retención de nutrientes en la biomasa de los peces depende en gran medida de las especies de peces, los niveles de alimentación, la composición de los piensos, el tamaño de los peces y la temperatura del sistema (Schneider et al. 2004). A temperaturas más altas, por ejemplo, el metabolismo de los peces se acelera y por lo tanto se traduce en más nutrientes contenidos en la fracción sólida de las heces (Turcios y Papenbrock 2014). La proporción de nutrientes excretados también depende de la calidad y digestibilidad de la dieta (Buzby y Lin 2014). La digestibilidad del alimento para peces, el tamaño de las heces y la relación de sedimentación deben considerarse cuidadosamente para garantizar un buen equilibrio en el sistema y maximizar los rendimientos de los cultivos (Yildiz et al. 2017). De hecho, si bien es prioritario que los piensos para peces se elijan cuidadosamente para adaptarse a las necesidades de los peces, los componentes de los piensos también podrían seleccionarse para satisfacer las necesidades de las plantas cuando no suponga ninguna diferencia con los peces (Goddek et al. 2015; Licamele 2009; Seawright et al. 1998).
9.3 Procesos microbiológicos
Original publication · Publicado por primera vez en FarmHub Learn · Aquaponics Food Production Systems
9.3.1 Solubilización
La solubilización consiste en la descomposición de las moléculas orgánicas complejas que componen los residuos de pescado y alimentan las sobras en nutrientes en forma de minerales iónicos que las plantas pueden absorber (Goddek et al. 2015; Somerville et al. 2014). Tanto en acuicultura (Sugita et al. 2005; Turcios y Papenbrock 2014) como en acuapónica, la solubilización se realiza principalmente por bacterias heterotróficas (van Rijn 2013; cap. 6) que aún no han sido identificadas completamente (Goddek et al. 2015). Algunos estudios han comenzado a descifrar la complejidad de estas comunidades bacterianas (Schmautz et al. 2017). En la acuicultura actual, las bacterias más observadas son Rhizobium sp., Flavobacterium sp., Sphingobacterium sp., Comamonas sp., Acinetobacter sp., Aeromonas sp. y Pseudomonas sp. (Munguia-Fragozo y otros 2015; Sugita y otros 2005). Un ejemplo del papel principal de las bacterias en la acuapónica podría ser la transformación de fitatos insolubles en fósforo (P) puesto a disposición para la absorción de las plantas a través de la producción de fitasas que están particularmente presentes en γ-proteobacteria (Jorquera et al. 2008). (Es necesario realizar más investigaciones en este ámbito). Otros nutrientes que P también pueden ser atrapados como sólidos y evacuados del sistema con el lodo. Así, se están haciendo esfuerzos para remineralizar este lodo con reactores UASB-EGSB a fin de reinyectar nutrientes en el sistema acuapónico (Delaide 2017; Goddek et al. 2016; Cap. 10. Además, no se liberan diferentes minerales a la misma velocidad, dependiendo de la composición del pienso (Leteliergordo et al. 2015), lo que lleva a un seguimiento más complicado de su concentración en la solución acuapónica (Seawright et al. 1998).
9.3.2 Nitrificación
La principal fuente de nitrógeno en un sistema acuapónico es el alimento para peces y las proteínas que contiene (Goddek et al. 2015; Ru et al. 2017; Wongkiew et al. 2017; Yildiz et al. 2017). Idealmente, el 100% de este alimento debe ser consumido por los peces. Sin embargo, se ha observado que los peces sólo utilizan alrededor del 30% del nitrógeno contenido en el alimento dado (Rafiee y Saad 2005). El alimento ingerido se utiliza parcialmente para la asimilación y el metabolismo (Wongkiew et al. 2017), mientras que el resto se excreta ya sea a través de las branquias o como orina y heces (Ru et al. 2017). El nitrógeno que se excreta a través de las branquias es principalmente en forma de amoníaco, NHSub3/sub (Wongkiew et al. 2017; Yildiz et al. 2017), mientras que la orina y las heces están compuestas por nitrógeno orgánico (Wongkiew et al. 2017) que se transforma en amoníaco por proteasas y deaminasas (Sugita et al. 2005). En general, los peces excretan nitrógeno bajo la forma de TAN, es decir, NHSub3/sub y NHSub4/SubSUP+/SUP. El equilibrio entre NHSub3/sub y NHSub4/SubSUP+/SUP depende principalmente del pH y la temperatura. El amoníaco es el principal desperdicio producido por el catabolismo de los peces de las proteínas alimentarias (Yildiz et al. 2017).
La nitrificación es un proceso de dos pasos durante el cual el amoníaco NHsub3/sub o NHsub4/subsup+/Sup de amonio excretado por los peces se transforma primero en nitrito NoSub2/SubSUP-/SUP y luego en nitrato NOSub3/Subsup-/Sup por bacterias autotróficas aeróbicas quimiosintéticas específicas. Se requiere una alta disponibilidad de oxígeno disuelto ya que la nitrificación consume oxígeno (Carsiotis y Khanna 1989; Madigan y Martinko 2007; Shoda 2014). El primer paso de esta transformación se lleva a cabo por bacterias oxidantes de amoníaco (AOB) como Nitrosomonas, Nitrosococcus, Nitrosospira, Nitrosolobus y Nitrosovibrio. El segundo paso es realizado por bacterias oxidantes de nitritos (NOB) como Nitrobacter, Nitrococcus, Nitrospira y Nitrospina (Rurangwa y Verdegem 2013; Timmons y Ebeling 2013; Wongkiew et al. 2017). Nitrospira se deduce actualmente como un nitrificador completo, es decir, que participa en la producción de nitrito y nitrato (Daims et al. 2015). Las mismas bacterias se pueden encontrar tanto en la acuicultura como en los sistemas acuapónicos (Wongkiew et al. 2017). Estas bacterias se encuentran principalmente en biofilms fijados a los medios que componen el biofiltro, pero también se pueden observar en los otros compartimentos del sistema (Timmons y Ebeling 2013).
La nitrificación es de suma importancia en la acuapónica, ya que el amoníaco y el nitrito son bastante tóxicos para los peces: 0,02—0,07 mg/L de amoníaco-nitrógeno son suficientes para observar daños en peces de agua tibia, y el nitrito-nitrógeno debe mantenerse por debajo de 1 mg/L (Losordo et al. 1998; Timmons y Ebeling 2013). El amoníaco afecta el sistema nervioso central de los peces (Randall y Tsui 2002; Timmons y Ebeling 2013), mientras que el nitrito induce problemas con la fijación del oxígeno (Losordo et al. 1998). Sin embargo, el nitrato — nitrógeno es tolerado por los peces hasta 150—300 mg/L (Goddek et al. 2015; Graber y Junge 2009; Yildiz et al. 2017).
La nitrificación se realiza principalmente en biofiltros (Losordo et al. 1998; Timmons y Ebeling 2013). Por lo tanto, al iniciar un sistema, se recomienda ejecutar el sistema sin peces para permitir que se establezca la población de bacterias nitrificantes de crecimiento lento (Timmons y Ebeling 2013; Wongkiew et al. 2017). También es necesario evitar, en la medida de lo posible, la presencia de materia orgánica en los biofiltros para evitar el crecimiento de bacterias heterotróficas altamente competitivas (Timmons y Ebeling 2013). Alternativamente, se pueden agregar mezclas comerciales de bacterias nitrificantes al sistema, antes de su almacenamiento, para acelerar el proceso de colonización (Kuhn et al. 2010). Sin embargo, también existen pequeños sistemas acuapónicos sin biofiltro. En estos sistemas, las bacterias nitrificantes forman biofilms de las superficies disponibles (por ejemplo, paredes de compartimentos hidropónicos, medios inertes cuando se utiliza la técnica del lecho de medios) (Somerville et al. 2014).
9.4 Equilibrio de Masa: ¿Qué sucede con los Nutrientes una vez que entran en el Sistema Aquapónico?
Original publication · Publicado por primera vez en FarmHub Learn · Aquaponics Food Production Systems
Contexto ## 9.4.1
El funcionamiento de los sistemas acuapónicos se basa en un equilibrio dinámico de los ciclos nutritivos (Somerville et al. 2014). Por lo tanto, es necesario comprender estos ciclos para optimizar la gestión de los sistemas. Las plantas que crecen hidropónicamente tienen requisitos específicos, que deben cumplirse durante sus diferentes etapas de cultivo (Resh 2013). Por lo tanto, las concentraciones de nutrientes en los diferentes compartimentos del sistema deben ser monitoreadas de cerca, y los nutrientes deben complementarse para evitar deficiencias (Resh 2013; Seawright et al. 1998), ya sea en el agua del sistema o mediante aplicación foliar (Roosta y Hamidpour 2011).
Según Delaide et al. (2016), en algunos casos, complementar una solución acuapónica con nutrientes minerales para alcanzar las mismas concentraciones de nutrientes que en hidroponía podría dar lugar a mayores rendimientos que los obtenidos en hidroponía. El primer paso a dar hacia un sistema equilibrado es el diseño correcto y el tamaño relativo de los compartimentos (Buzby y Lin 2014). Si el compartimento hidropónico es demasiado pequeño en comparación con los tanques de peces, entonces los nutrientes se acumularán en el agua y podrían alcanzar niveles tóxicos. La tasa de alimentación (es decir, la cantidad de alimento para peces en el sistema basada en la superficie de cultivo de la planta y el tipo de planta) se utiliza a menudo para el primer dimensionamiento del sistema (Rakocy et al. 2006; Somerville et al. 2014). Sin embargo, según Seawright et al. (1998), no es posible alcanzar una relación planta/pescado que permita una coincidencia óptima de las necesidades de las plantas si sólo se utilizan piensos para peces como insumo. Para asegurarse de que el sistema está bien equilibrado y funciona correctamente, los métodos de monitoreo generalmente se basan en el ciclo del nitrógeno (Cerozi y Fitzsimmons 2017; Somerville et al. 2014), pero para garantizar un funcionamiento óptimo del sistema, es necesario monitorear más de cerca el equilibrio de los demás macronutrientes ( N, P, K, Ca, Mg, S) y micronutrientes (Fe, Zn, B, Mn, Mo, Cu) (Resh 2013; Somerville et al. 2014; Sonneveld y Voogt 2009). Estudios recientes (Delaide et al. (2017), Schmautz et al. (2015, 2016)) han comenzado a abordar este tema. Schmautz et al. (2015, 2016) compararon el impacto de tres diseños hidropónicos diferentes (es decir, técnica de película nutritiva (NFT), balsa flotante y riego por goteo) en la absorción de nutrientes de tomates aquapónicos. El riego por goteo fue el sistema que produjo un poco mejores rendimientos con los tomates. El contenido mineral de los frutos (P, K, Ca, Mg) fue equivalente a los valores convencionales, aunque el contenido de hierro y zinc fue mayor. Sin embargo, las hojas tuvieron niveles más bajos de P, K, S, Ca, Mg, Fe, Cu y Zn que en la agricultura convencional. Delaide et al. (2016) siguieron los ciclos de macro y micronutrientes en un sistema aquapónico acoplado. Observaron que K, P, Fe, Cu, Zn, Mn y Mo faltaban en su solución acuapónica, mientras que N, Ca, B y Na se acumularon rápidamente. Graber y Junge (2009) señalaron que su solución acuapónica contenía tres veces menos nitrógeno y diez veces menos fósforo que una solución hidropónica. En cuanto al potasio (K), fue 45 veces menor en comparación con la hidroponía. Sin embargo, obtuvieron rendimientos similares a pesar de que la calidad fue más pobre debido a la falta de potasio (K).
Factores que influyen en los ciclos de nutrientes
La intensidad de la luz, la temperatura de la zona radicular, la temperatura del aire, la disponibilidad de nutrientes, la etapa de crecimiento y la tasa de crecimiento influyen en la absorción de nutrientes de una planta (Buzby y Lin 2014). Los experimentos realizados por Schmautz et al. (2016) y Lennard y Leonard (2006) mostraron que el método hidropónico también podría desempeñar un papel en la capacidad de absorción de nutrientes de una planta, por lo que es necesario adaptar el sistema de cultivo al tipo de hortalizas que se cultivan. NFT y DWC (cultivo de aguas profundas — balsa) son, por lo tanto, adecuados para verduras frondosas, mientras que el riego por goteo en losas de lana de roca es más adecuado para verduras afrutadas (Resh 2013).
9.4.2 Ciclos de macronutrientes
**Carbono (C) **
El carbono se suministra a los peces a través de la alimentación (Timmons y Ebeling 2013) y a las plantas a través de la fijación COSub2/sub. Los peces pueden utilizar el 22% del carbono contenido en los piensos para aumentar la biomasa y el metabolismo. El resto del carbono ingerido se expira bajo la forma de COSub2/sub (52%) o se excreta en forma disuelta (0,7— 3%) y sólida (25%) (Timmons y Ebeling 2013). El COSub2/sub caducado también puede ser utilizado por las plantas para su propia fuente de carbono (Körner et al. 2017). La parte no consumida del carbono alimentario se deja descomponer en el sistema. El tipo de carbohidratos que se encuentran en los piensos para peces (por ejemplo, polisacáridos de almidón o no almidón) también puede influir en la digestibilidad del alimento y en la biodegradabilidad de los residuos en una acuicultura o sistema acuapónico (Meriac et al. 2014).
**Nitrógeno (N) **
El nitrógeno es absorbido por las plantas en forma de nitrato o amonio (Sonneveld y Voogt 2009; Xu et al. 2012) dependiendo de la concentración y fisiología de la planta (Fink y Feller 1998 citados por Wongkiew et al. 2017). Las asociaciones entre plantas y microorganismos no deben pasarse por alto, ya que las plantas afectan la presencia de los microorganismos en la acuapónica, y los microorganismos pueden desempeñar un papel importante en la capacidad de absorción de nitrógeno de las plantas (Wongkiew et al. 2017). La absorción de nitrógeno por las plantas se ve afectada por la concentración de dióxido de carbono ambiental (Zhang et al. 2008 citado por Wongkiew et al. 2017).
**Fósforo (P) **
El fósforo es uno de los elementos esenciales para el crecimiento de la planta y puede ser absorbido bajo su forma iónica de ortofosfato (HSub2/SubpoSub4/Subsup-/SUP, HPOSub4/Subsup2-/SUP, PoSub4/Subsup3-/SUP) (Prabhu et al. 2007; Resh 2013). Poco se sabe sobre la dinámica del fósforo en la acuapónica. El principal aporte de fósforo en el sistema es el alimento para peces (Cerozi y Fitzsimmons 2017; Delaide et al. 2017; Schmautz et al. 2015), y en sistemas no suplementados (Cap. 7, el fósforo tiende a ser limitante y por lo tanto puede impedir el crecimiento de las plantas (Graber y Junge, 2009; Seawright y otros, 1998). Según Rafiee y Saad (2005), los peces pueden utilizar hasta el 15% del fósforo contenido en el alimento. En un sistema de cultivo de lechuga, Cerozi y Fitzsimmons (2017) notaron que la cantidad de fósforo proporcionado por el alimento para peces puede ser suficiente o insuficiente dependiendo de la etapa de crecimiento. Hasta el 100% del fósforo presente en el agua de los peces puede ser reciclado en la biomasa vegetal, dependiendo del diseño del sistema. Graber y Junge (2009) observaron un 50% de reciclaje, mientras que Schmautz et al. (2015) reportaron que 32% del fósforo se podía encontrar en el fruto y 28% en las hojas. La solubilidad del fósforo depende del pH, y un pH mayor favorecerá la precipitación del fósforo, por lo que no está disponible para las plantas (Yildiz et al. 2017). El fósforo puede precipitarse como estruvita (fosfato de magnesio amonio) (Le Corre et al. 2005) y/o hidroxiapatita (Cerozi y Fitzsimmons 2017; Goddek et al. 2015). Estos complejos insolubles se eliminan del sistema a través de lodos sólidos de peces. Schneider et al. (2004) informaron que entre el 30 y el 65% del fósforo contenido en los piensos para peces sigue sin estar disponible para las plantas, ya que se fija en las excreciones sólidas que luego se eliminan mediante filtración mecánica. Yogev et al. (2016) estimaron que esta pérdida puede ser de hasta el 85%. Una opción para evitar esta pérdida masiva de P a través de lodos sólidos es añadir un compartimento de digestión al sistema aquapónico. Durante la digestión aeróbica o anaeróbica, la P se libera en el digestato y podría reintroducirse en el agua circulante (Goddek et al. 2016).
**Potasio (K) **
Delaide et al. (2017) encontraron que la principal fuente de K en su sistema era el alimento para peces. Los peces pueden utilizar hasta el 7% de la K contenida en los piensos para peces (Rafiee y Saad 2005). Sin embargo, el potasio no es necesario para los peces, lo que conduce a una composición baja de potasio del alimento para peces y a niveles aún más bajos de potasio disponibles para las plantas (Graber y Junge 2009; Seawright et al. 1998; Suhl et al. 2016). Para suministrar potasio, a menudo se utiliza un tampón de pH KOH, ya que el pH a menudo disminuye en acuapónica debido a la nitrificación (Graber y Junge 2009). En un sistema acuapónico plantado con tomates, el potasio se acumuló principalmente en los frutos (Schmautz et al. 2016).
**Magnesio (Mg), Calcio (Ca) y Azufre (S) **
La principal fuente de Mg, Ca y S es el agua del grifo que facilita la absorción por las plantas ya que los nutrientes ya están disponibles (Delaide et al. 2017). Sin embargo, el calcio está presente en niveles insuficientes en acuapónica (Schmautz et al. 2015; Seawright et al. 1998) y se agrega bajo la forma de hidróxido de calcio Ca (OH) sub2/sub (Timmons y Ebeling 2013). Según Rafiee y Saad (2005), los peces pueden utilizar en promedio el 26,8% del calcio y el 20,3% del magnesio presente en el alimento. El azufre suele estar en niveles bajos en los sistemas acuapónicos (Graber y Junge 2009; Seawright et al. 1998).
9.4.3 Ciclos de Micronutrientes
El hierro (Fe), el manganeso (Mn) y el zinc (Zn) derivan principalmente del alimento para peces, mientras que el boro (B) y el cobre (Cu) derivan del agua del grifo (Delaide et al. 2017). En acuapónica, los micronutrientes clave suelen estar presentes, pero a niveles demasiado bajos (Delaide et al. 2017), y entonces es necesario suplementar con fuentes externas de nutrientes (Cap. 8). Las deficiencias de hierro ocurren muy a menudo en acuapónica (Schmautz et al. 2015; Seawright et al. 1998; Fitzsimmons y Posadas; 1997 citado por Licamele 2009), principalmente debido a la falta de disponibilidad de la forma de iones férricos. Esta deficiencia puede resolverse mediante el uso de sideróforo bacteriano (es decir, compuestos orgánicos quelantes de hierro) producidos por géneros como Bacillus o Pseudomonas (Bartelme et al. 2018) o mediante suplementos de hierro con hierro quelado químico para evitar la precipitación del hierro.
9.4.4 Pérdidas de nutrientes
Reducir la pérdida de nutrientes es un desafío constante que enfrentan los practicantes de acuapónica. La pérdida de nutrientes se produce de varias maneras, por ejemplo, la liquidación del lodo (37% de las heces y 18% de los piensos no consumidos) (Neto y Ostrensky 2015), las pérdidas de agua, la desnitrificación, la volatilización del amoníaco, etc. (Wongkiew et al. 2017). Como ejemplo, Rafiee y Saad (2005) señalan que el 24% del hierro, el 86% del manganeso, el 47% del zinc, el 22% del cobre, el 16% del calcio, el 89% del magnesio, el 6% del nitrógeno, el 6% del potasio y el 18% del fósforo contenido en el alimento para peces estaban contenidos en el lodo. El lodo puede contener hasta el 40% de los nutrientes presentes en la entrada de alimento (Yogev et al. 2016).
La desnitrificación puede conducir a una pérdida del 25-60% del nitrógeno (Hu et al. 2015; Zou et al. 2016). La desnitrificación también está vinculada a las condiciones anóxicas (Madigan y Martinko 2007; van Lier et al. 2008) y a los bajos niveles de carbono, y es responsable de la transformación del nitrato en nitrito, óxido nítrico (NO), óxido nitroso (NSub2/subo) y eventualmente gas nitrógeno (NSub2/sub) con flujos a la atmósfera (ibíd. ). La desnitrificación se realiza por varias bacterias heterotróficas facultativas como Achromobacter, Aerobacter, Acinetobacter, Bacillus, Brevibacterium, Flavobacterium, Pseudomonas, Proteus y Micrococcus sp. (Gentile et al. 2007; Michaud y otros 2006; Wongkiew y otros 2017). Algunas bacterias pueden realizar tanto nitrificación como desnitrificación si los niveles de oxígeno disuelto están por debajo de 0,3 mg/L (Fitzgerald et al. 2015; Wongkiew et al. 2017). La pérdida de nitrógeno también puede ocurrir a través de la oxidación anaeróbica de amonio (ANAMMOX), es decir, la oxidación del amonio en gas dinitrógeno en presencia de nitrito (Hu et al. 2011).
Otra pérdida importante de nitrógeno que debería estar disponible para las plantas es el consumo del nitrógeno por las bacterias aeróbicas heterotróficas presentes en los sistemas aquapónicos. De hecho, el nitrógeno utilizado por estas bacterias se pierde a causa de las bacterias nitrificantes, por lo que se impide la nitrificación (Blancheton et al. 2013). Estas bacterias están particularmente presentes cuando la relación C/N aumenta, ya que son más competitivas y más capaces de colonizar los medios que las bacterias nitrificantes autotróficas (Blancheton et al. 2013; Wongkiew et al. 2017).
9.4.5 Dinámica de Sistemas de Equilibrio de Nutrientes
La concentración de nutrientes de los dos subsistemas principales en un sistema acuapónico, es decir, los tanques de peces (acuicultura) y la solución hidropónica, debe equilibrarse para cada una de sus necesidades. En sistemas acuapónicos cerrados, los nutrientes se transportan de peces a plantas más o menos directamente a través de filtros (generalmente un filtro de tambor o un colono y luego un biofiltro) para la nitrificación. Sin embargo, las necesidades de nutrientes de los cultivos y los nutrientes suministrados del subsistema aquapónico no están en equilibrio. En los sistemas multibucle y desacoplados (Cap. 8), es más fácil proporcionar condiciones óptimas para las secciones de peces y plantas. Mediante la modelización de los sistemas (cap. 11), se puede calcular el tamaño óptimo de la zona hidropónica a los acuarios, biofiltros y otros equipos (Goddek y Körner 2019). Esto es particularmente importante con los sistemas de bucle múltiple desacoplados que comprenden varios tipos de equipos. Por ejemplo, UASB (manta de lodos anaeróbicos de flujo ascendente) (Goddek et al. 2018) o unidades de desalinización (Goddek y Keesman 2018) deben dimensionarse cuidadosamente como se explica en Cap. 8. Es necesario rectificar y equilibrar el desajuste básico de los nutrientes suministrados por el medio ambiente de los peces y las necesidades de los cultivos. Con el fin de concentrar los nutrientes, Goddek y Keesman (2018) han descrito una unidad de desalinización apropiada (Cap. 8). Este enfoque, sin embargo, sólo resuelve parte del problema, ya que el sistema perfectamente equilibrado está impulsado por una tasa de evaporación no dinámica alcanzable sólo en cámaras cerradas y plantas de trabajo perfecto. La realidad, sin embargo, es que la evapotranspiración del cultivo (ETsubc/Sub) en sistemas acuapónicos basados en invernadero depende en gran medida de múltiples factores como el clima físico y las variables biológicas. Etsubc/sub se calcula por área de la superficie del suelo cubierta por el cultivo y se calcula para diferentes niveles en el dosel (z) integrando flujos netos irradiativos, resistencia de la capa límite, resistencia de los estomas y el déficit de presión de vapor sub, /sub en el dosel (Körner et al. 2007) utilizando el Penman— Ecuación de Monteith. Esta ecuación, sin embargo, sólo calcula el flujo de agua a través del cultivo. La absorción de nutrientes puede calcularse simplemente asumiendo que todos los nutrientes diluidos en el agua son absorbidos por el cultivo. En realidad, sin embargo, la absorción de nutrientes es un asunto muy complicado. Diferentes nutrientes tienen diferentes estados, cambiando con parámetros como el pH. Mientras tanto, la disponibilidad de nutrientes para las plantas depende en gran medida del pH y de las relaciones entre los nutrientes (por ejemplo, la disponibilidad de K/Ca). Además, el microbioma en la zona radicular juega un papel importante (Orozco-Mosque et al. 2018) que aún no se ha implementado en modelos, aunque algunos modelos diferencian entre las vías floema y xilema. Por lo tanto, la gran cantidad de nutrientes no se modela en detalle para el equilibrio de nutrientes acuapónicos y el dimensionamiento de los sistemas. La forma más fácil de estimar la absorción de nutrientes es la suposición de que los nutrientes se absorben o absorben como se disuelven en el agua de riego y se aplican al método de cálculo ETsubc/sub explicado anteriormente y suponiendo que no existen resistencias químicas, biológicas o físicas específicas de cada elemento. En consecuencia, para mantener el equilibrio, todos los nutrientes absorbidos por el cultivo como contenidos en la solución nutritiva deben ser añadidos de nuevo al sistema hidropónico.
9.5 Conclusiones
Original publication · Publicado por primera vez en FarmHub Learn · Aquaponics Food Production Systems
9.5.1 Desventajas actuales del ciclismo de nutrientes en acuapónica
En hidroponía, la solución nutritiva se determina con precisión y la entrada de nutrientes en el sistema es bien comprendida y controlada. Esto hace que sea relativamente fácil adaptar la solución nutritiva para cada especie de planta y para cada etapa de crecimiento. En acuapónica, según la definición (Palm et al. 2018), los nutrientes deben originarse al menos al 50% de los piensos no consumidos, las heces sólidas de los peces y las excreciones solubles de los peces, dificultando así el seguimiento de las concentraciones de nutrientes disponibles para la absorción de las plantas. Un segundo inconveniente es la pérdida de nutrientes a través de varias vías, como la eliminación de lodos, la renovación del agua o la desnitrificación. La eliminación de lodos induce una pérdida de nutrientes ya que varios nutrientes clave, como el fósforo, a menudo precipitan y quedan atrapados en el lodo sólido evacuado. La renovación del agua, que tiene que tener lugar incluso en pequeñas proporciones, también aumenta la pérdida de nutrientes del circuito aquapónico. Finalmente, la desnitrificación ocurre por la presencia de bacterias desnitrificantes y por condiciones favorables a sus metabolizos.
9.5.2 ¿Cómo mejorar el ciclo de nutrientes?
Para concluir, aún es necesario mejorar el ciclo de nutrientes para optimizar el crecimiento de las plantas en acuapónica. Por consiguiente, en [cap. 8] se estudian varias opciones (/community/articles/chapter-8-sistemas aquapónicos desacoplados). Para evitar la pérdida de nutrientes capturados en el lodo, se han desarrollado unidades de remineralización de lodos (cap. 10). El objetivo de estas unidades es extraer los nutrientes capturados en forma sólida en el lodo y reinyectarlos en el sistema bajo una forma que las plantas puedan absorber (Delaide 2017). Otra técnica para reducir la pérdida de nutrientes sería fomentar la absorción de las plantas a través de la concentración de la solución acuapónica (es decir, la eliminación de una fracción del agua para mantener la misma cantidad de nutrientes pero en un menor volumen de agua). Tal concentración podría lograrse mediante la adición de una unidad de desalinización como parte del sistema aquapónico (Goddek y Körner 2019; Goddek y Keesman 2018). Por último, el uso de sistemas desacoplados/multi-bucle permite condiciones óptimas de vida y cultivo para todos los peces, plantas y microorganismos. Si bien se han llevado a cabo algunas investigaciones en este campo, se deben realizar más investigaciones para comprender mejor el ciclo de nutrientes en acuapónica. De hecho, más información sobre los ciclos exactos de cada macronutriente (qué forma, cómo puede ser transformado o no por microorganismos, cómo es absorbido por las plantas en acuapónica) o la influencia de las especies de plantas y peces y los parámetros del agua en los ciclos de nutrientes podría ayudar en gran medida a la comprensión de sistemas aquapónicos.