Source material
Capitolo 9 Ciclismo nutriente nei sistemi acquaponica
Mathilde Eck, Oliver Körner e M. Haïssam Jijakli
Astratto In acquaponica, le sostanze nutritive provengono principalmente dall'alimentazione dei pesci e dall'ingresso di acqua nel sistema. Una parte sostanziale del mangime viene ingerita dai pesci e utilizzata per la crescita e il metabolismo o escreta come feci solubili e solide, mentre il resto di qualsiasi mangime non consumato decade nelle vasche. Mentre le escrezioni solubili sono prontamente disponibili per le piante, le feci solide devono essere mineralizzate da microrganismi affinché il suo contenuto di nutrienti sia disponibile per l'assorbimento delle piante. È quindi più difficile controllare le concentrazioni di nutrienti disponibili nell'acquaponica che nell'idroponica. Inoltre, molti fattori, tra cui il pH, la temperatura e l'intensità della luce, influenzano la disponibilità di nutrienti e l'assorbimento delle piante. Fino ad oggi, la maggior parte degli studi si è concentrata sui cicli di azoto e fosforo. Tuttavia, per garantire una buona resa delle colture, è necessario fornire alle piante livelli sufficienti di tutti i nutrienti chiave. È quindi essenziale comprendere e controllare meglio i cicli nutritivi in acquaponica.
Parole chiave Acquaponica · Ciclo nutriente · Solubilizzazione · Processi microbiologici
- 9.1 Introduzione
- 9.2 Origine dei nutrienti
- 9.3 Processi microbiologici
- 9.4 Equilibrio di massa: Cosa succede ai nutrienti una volta entrati nel Sistema Aquaponico?
- 9.5 Conclusioni
- Riferimenti
—
[M. Eck](mailto: mathilde.eck@uliege.be) · [M. H. Jijakli](mailto: mh.jijakli@uliege.be)
Laboratorio di patologia vegetale integrata e urbana, Université de Liège, Agro-Bio Tech, Gembloux, Belgio
[O. Körner](mailto: koerner@igzev.de)
Leibniz-Institute of Orticulture e Ornamentali (IGZ), Grossbeeren, Germania
© Autore (i) 2019 231
S. Goddek e altri. (eds.), Aquaponics Food Production Systems, https://doi.org/10.1007/978-3-030-15943-6_9
—
Riferimenti
Bartelme RP, Oyserman BO, Blom JE, Sepulveda-Villet OJ, Newton RJ (2018) Eliminare il suolo: crescita delle piante promuovendo opportunità di microbiologia in acquaponica. Microbiolo anteriore 9 (8). https://doi.org/10.3389/fmicb.2018.00008
Bittsanszky A, Uzinger N, Gyulai G, Mathis A, Junge R, Villarroel M, Kotzen B, Komives T (2016) Fornitura di nutrienti di piante in sistemi acquaponici. Ecocicli 2 (1720). https://doi.org/10.19040/ ecocycles.v2i2.57
Blancheton JP, Atramadal KJK, Michaud L, d'Orbcastel ER, Vadstein O (2013) Informazioni sulla popolazione batterica nei sistemi di acquacoltura e sulle sue implicazioni. Aquac Ita 53:30 —39
Boyd CE (2015) Panoramica dei mangimi per acquacoltura: impatti globali dell'uso degli ingredienti. Mangime Pratt Aquac 3-25. https://doi.org/10.1016/B978-0-08-100506-4.00001-5
Bugbee B (2004) Gestione dei nutrienti nella coltura idroponica a ricircolo. Acta Hortic 648:99 —112. https://doi.org/10.17660/ActaHortic.2004.648.12
Buzby KM, Lin LS (2014) Scaling sistemi aquaponici: bilanciamento dell'assorbimento dell'impianto con la produzione di pesce. Aquac Eng 63:39 —44. https://doi.org/10.1016/j.aquaeng.2014.09.002
Carsiotis M, Khanna S (1989) Ingegneria genetica della nitrificazione microbica. United States Environmental Protection Agency, Laboratorio di ingegneria per la riduzione del rischio
Cerozi BS, Fitzsimmons K (2017) Modellazione dinamica fosforo ed equilibrio di massa in un sistema acquaponico. Agric Syst 153:94 —100. https://doi.org/10.1016/j.agsy.2017.01.020
Daims H, Lebedeva EV, Pjevac P, Han P, Herbold C, Albertsen M, Jehmlich N, Palatinszky M, Vierheilig J, Bulaev A, Kirkegaard RH, Von Bergen M, Rattei T, Bendinger B, Nielsen H, Wagner M (2015) Nitrificazione completa con _nitrospiration Batteri. Natura 528:504. https://doi.org/ 10.1038/nature16461
Davidson J, Good C, Barrows FT, Welsh C, Kenney PB, Summerfelt ST (2013) Confrontando gli effetti dell'alimentazione di una dieta a base di cereali o pesce sulla qualità dell'acqua, la produzione di rifiuti e le prestazioni della trota iridea Oncorhynchus mykiss all'interno di sistemi di acquacoltura a basso scambio d'acqua a ricircolo. Aquac Eng 52:45 —57. https://doi.org/10.1016/J.AQUAENG.2012.08.001
Delaide B (2017) Uno studio sugli elementi minerali disponibili nell'acquaponica, sul loro impatto sulla produttività della lattuga e sul potenziale miglioramento della loro disponibilità. Tesi di dottorato. Gembloux AgroBio Tech, Università di Liegi
Delaide B, Goddek S, Gott J, Soyeurt H, Haissam Jijakli M, Lalman J, Junge R (2016) Lattuga (Lactuca sativa L. var. Le prestazioni di crescita di sucrine) nella soluzione acquaponica integrata superano le prestazioni idroponiche. Acqua 8. https://doi.org/10.3390/w8100467
Delaide B, Delhaye G, Dermience M, Gott J, Soyeurt H, Jijakli MH (2017) Prestazioni di produzione di piante e pesci, equilibri di massa nutritiva, uso di energia e acqua della scatola PAFF, un sistema acquaponico su piccola scala. Aquac Eng 78:130-139. https://doi.org/10.1016/j.aquaeng.2017. 06.002
Fitzgerald CM, Camejo P, Oshlag JZ, Noguera DR (2015) Comunità microbiche ossidanti ammoniaca in reattori con nitrificazione efficiente ad ossigeno a bassa dissoluzione. Acqua Res 70:38 —51. https://doi.org/10.1016/J.WATRES.2014.11.041
Geay F, Ferraresso S, Zambonino-Infante JL, Bargelloni L, Quentel C, Vandeputte M, Kaushik S, Cahu CL, Mazurais D (2011) Effetti della sostituzione totale della dieta a base di pesce con dieta vegetale sul trascrittomo epatico di due mezzesibifamiglie europee (Dicentrarchus labrax) che mostrano una crescita diversa tassi con la dieta a base vegetale. BMC Genomica 12:522. https://doi.org/10.1186/1471-2164-12-522
Gentile ME, Lynn Nyman J, Criddle CS (2007) Correlazione di modelli di instabilità di denitrificazione in comunità di bioreattori replicate con cambiamenti nell'abbondanza relativa e nei modelli di denitrificazione di popolazioni specifiche. ISME J 1:714 —728. https://doi.org/10.1038/ismej.2007.87
Goddek S, Keesman KJ (2018) La necessità della tecnologia di dissalazione per la progettazione e il dimensionamento di sistemi acquaponici multi-loop. Desalazione 428:76 —85. https://doi.org/10.1016/J.DESAL. 2017.11.024
Goddek S, Körner O (2019) Un modello di simulazione completamente integrato di acquaponica multi-loop: un caso di studio per il dimensionamento del sistema in ambienti diversi. Agric Syst 171:143
Goddek S, Delaide B, Mankasingh U, Ragnarsdottir KV, Jijakli H, Thorarinsdottir R (2015) Sfide di acquaponica sostenibile e commerciale. Sostenibilità 7:4199 —4224. https://doi.org/10.3390/su7044199
Goddek S, Schmautz Z, Scott B, Delaide B, Keesman K, Wuertz S, Junge R (2016) L'effetto del surnatante anaerobico e aerobico dei fanghi di pesce sulla lattuga idroponica. Agronomia 6:37. https://doi.org/10.3390/agronomy6020037
Goddek S, Delaide BPL, Joyce A, Wuertz S, Jijakli MH, Gross A, Jing EH, Bläser I, Reuter M, Keizer LCP et al (2018) Mineralizzazione dei nutrienti e riduzione della materia organica dei fanghi a base di RAS nei reattori sequenziali UASB-EGSB. Aquac Ita 83:10 —19
Graber A, Junge R (2009) Sistemi Aquaponic: riciclo dei nutrienti dalle acque reflue dei pesci mediante produzione vegetale. Desalinazione 246:147 —156. https://doi.org/10.1016/j.desal.2008.03.048
Guangzhi G (2001) Bilanciamento di massa e qualità dell'acqua nelle vasche di acquacoltura. Università delle Nazioni Unite, Programma di formazione nel settore della pesca, Reyjavik
Hu B, Shen L, Xu X, Zheng P (2011) Ossidazione anaerobica di ammonio (anammox) in diversi ecosistemi naturali. Biochem Soc. Trans 39:1811 —1816. https://doi.org/10.1042/BST20110711
Hu Z, Lee JW, Chandran K, Kim S, Brotto AC, Khanal SK (2015) Effetto delle specie vegetali sul recupero dell'azoto in acquaponica. Bioresources 188:92 —98. https://doi.org/10.1016/j.biortech. 2015.01.013
Hua K, Bureau DP (2012) Esplorare la possibilità di quantificare gli effetti degli ingredienti proteici vegetali nei mangimi per pesci utilizzando approcci basati su meta-analisi e modelli nutrizionali basati sulla simulazione. Acquacoltura 356— 357:284 —301. https://doi.org/10.1016/J.AQUACULTURE. 2012.05.003
Jorquera M, Martínez O, Maruyama F, Marschner P, de la Luz Mora M (2008) Applicazioni biotecnologiche attuali e future delle fitasi batteriche e dei batteri produttori di fitasi. Microbi Environ 23:182 —191. https://doi.org/10.1264/jsme2.23.182
Körner O, Aaslyng JM, Andreassen AU, Holst N (2007) Microclima modellante per il controllo dinamico del clima serra. Hortscience 42:272 —279
Körner O, Gutzmann E, Kledal PR (2017) Un modello dinamico che simula gli effetti simbiotici nei sistemi acquaponici. Acta Hortic 1170:309 —316
Kuhn DD, Drahos DD, Marsh L, Flick GJ (2010) Valutazione del prodotto batterico nitrificante per migliorare l'efficacia della nitrificazione nei sistemi di acquacoltura a ricircolo. Aquac Eng 43:78 —82. https://doi.org/10.1016/j.aquaeng.2010.07.001
Le Corre KS, Valsami-Jones E, Hobbs P, Parsons SA (2005) Impatto del calcio sulle dimensioni, la forma e la purezza del cristallo struvite. J CRYST Crescita 283:514 —522. https://doi.org/10.1016/J.JCRYSGRO. 2005.06.012
Lennard WA, Leonard BV (2006) Confronto tra tre diversi sottosistemi idroponici (ghiaia, tecnica galleggiante e film nutriente) in un sistema di prova Aquaponic. Aquac Int 14:539 —550. https://doi.org/10.1007/s10499-006-9053-2
Letelier-Gordo CO, Dalsgaard J, Suhr KI, Ekmann KS, Pedersen PB (2015) Riducendo il rapporto proteine:energia (P:E) cambia solubilizzazione e fermentazione delle feci di trota iridea (Oncorhynchus mykiss). Aquac Ita 66:22 —29
Licamele J (2009) Produzione di biomasse e dinamica nutriente in un sistema acquaponico. Tesi di dottorato. Dipartimento di Agricoltura e ingegneria dei biosistemi, Università dell'Arizona
Losordo TM, Masser MP, Rakocy J (1998) Sistemi di produzione di serbatoi di acquacoltura a ricircolo: una panoramica di considerazioni critiche. SRAC n. 451, pagg 18—31
Madigan MT, Martinko JM (2007) Biologie des microrganismes, 11° edn. Pearson Education Francia, Parigi
Meriac A, Eing EH, Schrama J, Kamstra A, Verreth JAJ (2014) La composizione di carboidrati dietetici può cambiare la produzione di rifiuti e il carico di biofiltri nei sistemi di acquacoltura a ricircolo. Acquacoltura 420— 421:254 —261. https://doi.org/10.1016/j.aquaculture.2013.11.018
Michaud L, Blancheton JP, Bruni V, Piedrahita R (2006) Effetto del particolato organico di carbonio sulle popolazioni batteriche eterotrofe e sull'efficienza di nitrificazione nei filtri biologici. Aquac Eng 34:224 —233. https://doi.org/10.1016/j.aquaeng.2005.07.005
Munguia-Fragozo P, Alatorre-Jacome O, Rico-Garcia E, Torres-Pacheco I, Cruz-Hernandez A, Ocampo-Velazquez RV, Garcia-Trejo JF, Guevara-Gonzalez RG (2015) Prospettiva per sistemi acquaponici: tecnologie «omiche» per l'analisi della comunità microbica. Biomed Res Int 2015:1. https://doi.org/10.1155/2015/480386
Neto MR, Ostrensky A (2015) Stima del carico nutriente nei rifiuti del Nilo Tilapia Oreochromis niloticus (L.) allevati in gabbie in condizioni climatiche tropicali. Aquac Res 46:1309 —1322. https://doi.org/10.1111/are.12280
Orozco-Mosque MC, Rocha-Granados MC, Glick BR, Santoyo G (2018) Ingegneria microbioma per migliorare il biocontrollo e il meccanismo di promozione della crescita delle piante. Microbiolo Res. in stampa
Palm HW, Knaus U, Appelbaum S, Goddek S, Strauch SM, Vermeulen T, Haїssam Jijakli M, Kotzen B (2018) Verso acquaponica commerciale: una rassegna di sistemi, disegni, scale e nomenclatura. Aquac Int 26:813 —842
Prabhu AS, Fageria NK, Berni RF, Rodrigues FA (2007) Fosforo e malattia delle piante. In: Datnoff LE, Elmer WH, Huber DM (eds) Nutrizione minerale e malattia delle piante. The American Phytopathological Society, St. Paul, pp 45—55
Rafiee G, Saad CR (2005) Ciclo di nutrienti e produzione di fanghi durante diverse fasi di crescita rossa Tilapia (Oreochromis sp.) in un sistema di acquacoltura a ricircolo. Acquacoltura 244:109 —118. https://doi.org/10.1016/J.AQUACULTURE.2004.10.029
Rakocy JE, Shultz RC, Bailey DS, Thoman ES (2004) Produzione acquaponica di Tilapia e basilico: confronto di un sistema di coltura a lotti e sfalsati. Acta Hortic 648:63 —69. https://doi.org/10. 17660/Actahortic.2004.648.8
Rakocy JE, Masser MP, Losordo TM (2006) Sistemi di produzione di vasche di acquacoltura a ricircolo: acquaponica - integrazione della cultura ittica e vegetale. SRAC Publ South Reg Aquac Cent 16. https://doi.org/454
Randall D, Tsui TK (2002) Tossicità da ammoniaca nei pesci. Mar Pollut Bull 45:17 —23. https://doi.org/10. 1016/S0025-326X (02) 00227-8
Resh HM (2013) Produzione alimentare idroponica: una guida definitiva per il giardiniere avanzato e il coltivatore idroponico commerciale, 7° edn. CRC Press, Boca Raton
Roosta HR, Hamidpour M (2011) Effetti dell'applicazione fogliare di alcuni macro e micronutrienti sulle piante di pomodoro nei sistemi acquaponici e idroponici. Sci Hortic 129:396 —402. https://doi.org/ 10.1016/J.SCIENTA.2011.04.006
Roosta HR, Hamidpour M (2013) Contenuto nutriente minerale delle piante di pomodoro nei sistemi acquaponici e idroponici: effetto dell'applicazione fogliare di alcuni macro e micronutrienti. J Impianto Nutr 36:2070 —2083. https://doi.org/10.1080/01904167.2013.821707
Ru D, Liu J, Hu Z, Zou Y, Jiang L, Cheng X, Lv Z (2017) Miglioramento delle prestazioni acquaponiche attraverso l'aggiunta di micro e macro-nutrienti. Environ Sci Pollut Res 24:16328 —16335 https://doi.org/10.1007/s11356-017-9273-1
Rurangwa E, Verdegem MCJ (2013) Microrganismi nei sistemi di acquacoltura a ricircolo e nella loro gestione. Rev. Aquac 7:117 —130. https://doi.org/10.1111/raq.12057
Schmautz Z, Graber A, Mathis A, Griessler Bulc T, Junge R (2015) Produzione di pomodori in sistema acquaponico: bilancio di massa e riciclo dei nutrienti (abstract)
Schmautz Z, Loeu F, Liebisch F, Graber A, Mathis A, Bulc TG, Junge R (2016) Produttività e qualità del pomodoro in acquaponica: confronto di tre metodi idroponici. Acqua 8:1 —22. https://doi.org/10.3390/w8110533
Schmautz Z, Graber A, Jaenicke S, Goesmann A, Junge R, Smits THM (2017) Diversità microbica in diversi scomparti di un sistema acquaponico. Arch Microbiol 199:613. https://doi.org/10. 1007/s00203-016-1334-1
Schneider O, Sereti V, Eing EH, Verreth JAJ (2004) Analisi dei flussi di nutrienti nei sistemi integrati di acquacoltura intensiva. Aquac Eng 32:379 —401. https://doi.org/10.1016/j.aquaeng.2004. 09.001
Seawright DE, Stickney RR, Walker RB (1998) Dinamica nutriente nell'acquacoltura integrata — sistemi idroponici. Acquacoltura 160:215 —237
Shoda M (2014) Nitrificazione eterotrofa e denitrificazione aerobica da parte di Alcaligeni faecalis. J Biosci Bioeng 117:737 —741. https://doi.org/10.5772/68052
Somerville C, Stankus A, Lovatelli A (2014) Produzione alimentare acquaponica su piccola scala. Agricoltura integrata di pesci e piante. Organizzazione delle Nazioni Unite per l'Alimentazione e l'Agricoltura, Roma
Sonneveld C, Voogt W (2009) Nutrizione vegetale delle colture in serra. Springer, Dordrecht/ Heidelberg/Londra/New York
Sugita H, Nakamura H, Shimada T (2005) Comunità microbiche associate a materiali filtranti nei sistemi di acquacoltura a ricircolo di pesci d'acqua dolce. Acquacoltura 243:403. https://doi.org/10.1016/j.aquaculture.2004.09.028
Suhl J, Dannehl D, Kloas W, Baganz D, Jobs S, Scheibe G, Schmidt U (2016) Aquaponica avanzata: valutazione della produzione intensiva di pomodoro in acquaponica rispetto all'idroponica convenzionale. Acqua Agric Manag 178:335 —344. https://doi.org/10.1016/j.agwat.2016.10.013
Tacon AGJ, Metian M (2008) Panoramica globale sull'uso della farina di pesce e dell'olio di pesce negli acquafeeds composti industrialmente: tendenze e prospettive future. Acquacoltura 285:146 —158. https://doi.org/10.1016/j.aquaculture.2008.08.015
Timmons MB, Ebeling JM (2013) Acquacoltura a ricircolo. Ithaca Publishing, New York
Turcios AE, Papenbrock J (2014) Trattamento sostenibile degli effluenti dell'acquacoltura: cosa possiamo imparare dal passato per il futuro? Sostenibilità 6:836 —856. https://doi.org/10.3390/su6020836 van Lier JB, Mahmoud N, Zeeman G (2008) In: Henze M, van Loosdrecht MCM, Ekama GA, Brdjanovic D (eds) Trattamento anaerobico delle acque reflue, in: trattamento biologico delle acque reflue: principi, modellazione e progettazione. IWA Publishing, Londra. ISBN: 9781843391883
van Rijn J (2013) Trattamento dei rifiuti nei sistemi di acquacoltura a ricircolo. Aquac Eng 53:49 —56. https://doi.org/10.1016/J.AQUAENG.2012.11.010
Wongkiew S, Hu Z, Chandran K, Lee JW, Khanal SK (2017) Trasformazioni di azoto nei sistemi aquaponici: una recensione. Aquac Eng 76:9 —19. https://doi.org/10.1016/j.aquaeng.2017.01. 004
Xu G, Fan X, Miller AJ (2012) Impianto di assimilazione dell'azoto ed efficienza di utilizzo. Annu Rev Impianto Biol 63:153 —182. https://doi.org/10.1146/annurev-arplant-042811-105532
Yildiz HY, Robaina L, Pirhonen J, Mente E, Domínguez D, Parisi G (2017) Benessere del pesce nei sistemi Aquaponic: la sua relazione con la qualità dell'acqua con particolare attenzione ai mangimi e alle Feces — una recensione. Acqua 9. https://doi.org/10.3390/w9010013
Yogev U, Barnes A, Gross A (2016) Analisi dei nutrienti e del bilancio energetico per un modello concettuale di un tre loop off grid, acquaponica. Acqua 8. https://doi.org/10.3390/w8120589
Zekki H, Gauthier L, Gosselin A (1996) Crescita, produttività e composizione minerale dei pomodori serra coltivati idroponicamente, con o senza riciclo di soluzioni nutritive. J Am Soc. Hortic Sci 121:1082 —1088
Zou Y, Hu Z, Zhang J, Xie H, Guimbaud C, Fang Y (2016) Effetti del pH sulle trasformazioni azotate nell'acquaponica basata su supporti. Bioresour Technol 210:81-87 https://doi.org/10.1016/ J.BIORTECH.2015.12.079
Accesso Aperto Questo capitolo è concesso in licenza secondo i termini della Creative Commons Attribution 4.0 International License (http://creativecommons.org/licenses/by/4.0/), che consente l'uso, la condivisione, l'adattamento, la distribuzione e la riproduzione in qualsiasi supporto o formato, come purché tu dia credito appropriato all'autore o agli autori originali e alla fonte, fornisci un link alla licenza Creative Commons e indichi se sono state apportate modifiche.
Le immagini o altro materiale di terze parti in questo capitolo sono inclusi nella licenza Creative Commons del capitolo, salvo diversa indicazione in una linea di credito al materiale. Se il materiale non è incluso nella licenza Creative Commons del capitolo e l'uso previsto non è consentito dalla normativa legale o supera l'uso consentito, è necessario ottenere l'autorizzazione direttamente dal titolare del copyright.
Aquaponics Food Production Systems contributors.
Visualizza l’edizione originale · Creative Commons Attribution 4.0
Questa edizione della libreria è riformattata e consolidata dalla fonte originale.
9.1 Introduzione
Original publication · Pubblicato per la prima volta su FarmHub Learn · Aquaponics Food Production Systems
I sistemi Aquaponic offrono diversi vantaggi quando si tratta di produrre alimenti in modo innovativo e sostenibile. Oltre agli effetti sinergici dell'aumento della concentrazione aerea COSub2/sub per le colture in serra e della diminuzione del consumo totale di energia termica quando si coltivano pesci e colture nello stesso spazio (Körner et al. 2017), l'acquaponica presenta due vantaggi principali per il ciclismo dei nutrienti. In primo luogo, la combinazione di un sistema di acquacoltura a ricircolo con produzione idroponica evita lo scarico di effluenti di acquacoltura arricchiti in azoto e fosforo disciolti nelle acque sotterranee già inquinate (Buzby e Lin 2014; Guangzhi 2001; van Rijn 2013) e, in secondo luogo, consente la fecondazione di le colture prive di suolo con quella che può essere considerata una soluzione organica (Goddek et al. 2015; Schneider et al. 2004; Yogev et al. 2016) invece di utilizzare fertilizzanti di origine minerale ottenuti con risorse naturali in esaurimento (Schmautz et al. 2016; cap. 2). Inoltre, l'acquaponica produce una crescita delle piante paragonabile a quella dell'idroponica convenzionale, nonostante le basse concentrazioni di maggior parte dei nutrienti nell'acqua di acquacoltura (Graber e Junge 2009; Bittsanszky et al. 2016; Delaide et al. 2016), e la produzione può essere ancora migliore rispetto al suolo (Rakocy et al. 2004). L'aumento delle concentrazioni di COSub2/sub nell'ambiente aereo e i cambiamenti nei biomi della zona radicale sono considerati motivi principali per questo. Inoltre, il contenuto di minerali e la qualità nutrizionale dei pomodori coltivati acquaponicamente sono risultati equivalenti o superiori al contenuto minerale di quelli coltivati convenzionalmente (Schmautz et al. 2016).
Pur avendo due attivi interessanti (vale a dire il riciclaggio degli effluenti di acquacoltura e l'uso di fertilizzanti organici), l'uso di effluenti di acquacoltura aumenta la sfida di monitorare i nutrienti all'interno della soluzione. Infatti, è più difficile controllare la composizione di una soluzione in cui i nutrienti provengono da una degradazione biologica della materia organica piuttosto che seguire l'evoluzione della concentrazione dei nutrienti in una soluzione idroponica dosata con precisione a base di composti minerali (Bittsanszky et al. 2016; Timmons ed Ebeling 2013). Inoltre, il fabbisogno nutrizionale di una pianta varia durante il periodo di crescita in funzione delle fasi fisiologiche ed è necessario soddisfare tali esigenze per massimizzare le rese (Bugbee 2004; Zekki et al. 1996; cap. 4).
Per riciclare gli effluenti dell'acquacoltura per produrre biomassa vegetale, è necessario ottimizzare i tassi di riciclaggio del fosforo e dell'azoto (Goddek et al. 2016; Graber e Junge 2009; cap. 1). Diversi fattori possono influenzare questo, come le specie ittiche, la densità dei pesci, la temperatura dell'acqua, il tipo di piante e la comunità microbica (ibid.). Pertanto, è di primaria importanza comprendere il funzionamento dei cicli nutritivi in acquaponica (Seawright et al. 1998). Questo capitolo mira a spiegare le origini dei nutrienti in un sistema acquaponico, descrivendo i cicli dei nutrienti e analizzando le cause delle perdite di nutrienti.
9.2 Origine delle sostanze nutritive
Original publication · Pubblicato per la prima volta su FarmHub Learn · Aquaponics Food Production Systems
Le principali fonti di nutrienti in un sistema acquaponico sono il mangime per pesci e l'acqua aggiunta (contenente Mg, Ca, S) (cfr. Sez. 9.3.2.) nel sistema (Delaide et al. 2017; Schmautz et al. 2016) come ulteriormente elaborato in cap. 13. Per quanto riguarda i mangimi per pesci, esistono due tipi principali: il mangime a base di pesce e quello a base vegetale. La farina di pesce è il classico tipo di mangime utilizzato in acquacoltura dove lipidi e proteine si basano sulla farina di pesce e sull'olio di pesce (Geay et al. 2011). Tuttavia, da tempo, sono state sollevate preoccupazioni circa la sostenibilità di tali mangimi e l'attenzione è rivolta verso le diete vegetali (Boyd 2015; Davidson et al. 2013; Hua and Bureau 2012; Tacon e Metian 2008). Una meta-analisi condotta da Hua and Bureau (2012) ha rivelato che l'uso di proteine vegetali nei mangimi per pesci può influenzare la crescita del pesce se incorporato in proporzioni elevate. Infatti, le proteine vegetali possono avere un impatto sulla digeribilità e sui livelli dei fattori anti-nutrizionali del mangime. In particolare, il fosforo proveniente da piante e quindi sotto forma di fitati non beneficia, ad esempio, del salmone, della trota e di numerose altre specie ittiche (Timmons ed Ebeling 2013). Non sorprende che questa osservazione dipenda fortemente dalle specie ittiche e dalla qualità degli ingredienti (Hua e Bureau 2012). Tuttavia, poco si sa dell'impatto della diversa composizione dei mangimi per pesci sulle rese delle colture (Yildiz et al. 2017).
Il mangime classico per pesci è composto da 6-8 ingredienti macro e contiene il 6— 8% di azoto organico, l'1,2% di fosforo organico e il 40— 45% di carbonio organico (Timmons ed Ebeling 2013) con circa il 25% di proteine per pesci erbivori o onnivori e circa il 55% di proteine per pesci carnivori (Boyd 2015). Anche i lipidi possono essere a base di pesce o di piante (Boyd 2015).
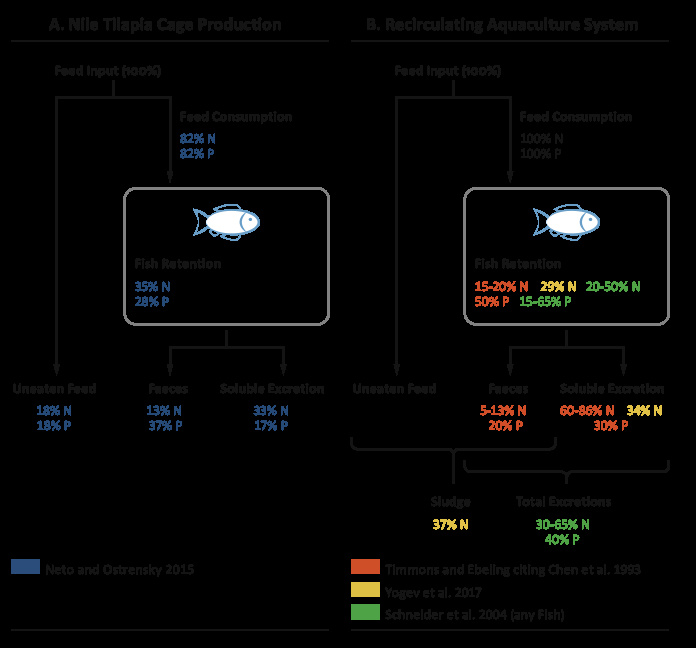
Fig. 9.1 Flusso ambientale di azoto e fosforo in% per (a) la produzione di gabbie del Nilo Tilapia (dopo Neto e Ostrensky 2015) e (b) la produzione RAS (da diverse fonti)
Una volta che il mangime viene aggiunto nel sistema, una parte sostanziale di esso viene consumato dal pesce e utilizzato per la crescita e il metabolismo o escreto come feci solubili e solide, mentre il resto del mangime dato decade nei serbatoi (Goddek et al. 2015; Schneider et al. 2004) (Fig. 9.1). In questo caso, gli avanzi di mangime e i prodotti metabolici sono parzialmente disciolti nell'acqua acquaponica, consentendo così alle piante di assorbire i nutrienti direttamente dalla soluzione acquaponica (Schmautz et al. 2016).
Nella maggior parte dei sistemi di coltivazione (Chaps. 7 e 8, è possibile aggiungere sostanze nutritive per completare la soluzione acquaponica e garantire una migliore corrispondenza con le esigenze delle piante (Goddek et al. 2015). Infatti, anche quando il sistema è accoppiato, è possibile aggiungere ferro o potassio (che spesso mancano) senza danneggiare il pesce (Schmautz et al. 2016).
9.2.1 Avanzi di mangime per pesci e feci di pesce
Idealmente, tutto il mangime dato dovrebbe essere consumato dal pesce (Fig. 9.1). Tuttavia, una piccola parte (meno del 5% (Yogev et al. 2016)) viene spesso lasciata a decomporsi nel sistema e contribuisce al carico nutriente dell'acqua (Losordo et al. 1998; Roosta e Hamidpour 2013; Schmautz et al. 2016), consumando così ossigeno disciolto e rilasciando anidride carbonica e ammoniaca (Losordo et al. 1998) , tra le altre cose. La composizione degli avanzi di mangime per pesci dipende dalla composizione del mangime.
Abbastanza logicamente, la composizione delle feci di pesce dipende dalla dieta del pesce che ha anche un impatto sulla qualità dell'acqua (Buzby e Lin 2014; Goddek et al. 2015). Tuttavia, la ritenzione di nutrienti nella biomassa ittica dipende in larga misura dalle specie ittiche, dai livelli di alimentazione, dalla composizione dei mangimi, dalle dimensioni dei pesci e dalla temperatura del sistema (Schneider et al. 2004). A temperature più elevate, ad esempio, il metabolismo dei pesci è accelerato e quindi si traduce in più nutrienti contenuti nella frazione solida delle feci (Turcios e Papenbrock 2014). La proporzione di nutrienti escreti dipende anche dalla qualità e dalla digeribilità della dieta (Buzby e Lin 2014). La digeribilità dei mangimi per pesci, le dimensioni delle feci e il rapporto di sedimentazione dovrebbero essere attentamente valutati per garantire un buon equilibrio nel sistema e massimizzare la resa delle colture (Yildiz et al. 2017). Infatti, anche se è una priorità che i mangimi per pesci debbano essere scelti con cura per soddisfare le esigenze dei pesci, i componenti del mangime potrebbero anche essere selezionati per soddisfare le esigenze della pianta quando non fa differenza per il pesce (Goddek et al. 2015; Licamele 2009; Seawright et al. 1998).
9.3 Processi microbiologici
Original publication · Pubblicato per la prima volta su FarmHub Learn · Aquaponics Food Production Systems
9.3.1 Solubilizzazione
La solubilizzazione consiste nella scomposizione delle complesse molecole organiche che compongono i rifiuti di pesce e gli avanzi di mangimi in sostanze nutritive sotto forma di minerali ionici che le piante possono assorbire (Goddek et al. 2015; Somerville et al. 2014). Sia in acquacoltura (Sugita et al. 2005; Turcios e Papenbrock 2014) che in acquaponica, la solubilizzazione è condotta principalmente da batteri eterotrofici (van Rijn 2013; cap. 6) che non sono ancora stati completamente identificati (Goddek et al. 2015). Alcuni studi hanno iniziato a decifrare la complessità di queste comunità batteriche (Schmautz et al. 2017). Nell'acquacoltura attuale, i batteri più comunemente osservati sono Rhizobium sp., Flavobacterium sp., Sphingobacterium sp., Comamonas sp., Acinetobacter sp., Aeromonas sp. e Pseudomonas sp. (Munguia-Fragozo et al. 2015; Sugita et al. 2005). Un esempio del ruolo principale dei batteri nell'acquaponica potrebbe essere la trasformazione dei fitati insolubili in fosforo (P) resi disponibili per l'assorbimento delle piante attraverso la produzione di fitasi particolarmente presenti in γ-proteobacteria (Jorquera et al. 2008). (Più ricerche devono essere fatte in questo settore). Altri nutrienti diversi da P possono anche essere intrappolati come solidi ed evacuati dal sistema con il fango. Si sta quindi compiendo sforzi per rimineralizzare questi fanghi con reattori UASB-EGSB al fine di reiniettare i nutrienti nel sistema acquaponico (Delaide 2017; Goddek et al. 2016; cap. 10). Inoltre, diversi minerali non vengono rilasciati alla stessa velocità, a seconda della composizione del mangime (LetelierGordo et al. 2015), portando così a un monitoraggio più complicato della loro concentrazione nella soluzione acquaponica (Seawright et al. 1998).
9.3.2 Nitrificazione
La principale fonte di azoto in un sistema acquaponico è il mangime per pesci e le proteine che contiene (Goddek et al. 2015; Ru et al. 2017; Wongkiew et al. 2017; Yildiz et al. 2017). Idealmente, il 100% di questo mangime dovrebbe essere mangiato dal pesce. Tuttavia, è stato osservato che i pesci utilizzano solo circa il 30% dell'azoto contenuto nel mangime dato (Rafiee e Saad 2005). Il mangime ingerito è in parte utilizzato per l'assimilazione e il metabolismo (Wongkiew et al. 2017), mentre il resto viene escreto attraverso le branchie o come urina e feci (Ru et al. 2017). L'azoto che viene escreto attraverso le branchie è principalmente sotto forma di ammoniaca, NHSub3/sub (Wongkiew et al. 2017; Yildiz et al. 2017), mentre l'urina e le feci sono costituite da azoto organico (Wongkiew et al. 2017) che viene trasformato in ammoniaca da proteasi e deaminasi (Sugita et al. 2005). In generale, i pesci espellono azoto sotto forma di TAN, cioè NHSub3/sub e NHSub4/subSUP+/SUP. L'equilibrio tra NHSub3/sub e NHSub4/SubSUP+/SUP dipende principalmente dal pH e dalla temperatura. L'ammoniaca è il principale rifiuto prodotto dal catabolismo dei pesci delle proteine dei mangimi (Yildiz et al. 2017).
La nitrificazione è un processo in due fasi durante il quale l'ammoniaca NHSub3/sub o l'ammonio NHSub4/subSUP+/SUP escreto dal pesce viene trasformata prima in nitrito Nosub2/subsup-/sup e poi in nitrato nosub3/subsup-/SUP da specifici batteri autotrofici aerobici chemiosintetici. È necessaria un'elevata disponibilità di ossigeno disciolto poiché la nitrificazione consuma ossigeno (Carsiotis e Khanna 1989; Madigan e Martinko 2007; Shoda 2014). Il primo passo di questa trasformazione è effettuato da batteri ossidanti ammoniaca (AOB) come Nitrosomonas, Nitrosococcus, Nitrosospira, Nitrosolobus e Nitrosovibrio. Il secondo passo è condotto da batteri ossidanti nitriti (NOB) come Nitrobacter, Nitrococcus, Nitrospira e Nitrospina (Rurangwa e Verdegem 2013; Timmons ed Ebeling 2013; Wongkiew et al. 2017). Nitrospira è attualmente dedotto essere un nitrificatore completo, cioè coinvolto nella produzione di nitriti e nitrati (Daims et al. 2015). Gli stessi batteri si trovano sia in acquacoltura che in sistemi acquaponici (Wongkiew et al. 2017). Questi batteri si trovano principalmente nei biofilm fissati ai supporti che compongono il biofiltro ma possono essere osservati anche negli altri comparti del sistema (Timmons ed Ebeling 2013).
La nitrificazione è di primaria importanza in acquaponica poiché ammoniaca e nitriti sono abbastanza tossici per i pesci: 0,02 — 0,07 mg/L di ammoniaca — azoto sono sufficienti per osservare danni nei pesci di acqua calda, e nitrito-azoto deve essere mantenuto sotto 1 mg/L (Losordo et al. 1998; Timmons ed Ebeling 2013). L'ammoniaca colpisce il sistema nervoso centrale del pesce (Randall e Tsui 2002; Timmons e Ebeling 2013), mentre il nitrito induce problemi di fissazione dell'ossigeno (Losordo et al. 1998). Nitrato — l'azoto è, tuttavia, tollerato dai pesci fino a 150—300 mg/L (Goddek et al. 2015; Graber and Junge 2009; Yildiz et al. 2017).
La nitrificazione avviene principalmente nei biofiltri (Losordo et al. 1998; Timmons ed Ebeling 2013). Pertanto, quando si avvia un sistema, si raccomanda di eseguire il sistema senza pesci al fine di consentire la crescita lenta della popolazione di batteri nitrificanti per stabilire (Timmons ed Ebeling 2013; Wongkiew et al. 2017). È inoltre necessario evitare, per quanto possibile, la presenza di materia organica nei biofiltri per prevenire la crescita di batteri eterotrofici altamente competitivi (Timmons ed Ebeling 2013). In alternativa, è possibile aggiungere al sistema miscele commerciali di batteri nitrificanti, prima dello stoccaggio, per accelerare il processo di colonizzazione (Kuhn et al. 2010). Tuttavia, esistono anche piccoli sistemi aquaponici senza biofiltro. In questi sistemi, i batteri nitrificanti formano biofilm delle superfici disponibili (ad esempio pareti del compartimento idroponico, mezzi inerti quando si utilizza la tecnica del letto multimediale) (Somerville et al. 2014).
9.4 Equilibrio di massa: Cosa succede ai nutrienti una volta entrati nel Sistema Aquaponico?
Original publication · Pubblicato per la prima volta su FarmHub Learn · Aquaponics Food Production Systems
9.4.1 Contesto
Il funzionamento dei sistemi aquaponici si basa su un equilibrio dinamico dei cicli nutritivi (Somerville et al. 2014). È quindi necessario comprendere questi cicli per ottimizzare la gestione dei sistemi. Le piante che crescono idroponicamente hanno requisiti specifici, che dovrebbero essere soddisfatti durante le loro varie fasi di crescita (Resh 2013). Pertanto, le concentrazioni di nutrienti nei diversi comparti del sistema devono essere attentamente monitorate e le sostanze nutritive dovrebbero essere integrate per evitare carenze (Resh 2013; Seawright et al. 1998) sia nell'acqua del sistema che tramite applicazione fogliare (Roosta e Hamidpour 2011).
Secondo Delaide et al. (2016), in alcuni casi, integrare una soluzione acquaponica con sostanze nutritive minerali al fine di raggiungere le stesse concentrazioni nutritive dell'idroponica potrebbe portare a rese più elevate di quelle ottenute nell'idroponica. Il primo passo da compiere verso un sistema equilibrato è la corretta progettazione e il relativo dimensionamento degli scomparti (Buzby e Lin 2014). Se il compartimento idroponico è troppo piccolo rispetto alle vasche per pesci, allora i nutrienti si accumulano nell'acqua e potrebbero raggiungere livelli tossici. Per il primo dimensionamento del sistema viene spesso utilizzato il rapporto di velocità di alimentazione (cioè la quantità di mangime per pesci nel sistema in base alla superficie vegetale e al tipo di pianta) (Rakocy et al. 2006; Somerville et al. 2014). Tuttavia, secondo Seawright et al. (1998), non è possibile raggiungere un rapporto impianto/pesce che consenta una corrispondenza ottimale delle esigenze delle piante se si utilizzano solo mangimi per pesci come input. Per assicurarsi che il sistema sia ben bilanciato e funzioni correttamente, i metodi di monitoraggio sono generalmente basati sul ciclo dell'azoto (Cerozi e Fitzsimmons 2017; Somerville et al. 2014), ma per garantire un funzionamento ottimale del sistema, è necessario monitorare più da vicino l'equilibrio degli altri macronutrienti ( N, P, K, Ca, Mg, S) e micronutrienti (Fe, Zn, B, Mn, Mo, Cu) (Resh 2013; Somerville et al. 2014; Sonneveld e Voogt 2009). Studi recenti (Delaide et al. (2017), Schmautz et al. (2015, 2016)) hanno iniziato ad affrontare questo argomento. Schmautz et al. (2015, 2016) hanno confrontato l'impatto di tre diversi layout idroponici (ovvero tecnica del film nutriente (NFT), zattera galleggiante e irrigazione a goccia) sull'assorbimento di nutrienti dei pomodori aquaponici. L'irrigazione a goccia era il sistema che produceva rese leggermente migliori con i pomodori. Il contenuto minerale dei frutti (P, K, Ca, Mg) era equivalente ai valori convenzionali anche se il contenuto di ferro e zinco era più elevato. Le foglie tuttavia avevano livelli inferiori di P, K, S, Ca, Mg, Fe, Cu e Zn rispetto all'agricoltura convenzionale. Delaide et al. (2016) ha seguito i cicli di macro e micronutrienti in un sistema acquaponico accoppiato. Hanno osservato che K, P, Fe, Cu, Zn, Mn e Mo mancavano nella loro soluzione acquaponica, mentre N, Ca, B e Na sono stati rapidamente accumulati. Graber e Junge (2009) hanno osservato che la loro soluzione acquaponica conteneva tre volte meno azoto e dieci volte meno fosforo di una soluzione idroponica. Per quanto riguarda il potassio (K), era 45 volte inferiore rispetto all'idroponica. Tuttavia, essi hanno ottenuto rendimenti come rendimenti simili anche se la qualità era più scarsa a causa della mancanza di potassio (K).
Fattori che influenzano i cicli dei nutrienti
L'intensità della luce, la temperatura della zona radicale, la temperatura dell'aria, la disponibilità di nutrienti, lo stadio di crescita e il tasso di crescita influenzano l'assorbimento dei nutrienti di una pianta (Buzby e Lin 2014). Gli esperimenti condotti da Schmautz et al. (2016) e Lennard e Leonard (2006) hanno dimostrato che il metodo idroponico potrebbe anche svolgere un ruolo nella capacità di assorbimento dei nutrienti di una pianta ed è quindi necessario abbinare il sistema di coltivazione al tipo di verdura coltivata. NFT e DWC (deep water culture — zattera) sono quindi adatti per verdure a foglia verde, mentre l'irrigazione a goccia su lastre di lana di roccia è più adatta per verdure fruttate (Resh 2013).
9.4.2 Cicli di Macronutrienti
**Carbonio (C) **
Il carbonio viene fornito ai pesci tramite il mangime (Timmons ed Ebeling 2013) e alle piante tramite la fissazione COsub2/sub. I pesci possono utilizzare il 22% del carbonio contenuto nel mangime per aumentare la biomassa e il metabolismo. Il resto del carbonio ingerito è scaduto sotto forma di COSub2/sub (52%) o escreto in forma disciolta (0,7— 3%) e solida (25%) (Timmons ed Ebeling 2013). Il COSub2/sub scaduto può essere utilizzato anche dagli impianti per la propria fonte di carbonio (Körner et al. 2017). La parte non consumata del carbonio di alimentazione viene lasciata a decomporsi nel sistema. Il tipo di carboidrati presenti nei mangimi per pesci (ad esempio polisaccaridi amidi o non amilacei) può anche influenzare la digeribilità del mangime e la biodegradabilità dei rifiuti in un sistema acquacoltura o acquaponico (Meriac et al. 2014).
**Azoto (N) **
L'azoto viene assorbito dalle piante sotto forma di nitrato o ammonio (Sonneveld e Voogt 2009; Xu et al. 2012) a seconda della concentrazione e della fisiologia della pianta (Fink e Feller 1998 citati da Wongkiew et al. 2017). Le associazioni tra piante e microrganismi non dovrebbero essere trascurate in quanto le piante influenzano la presenza dei microrganismi nell'acquaponica e i microrganismi possono svolgere un ruolo significativo nella capacità di assorbimento dell'azoto delle piante (Wongkiew et al. 2017). L'assorbimento di azoto da parte degli impianti è influenzato dalla concentrazione di anidride carbonica ambientale (Zhang et al. 2008 citata da Wongkiew et al. 2017).
**Fosforo (P) **
Il fosforo è uno degli elementi essenziali per la crescita delle piante e può essere assorbito sotto la sua forma ionica ortofosfato (Hsub2/subposub4/subsup-/SUP, HPOsub4/subsup2-/SUP, POSUB4/subSUP3-/SUP) (Prabhu et al. 2007; Resh 2013). Poco si sa sulla dinamica del fosforo in acquaponica. L'ingresso principale di fosforo nel sistema è il mangime per pesci (Cerozi e Fitzsimmons 2017; Delaide et al. 2017; Schmautz et al. 2015), e nei sistemi non integrati (Chap. 7), il fosforo tende ad essere limitante e quindi può ostacolare crescita delle piante (Graber e Junge 2009; Seawright et al. 1998). Secondo Rafiee e Saad (2005), i pesci possono utilizzare fino al 15% del fosforo contenuto nel mangime. In un sistema di coltivazione di lattuga, Cerozi e Fitzsimmons (2017) hanno notato che la quantità di fosforo fornita dal mangime per pesci può essere sufficiente o insufficiente a seconda della fase di crescita. Fino al 100% del fosforo presente nell'acqua di pesce può essere riciclato nella biomassa vegetale, a seconda della progettazione del sistema. Graber e Junge (2009) hanno osservato un riciclaggio del 50%, mentre Schmautz et al. (2015) hanno riferito che il 32% del fosforo potrebbe essere trovato nel frutto e il 28% nelle foglie. La solubilità del fosforo dipende dal pH, e un pH più elevato favorirà la precipitazione del fosforo, rendendolo così indisponibile per le piante (Yildiz et al. 2017). Il fosforo può precipitare come struvite (fosfato di magnesio ammonio) (Le Corre et al. 2005) e/o idrossiapatite (Cerozi e Fitzsimmons 2017; Goddek et al. 2015). Questi complessi insolubili vengono rimossi dal sistema tramite fanghi solidi di pesce. Schneider et al. (2004) hanno riferito che il 30 -65% del fosforo contenuto nel mangime per pesci rimane indisponibile per le piante in quanto è fissato nelle escrezioni solide che vengono poi rimosse mediante filtrazione meccanica. Yogev et al. (2016) ha stimato che questa perdita può arrivare fino all'85%. Un'opzione per prevenire questa massiccia perdita di P attraverso fanghi solidi è quella di aggiungere un compartimento di digestione al sistema acquaponico. Durante la digestione aerobica o anaerobica, la P viene rilasciata nel digestato e potrebbe essere reintrodotta nell'acqua circolante (Goddek et al. 2016).
**Potassio (K) **
Delaide et al. (2017) hanno scoperto che la principale fonte di K nel loro sistema era il mangime per pesci. I pesci possono utilizzare fino al 7% del K contenuto nel mangime per pesci (Rafiee e Saad 2005). Tuttavia, il potassio non è necessario per i pesci che portano ad una bassa composizione di potassio del mangime per pesci e a livelli ancora più bassi di potassio disponibili per le piante (Graber e Junge 2009; Seawright et al. 1998; Suhl et al. 2016). Per fornire potassio, viene spesso utilizzato un tampone di pH KOH in quanto il pH spesso diminuisce in acquaponica a causa della nitrificazione (Graber e Junge 2009). In un sistema acquaponico piantato con pomodori, il potassio si è accumulato principalmente nei frutti (Schmautz et al. 2016).
**Magnesio (Mg), Calcio (Ca) e Zolfo (S) **
La fonte principale di Mg, Ca e S è l'acqua di rubinetto che facilita l'assorbimento delle piante in quanto i nutrienti sono già disponibili (Delaide et al. 2017). Il calcio è tuttavia presente in livelli insufficienti in acquaponica (Schmautz et al. 2015; Seawright et al. 1998) e viene aggiunto sotto forma di idrossido di calcio Ca (OH) sub2/sub (Timmons ed Ebeling 2013). Secondo Rafiee e Saad (2005), i pesci possono utilizzare in media il 26,8% del calcio e il 20,3% del magnesio presente nel mangime. Lo zolfo è spesso a bassi livelli nei sistemi acquaponici (Graber e Junge 2009; Seawright et al. 1998).
9.4.3 Cicli di micronutrienti
Il ferro (Fe), il manganese (Mn) e lo zinco (Zn) derivano principalmente dall'alimentazione dei pesci, mentre il boro (B) e il rame (Cu) derivano dall'acqua del rubinetto (Delaide et al. 2017). Nell'acquaponica, i micronutrienti chiave sono spesso presenti ma a livelli troppo bassi (Delaide et al. 2017), ed è quindi necessaria l'integrazione da fonti esterne di nutrienti (cap. 8). Le carenze di ferro si verificano molto spesso in acquaponica (Schmautz et al. 2015; Seawright et al. 1998; Fitzsimmons e Posadas; 1997 citato da Licamele 2009), soprattutto a causa della non disponibilità della forma di ioni ferrici. Questa carenza può essere risolta con l'uso di sideroforo batterico (cioè composti organici ferro-chelanti) prodotti da generi come Bacillus o Pseudomonas (Bartelme et al. 2018) o con l'integrazione di ferro con ferro chelato chimico per evitare precipitazioni di ferro.
9.4.4 Perdite di nutrienti
Ridurre la perdita di nutrienti è una sfida costante che i professionisti dell'acquaponica devono affrontare. La perdita di nutrienti si verifica in vari modi, ad esempio l'insediamento dei fanghi (37% delle feci e 18% dei mangimi non consumati) (Neto e Ostrensky 2015), le perdite di acqua, la denitrificazione, la volatilizzazione dell'ammoniaca, ecc. (Wongkiew et al. 2017). Ad esempio, Rafiee e Saad (2005) notano che il 24% del ferro, l'86% del manganese, il 47% dello zinco, il 22% del rame, il 16% del calcio, l'89% del magnesio, il 6% dell'azoto, il 6% del potassio e il 18% del fosforo contenuto nell'alimentazione dei pesci erano contenuti nei fanghi. I fanghi possono contenere fino al 40% dei nutrienti presenti nell'alimentazione (Yogev et al. 2016).
La denitrificazione può portare a una perdita del 25 -60% dell'azoto (Hu et al. 2015; Zou et al. 2016). La denitrificazione è anche legata alle condizioni anossiche (Madigan e Martinko 2007; van Lier et al. 2008) e ai bassi livelli di carbonio ed è responsabile della trasformazione del nitrato in nitrito, ossido nitrico (NO), ossido di azoto (NSub2/subo) e infine azoto gas (NSub2/sub) con flussi nell'atmosfera (ibid. ). La denitrificazione è condotta da diversi batteri eterotrofici facoltativi come Acromobacter, Aerobacter, Acinetobacter, Bacillus, Brevibacterium, Flavobacterium, Pseudomonas, Proteus e Micrococcus sp. (Gentile et al. 2007; Michaud et al. 2006; Wongkiew et al. 2017). Alcuni batteri possono eseguire sia la nitrificazione che la denitrificazione se i livelli di ossigeno disciolto sono inferiori a 0,3 mg/l (Fitzgerald et al. 2015; Wongkiew et al. 2017). La perdita di azoto può avvenire anche attraverso l'ossidazione anaerobica dell'ammonio (ANAMMOX), cioè l'ossidazione dell'ammonio in gas di dinitrogeno in presenza di nitrito (Hu et al. 2011).
Un'altra importante perdita di azoto che dovrebbe essere disponibile per le piante è il consumo di azoto da parte dei batteri aerobici eterotrofici presenti nei sistemi aquaponici. Infatti, l'azoto utilizzato da questi batteri viene perso per i batteri nitrificanti, e la nitrificazione viene quindi ostacolata (Blancheton et al. 2013). Questi batteri sono particolarmente presenti quando il rapporto C/N aumenta in quanto sono più competitivi e più capaci di colonizzare i media rispetto ai batteri autotrofici nitrificanti (Blancheton et al. 2013; Wongkiew et al. 2017).
9.4.5 Dinamica dei sistemi di bilanciamento dei nutrienti
La concentrazione di nutrienti dei due principali sottosistemi in un sistema acquaponico, vale a dire le vasche per pesci (acquacoltura) e la soluzione idroponica, deve essere bilanciata per ciascuna delle loro esigenze. Nei sistemi aquaponici chiusi, i nutrienti vengono trasportati dai pesci alle piante più o meno direttamente attraverso filtri (solitamente un filtro a tamburo o un colone e poi un biofiltro) per la nitrificazione. Tuttavia, il fabbisogno nutritivo delle colture e i nutrienti forniti dal sottosistema aquaponico non sono in equilibrio. Nei sistemi multi-loop e disaccoppiati (Chap. 8), è più facile fornire condizioni ottimali sia per le sezioni di pesce che per le piante. Attraverso la modellazione dei sistemi (Chap. 11), è possibile calcolare la dimensione ottimale dell'area idroponica alle vasche, ai biofiltri e ad altre attrezzature (Goddek e Körner 2019). Ciò è particolarmente importante per i sistemi multi-loop disaccoppiati che comprendono vari tipi di apparecchiature. Ad esempio, UASB (coperta di fanghi anaerobici a flusso rialzato) (Goddek et al. 2018) o unità di dissalazione (Goddek e Keesman 2018) devono essere dimensionate con attenzione come discusso nel capitolo 8 (./8-decoupled-aquaponics-systems.md). La mancata corrispondenza di base dei nutrienti forniti dall'ambiente ittico e delle esigenze delle colture deve essere rettificata ed equilibrata. Ai fini della concentrazione dei nutrienti, Goddek e Keesman (2018) hanno descritto un'unità di desalinizzazione appropriata (cap. 8). Questo approccio, tuttavia, risolve solo una parte del problema, in quanto il sistema perfettamente bilanciato è guidato da una velocità di evaporazione non dinamica ottenibile solo in camere chiuse e impianti perfettamente funzionanti. La realtà, tuttavia, è che l'evapotraspirazione della coltura (ETSUBC/sub) nei sistemi acquaponici basati su serre dipende fortemente da molteplici fattori quali il clima fisico e le variabili biologiche. ETSUBC/sub è calcolato per area della superficie del suolo coperta dalla coltura ed è calcolato per diversi livelli del baldacchino (z) integrando i flussi netti irradiativi, la resistenza dello strato limite, la resistenza allo stomata e il deficit della pressione di vapore sub, /sub nella tettoia (Körner et al. 2007) utilizzando il Penman — Equazione di Monteith. Questa equazione, tuttavia, calcola solo il flusso d'acqua attraverso il raccolto. L'assorbimento dei nutrienti può essere calcolato semplicemente assumendo che tutti i nutrienti diluiti nell'acqua siano assorbiti dal raccolto. In realtà, però, l'assorbimento di sostanze nutritive è una questione molto complicata. Diversi nutrienti hanno stati diversi, cambiando con parametri come il pH. Nel frattempo, la disponibilità di nutrienti alle piante dipende fortemente dal pH e dalle relazioni tra i nutrienti (ad es. disponibilità di K/Ca). Inoltre, il microbioma nella zona radicale gioca un ruolo importante (Orozco-Mosque et al. 2018) che non è ancora implementato nei modelli anche se alcuni modelli differenziano tra percorsi Phloem e Xilem. Pertanto, la grande quantità di nutrienti non è modellata in dettaglio per il bilanciamento dei nutrienti aquaponici e il dimensionamento dei sistemi. Il modo più semplice per stimare l'assorbimento dei nutrienti è l'ipotesi che i nutrienti siano assorbiti o assorbiti come disciolti nell'acqua di irrigazione e si applichino al metodo di calcolo ETSUBC/sub sopra spiegato e supponendo che non esistano resistenze chimiche, biologiche o fisiche specifiche per gli elementi. Di conseguenza, per mantenere l'equilibrio, tutti i nutrienti assorbiti dalla coltura come contenuti nella soluzione nutritiva devono essere aggiunti al sistema idroponico.
9.5 Conclusioni
Original publication · Pubblicato per la prima volta su FarmHub Learn · Aquaponics Food Production Systems
9.5.1 Inconvenienti attuali del ciclismo nutriente in Aquaponics
Nell'idroponica, la soluzione nutritiva viene determinata con precisione e l'input nutritivo nel sistema è ben compreso e controllato. Questo rende relativamente facile adattare la soluzione nutritiva per ogni specie vegetale e per ogni fase di crescita. In acquaponica, secondo la definizione (Palm et al. 2018), i nutrienti devono provenire almeno al 50% da mangimi non consumati per pesci, feci solide di pesce e escrezioni solubili di pesce, rendendo così più difficile il monitoraggio delle concentrazioni di nutrienti disponibili per l'assorbimento delle piante. Un secondo inconveniente è la perdita di sostanze nutritive attraverso diverse vie come la rimozione dei fanghi, il rinnovo dell'acqua o la denitrificazione. La rimozione dei fanghi induce una perdita di sostanze nutritive poiché molti nutrienti chiave come il fosforo spesso precipitano e vengono intrappolati nei fanghi solidi evacuati. Il rinnovamento dell'acqua, che deve avvenire anche se in piccole proporzioni, aggiunge anche alla perdita di nutrienti dal circuito acquaponico. Infine, la denitrificazione avviene a causa della presenza di batteri denitrificanti e delle condizioni favorevoli ai loro metabolismi.
9.5.2 Come migliorare il ciclismo nutriente?
Per concludere, il ciclo dei nutrienti deve ancora essere migliorato al fine di ottimizzare la crescita delle piante in acquaponica. Diverse opzioni sono quindi attualmente esplorate in cap. 8. Per evitare di perdere i nutrienti catturati nei fanghi, sono state sviluppate unità di remineralizzazione dei fanghi (cap. 10). L'obiettivo di queste unità è quello di estrarre i nutrienti catturati in forma solida nei fanghi e di reinserirli nel sistema sotto una forma che le piante possono assorbire (Delaide 2017). Un'ulteriore tecnica per ridurre la perdita di nutrienti sarebbe quella di favorire l'assorbimento delle piante attraverso la concentrazione della soluzione acquaponica (cioè la rimozione di una frazione dell'acqua per mantenere la stessa quantità di nutrienti ma in un volume d'acqua inferiore). Tale concentrazione potrebbe essere ottenuta mediante l'aggiunta di un'unità di dissalazione come parte del sistema acquaponico (Goddek e Körner 2019; Goddek e Keesman 2018). Infine, l'uso di sistemi decoupled/multi-loop consente condizioni di vita e di crescita ottimali per tutti i pesci, le piante e i microrganismi. Mentre alcune ricerche sono state intraprese in questo campo, si dovrebbero condurre ulteriori ricerche per comprendere meglio il ciclo dei nutrienti nell'acquaponica. In effetti, maggiori informazioni riguardanti i cicli esatti di ciascun macronutriente (quale forma, come può essere trasformato o meno dai microrganismi, come viene assorbito dalle piante in acquaponica) o l'influenza delle specie vegetali e pesci e dei parametri dell'acqua sui cicli nutritivi potrebbero aiutare notevolmente la comprensione di sistemi aquaponici.