Source material
الفصل التاسع دورة المغذيات في أنظمة أكوابونيكش
** ماتيلد إك، وأوليفر كورنر، والسيد هيسام جيجكلي**
ملخص في أكوابونيكش، تنشأ المغذيات بشكل رئيسي من تغذية الأسماك ومدخلات المياه في النظام. ويتم تناول جزء كبير من الأعلاف بواسطة الأسماك ويتم استخدامه في النمو والتمثيل الغذائي أو تفرز كبراز قابل للذوبان والصلبة، في حين أن بقية العلف غير المأكل تتحلل في الخزانات. وفي حين أن الإفرازات القابلة للذوبان متاحة بسهولة للنباتات، فإن البراز الصلب يحتاج إلى تمعدن بواسطة الكائنات الحية الدقيقة لكي يكون محتواه من المغذيات متاحاً لامتصاص النباتات. وبالتالي، فإن التحكم في تركيزات المغذيات المتاحة في الأحياء المائية أمر أكثر صعوبة منه في الزراعة المائية. وعلاوة على ذلك، فإن العديد من العوامل، من بين عوامل أخرى الأس الهيدروجيني ودرجة الحرارة وكثافة الضوء، تؤثر على توافر المغذيات وامتصاص النبات. حتى اليوم، ركزت معظم الدراسات على دورات النيتروجين والفوسفور. ومع ذلك، لضمان غلة المحاصيل الجيدة، من الضروري تزويد النباتات بمستويات كافية من جميع العناصر الغذائية الرئيسية. ولذلك فمن الضروري فهم ومراقبة دورات المغذيات في أكوابونيكش بشكل أفضل.
**الكلمات المفتاحية Aquaponics · دورة المغذيات · الذوبان · العمليات الميكروبيولوجية
- 9-1 مقدمة
- 9.2 أصل المغذيات
- 9.3 العمليات الميكروبيولوجية
- 9.4 توازن الكتلة: ماذا يحدث للمغذيات بمجرد دخولها إلى نظام Aquaponic؟
- 9-5 الاستنتاجات
- المراجع
—
[م. إك](mailto: mathilde.eck@uliege.be) · [م. ه. جيجكلي](mailto: mh.jijakli@uliege.be)
مختبر الأمراض النباتية المتكاملة والحضرية، جامعة لييج، Agro-Bio Tech، Gembloux، بلجيكا
سين - كورنر
معهد لايبنيز للمحاصيل النباتية والزخرفية، غروسبيرن، ألمانيا
© المؤلف (المؤلفون) 2019 231
غوديك وآخرون (المحررون), نظم إنتاج الأغذية Aquaponics, https://doi.org/10.1007/978-3-030-15943-6_9
—
المراجع
Bartelme RP, Oyserman BO, بلوم JE, سيبولفيدا فيليه OJ, نيوتن RJ (2018) تجريد التربة: نمو النبات تعزيز فرص علم الأحياء الدقيقة في الأحياء المائية. ميكروبيول الجبهة 9 (8). https://doi.org/10.3389/fmicb.2018.00008
Bittsanszky A, أوزنجر N, Gyulai G, ماثيس A, جونج R, فيلارويل M, Kotzen B, Komives T (2016) إمدادات المغذيات من النباتات في النظم المائية. الدراجة الإكوسيكليس 2 (1720). https://doi.org/10.19040/ ecocycles.v2i2.57
بلانشتون جي بي، أترامادال كي كي كي، ميشود إل، دوربكستيل إيه، فادشتاين أو (2013) نظرة ثاقبة على التجمعات البكتيرية في نظم الاستزراع المائي وآثارها. أكواك المهندس 53:30 —39
بويد CE (2015) لمحة عامة عن تغذية الاستزراع المائي: التأثيرات العالمية لاستخدام المكونات. تغذية براكت أكوا 3-25. https://doi.org/10.1016/B978-0-08-100506-4.00001-5
Bugbee B (2004) إدارة المغذيات في إعادة تدوير الاستزراع المائي. أكتا هورتيك 648:99 -112. https://doi.org/10.17660/ActaHortic.2004.648.12
Buzby KM، Lin LS (2014) نظم التحجيم المائي: موازنة امتصاص النبات مع إنتاج الأسماك. أكواك المهندس 63:39 -44. https://doi.org/10.1016/j.aquaeng.2014.09.002
Carsiotis M, Khanna S (1989) الهندسة الوراثية للنتربات الميكروبية. وكالة حماية البيئة في الولايات المتحدة، مختبر هندسة الحد من المخاطر، سينسيناتي
Cerozi BS, Fitzsimmons K (2017) الفوسفور النمذجة الديناميكية والتوازن الشامل في نظام أكوابونيكش. النظام الزراعي 153:94 —100. https://doi.org/10.1016/j.agsy.2017.01.020
ديمز H، ليبيديفا EV، بيفاك P، هان P، هيربولد C، ألبرتسن M، جيمليتش N، بالاتينزكي M، فيرهيليغ J، بولايف A، كيركغارد RH، فون بيرغن M، راتي T، بندنجر B، نيلسن H، فاغنر M (2015) النتريفيكاتيون كاملة من قبل -بكتيريا (نيتروسبيرا_) الطبيعة 528:504 https://doi.org/ 10.1038/nature16461
Davidson J، Good C، Barrows FT، Welsh C، Kenney PB، Summerfelt ST (2013) مقارنة تأثيرات تغذية حمية الحبوب أو وجبة السمك على جودة المياه، وإنتاج النفايات، وأداء تراوت قوس قزح Oncorhynchus mykiss ضمن نظم الاستزراع المائي ذات التبادل المنخفض. أكواك المهندس 52:45-57. https://doi.org/10.1016/J.AQUAENG.2012.08.001
Delaide B (2017) دراسة عن العناصر المعدنية المتاحة في أكوابونيكش، وتأثيرها على إنتاجية الخس والتحسين المحتمل لتوافرها. أطروحة دكتوراه Gembloux Agrobio Tech، جامعة لييج
ديلايد ب، غودديك S، غوت J، سويورت H، هيسام جيجكلي M، لالمان J، جونج R (2016) الخس (Lactuca sativa L. فار. Sucrine) أداء النمو في محلول أكوابوني مكمل يتفوق على الزراعة المائية. المياه 8. https://doi.org/10.3390/w8100467
Delaide B، Delhaye G، Dermience M، Gott J، Soyeurt H، Jijakli MH (2017) أداء إنتاج النباتات والأسماك، موازين كتلة المغذيات، استخدام الطاقة والمياه في صندوق PAFF، نظام أكوابوني صغير النطاق. أكواك المهندس 78:130 -139. https://doi.org/10.1016/j.aquaeng.2017. 06.002
Fitzgerald CM, Camejo P, Oshlag JZ, Noguera DR (2015) الأمونيا المؤكسدة المجتمعات الميكروبية في المفاعلات مع النترجة كفاءة في الأكسجين منخفض الذوبان. المياه القرار 70:38 -51. https://doi.org/10.1016/J.WATRES.2014.11.041
جاي F، فيراريسو S، Zambonino-Infante JL، Bargelloni L، Quentel C، Vandeputte M، Kaushik S، Cahu CL، Mazurais D (2011) آثار الاستبدال الكلي للنظام الغذائي القائم على الأسماك مع النظام الغذائي القائم على النبات على النسخ الكبدي من اثنين من باس البحر الأوروبي (Dicentrarrarrarrarrarchus labrax) halfsibfsibfassils تظهر نموا مختلفا معدلات مع النظام الغذائي القائم على النبات. علم الجينوم BMC 12:522. https://doi.org/10.1186/1471-2164-12-522
Gentile ME، لين نيمان J، Craddle CS (2007) ارتباط أنماط عدم الاستقرار في تجريد المفاعلات الحيوية المتكررة مع تحولات في الوفرة النسبية وأنماط إزالة النتريتريك لفئات معينة من السكان. ISME J 1:714-728. https://doi.org/10.1038/ismej.2007.87
Goddek S, Keesman KJ (2018) ضرورة تكنولوجيا تحلية المياه لتصميم وتحجيم أنظمة أكوابونيكش متعددة الحلقات. تحلية المياه 428:76-85. https://doi.org/10.1016/J.DESAL. 2017.11.024
Goddek S, Körner O (2019) نموذج محاكاة متكامل بالكامل من أكوابونيكش متعددة الحلقات: دراسة حالة لتحجيم النظام في بيئات مختلفة. نظم الزراعة 171:143
Goddek S, ديلايد B, مانكاسينغ U, Ragnarsdottir KV, Jijakli H, Thorarinsdottir R (2015) تحديات الأحياء المائية المستدامة والتجارية. الاستدامة 7:4199 -4224 https://doi.org/10.3390/su7044199
Goddek S, شماوتز Z, سكوت B, ديلايد B, كيسمان K, Wuertz S, Junge R (2016) تأثير الحمأة الأسماك اللاهوائية والهوائية supernatant على الخس المائي. الهندسة الزراعية 6:37 https://doi.org/10.3390/agronomy6020037
Goddek S, Delaide BPL, جويس A, Wuertz S, Jijakli MH, إجمالي A, إيدينغ EH, Bläser I, رويتر M, Keizer LCP وآخرون (2018) أداء تمعدن المواد الغذائية والحد من المواد العضوية من الحمأة القائمة على RAS في مفاعلات UASB-EGSB متتابعة. أكواك المهندس 83:10-19
Graber A، Junge R (2009) أنظمة Aquaponic: إعادة تدوير المغذيات من مياه الصرف الصحي للأسماك عن طريق إنتاج الخضروات. تحلية المياه 246:147 -156. https://doi.org/10.1016/j.desal.2008.03.048
Guangzhi G (2001) التوازن الشامل ونوعية المياه في خزانات الاستزراع المائي. جامعة الأمم المتحدة، برنامج التدريب على مصائد الأسماك، رييافيك
هو ب، شين L، شو X، Zheng P (2011) أكسدة الأمونيوم اللاهوائية (anammox) في النظم الإيكولوجية الطبيعية المختلفة. بيوتشيم سوك ترانس 39:1811-1816. https://doi.org/10.1042/BST20110711
هو Z، لي JW، تشاندران K، كيم S، بروتو AC، خانال SK (2015) تأثير الأنواع النباتية على استعادة النيتروجين في أكوابونيكش. الموارد الحيوية 188:92 —98. https://doi.org/10.1016/j.biortech. 2015.01.013
Hua K، مكتب DP (2012) استكشاف إمكانية القياس الكمي لتأثيرات مكونات البروتين النباتي في تغذية الأسماك باستخدام التحليل التلوي والنماذج الغذائية القائمة على المحاكاة. الاستزراع المائي 356-357:284-301. https://doi.org/10.1016/J.AQUACULTURE. 2012.05.003
Jorquera M، مارتينيز O، ماروياما F، مارشنر P، دي لا لوز مورا M (2008) التطبيقات التكنولوجية الحيوية الحالية والمستقبلية للبكتيريا Phytases والبكتيريا المنتجة للنباتات. الميكروبات إنفيرون 23:182 —191. https://doi.org/10.1264/jsme2.23.182
Körner O، Aaslyng JM، Andreassen AU، Holst N (2007) نمذجة المناخ المحلي للتحكم الديناميكي في المناخ الاحتباس الحراري. هورتسانس 42:272-279
Körner O, غوتزمان E, Kledal PR (2017) نموذج ديناميكي يحاكي التأثيرات التكافلية في الأنظمة المائية. أكتا هورتيك 1170:309-316
Kuhn DD، Drahos DD، Marsh L، Flick GJ (2010) تقييم منتج البكتريا النتريفيجة لتحسين فعالية النتروية في إعادة تدوير أنظمة الاستزراع المائي. Aquac المهندس 43:78 -82. https://doi.org/10.1016/j.Aquaeng.2010.07.001
لو كور KS, Valsami-جونز E, هوبس P, بارسونز SA (2005) تأثير الكالسيوم على حجم الكريستال ستروفيت, الشكل والنقاء. J كريست النمو 283:514-522. https://doi.org/10.1016/J.JCRYSGRO. 06.012
Lennard WA, Lennard WA, Leonard BV (2006) مقارنة بين ثلاثة نظم فرعية مائية مختلفة (الأسقف الحصى, تقنية الأغشية العائمة و المغذيات) في نظام اختبار Aquaponic. أكواك كثافة العمليات 14:539 -550. https://doi.org/10.1007/s10499-006-9053-2
Letelier-Gordo CO, Dalsgaard J, Suhr KI, Ekmann KS, Pedersen PB (2015) الحد من البروتين الغذائي:الطاقة (P:E) نسبة التغييرات الذوبان والتخمير من سمك السلمون المرقط قوس قزح (Oncorhynchus mykiss) البراز. أكواك المهندس 66:22 -29
Licamele J (2009) إنتاج الكتلة الأحيائية وديناميات المغذيات في نظام علم الأحياء المائية. أطروحة دكتوراه قسم الزراعة وهندسة النظم الحيوية، جامعة أريزونا
Losordo TM, Masser MP, Rakocy J (1998) إعادة تدوير نظم إنتاج صهاريج الاستزراع المائي: لمحة عامة عن الاعتبارات الحرجة. مركز البحوث الإقليمي رقم 451، الصفحات 18-31
Madigan MT, مارتينكو JM (2007) Biologie قصر الكائنات الحية الدقيقة, 11th edn. بيرسون للتعليم فرنسا، باريس
ميرياك أ، إيدينغ إي، شراما J، كامسترا A، فيريث جاج (2014) يمكن أن يغير تكوين الكربوهيدرات الغذائية إنتاج النفايات وحمل المرشحات الحيوية في أنظمة الاستزراع المائي. الاستزراع المائي 420-421:254-261. https://doi.org/10.1016/j.aquaculture.2013.11.018
ميشود L, بلانشتون JP, بروني V, بيدراهيتا R (2006) تأثير الكربون العضوي الجسيمي على المجموعات البكتيرية المتغايرة و كفاءة النترجة في المرشحات البيولوجية. أكواك المهندس 34:224-233. https://doi.org/10.1016/j.aquaeng.2005.07.005
مونغيا-فراغوزو P, Alatorre-جاكوم O, ريكو غارسيا E, توريس-باتشيكو I, كروز هيرنانديز A, أوكامبو فيلازكيز RV, غارسيا-تريخو JF, غيفارا-غونزاليس RG (2015) منظور لأنظمة أكوابونك: تقنيات «أوميك» لتحليل المجتمع الميكروبية. بيوميد ريس كثافة العمليات 2015:1. https://doi.org/10.1155/2015/480386
Neto MR, Ostrensky A (2015) تقدير حمولة المغذيات في نفايات النيل Tilapia Oreochromis niloticus (L.) تربى في أقفاص في الظروف المناخية الاستوائية. أكواك الدقة 46:1309 —1322. https://doi.org/10.1111/are.12280
أوروزكو مسجد MC، روشا غرانادوس MC، غليك BR، سانتويو G (2018) الهندسة الميكروبيوم لتحسين آلية التحكم الحيوي وتعزيز نمو النبات. ميكروبيول في الصحافة
النخيل HW, كناوس U, Appelbaum S, Goddek S, Strauch SM, Vermeulen T, Haissam Jijakli M, Kotzen B (2018) نحو الأحياء المائية التجارية: استعراض النظم, التصاميم, المقاييس والتسميات. أكواك كثافة العمليات 26:813-842
برابهو AS، فاجريا NK، بيرني رف، رودريغز فا (2007) الفوسفور وأمراض النبات. في: Datnoff LE, إلمر WH, هوبر DM (المحررون) التغذية المعدنية وأمراض النبات. الجمعية الأمريكية لعلم الأمراض النباتية، سانت بول، ص 45-55
Rafiee G, Saad CR (2005) إنتاج دورة المغذيات والحمأة خلال مراحل مختلفة من نمو البلطي الأحمر (Oreochromis sp.) في نظام الاستزراع المائي المعاد تدويره. الاستزراع المائي 244:109 -118. https://doi.org/10.1016/J.AQUACULTURE.2004.10.029
Rakocy JE، Shultz RC، Bailey DS، Thoman ES (2004) إنتاج Aquaponic من Tilapia والريحان: مقارنة نظام المحاصيل دفعة ومتداخلة. أكتا هورتيك 648:63 —69. https://doi.org/10. 17660/Actahortic.2004.648.8
Rakocy JE، Masser MP، Losordo TM (2006) إعادة تدوير أنظمة إنتاج صهاريج الاستزراع المائي: الأحياء المائية - دمج الأسماك والاستزراع النباتي. سراك بوبل جنوب ريج أكوا سنت 16. https://doi.org/454
Randall D, Tsui TK (2002) سمية الأمونيا في الأسماك. مار الملوث الثور 45:17-23. https://doi.org/10. 1016/S0025-326X (02) 00227-8
Resh HM (2013) إنتاج الأغذية المائية: دليل نهائي لبستاني المنزل المتقدم والمزارع المائي التجاري، 7 edn. الصحافة، بوكا راتون
Roosta HR, Hamidpour M (2011) آثار التطبيق الورقي لبعض المغذيات الكلية والصغرى على نباتات الطماطم في النظم المائية المائية المائية. Sci Hortic 129:396 —402. https://doi.org/ 10.1016/J.SCIENTA.2011.04.006
Roosta HR, Hamidpour M (2013) محتوى المغذيات المعدنية من نباتات الطماطم في أنظمة أكوابونك والمائية: تأثير التطبيق الورقي لبعض المغذيات الكلية والصغرى. J مصنع نوتر 36:2070 -2083. https://doi.org/10.1080/01904167.2013.821707
Ru D, Liu J, Hu Z, Zou Y, Jiang L, Cheng X, Lv Z (2017) تحسين الأداء المائي من خلال إضافة المغذيات الدقيقة والكلية. إنفيرون سي سي تلوث الدقة 24:16328 —16335. https://doi.org/10.1007/s11356-017-9273-1
Rurangwa E, Verdegem MCJ (2013) الكائنات الدقيقة في إعادة تدوير نظم الاستزراع المائي وإدارتها. القس أكواك 7:117-130. https://doi.org/10.1111/raq.12057
Schmautz Z، Graber A، Mathis A، Griessler Bulc T، Junge R (2015) إنتاج الطماطم في نظام أكوابوني: توازن الكتلة وإعادة تدوير المغذيات (مجردة)
شماوتز Z، لو F، ليبيش F، غرابر A، ماثيس A، بولك TG، جونج R (2016) إنتاجية الطماطم والجودة في أكوابونيكش: مقارنة بين ثلاث طرق مائية. المياه 8:1-22. https://doi.org/10.3390/w8110533
شماوتز Z، غرابر A، Jaenicke S، Goesmann A، Junge R، Smits THM (2017) التنوع الميكروبي في مقصورات مختلفة من نظام أكوابونيكش. قوس ميكروبيول 199:613. https://doi.org/10. 1007/s00203-016-1334-1
شنايدر O, Sereti V, Eding EH, Verreth JAJ (2004) تحليل تدفقات المغذيات في نظم الاستزراع المائي المكثفة المتكاملة. أكواك المهندس 32:379 —401. https://doi.org/10.1016/j.aquaeng.2004. 09.001
سي رايت دي, Stickney RR, Walker RB (1998) ديناميات المغذيات في التكنولوجيا المتكاملة - النظم المائية. الاستزراع المائي 160:215-237
Shoda M (2014) النتريفيكاتيون متغاير والتهوية الهوائية التي كتبها Alcaligenes البراز. J بيوسسي بيونغ 117:737-741. https://doi.org/10.5772/68052
سومرفيل C، ستانكوس A، لوفاتيلي A (2014) إنتاج الأغذية المائية الصغيرة الحجم. الاستزراع المتكامل للأسماك والنباتات منظمة الأمم المتحدة للأغذية والزراعة، روما
سونيفيلد C، فوغت W (2009) التغذية النباتية لمحاصيل الاحتباس الحراري. سبرينجر، دوردريشت/هايدلبرغ/لندن/نيويورك
سوغيتا H، ناكامورا H، شيمادا T (2005) المجتمعات الميكروبية المرتبطة بمواد الترشيح في نظم الاستزراع المائي لأسماك المياه العذبة. الاستزراع المائي 243:403 https://doi.org/10.1016/j.aquaculture.2004.09.028
Suhl J، Dannehl D، Kloas W، Baganz D، Jobs S، Scheibe G، Schmidt U (2016) أكوابونيكش المتقدمة: تقييم إنتاج الطماطم المكثف في أكوابونيكش مقابل الزراعة المائية التقليدية. المياه الزراعية ماناج 178:335 -344. https://doi.org/10.1016/j.agwat.2016.10.013
Tacon AGJ, Metian M (2008) لمحة عامة عالمية عن استخدام وجبة السمك وزيت السمك في الأعلاف المائية المركبة صناعيا: الاتجاهات والآفاق المستقبلية. الاستزراع المائي 285:146 -158. https://doi.org/10.1016/j.aquaculture.2008.08.015
Timmons MB, Ebeling JM (2013) إعادة تدوير الاستزراع المائي. إيثاكا للنشر، نيويورك
Turcios AE, Papenbrock J (2014) المعالجة المستدامة للنفايات السائلة المائية - ماذا يمكننا أن نتعلم من الماضي للمستقبل؟ الاستدامة 6:836-856. https://doi.org/10.3390/su6020836 فان لير JB, محمود N, زيمان G (2008) في: Henze M, فان Losdrecht MCM, Ekama GA, Brdjanovic D (المحررون) معالجة مياه الصرف الصحي اللاهوائية, في: معالجة مياه الصرف الصحي البيولوجية: المبادئ, النمذجة والتصميم. IWA النشر, لندن. ISBN: 9781843391883
Van Rijn J (2013) معالجة النفايات في إعادة تدوير أنظمة الاستزراع المائي. أكواك المهندس 53:49 -56. https://doi.org/10.1016/J.AQUAENG.2012.11.010
ونغكيو S, هو Z, تشاندران K, لي JW, خانال SK (2017) التحولات النيتروجين في أنظمة أكوابونك: مراجعة. Aquac المهندس 76:9 —19. https://doi.org/10.1016/j.aquaeng.2017.01. 004
شو G، فان X، ميلر AJ (2012) استيعاب النيتروجين النباتي وكفاءة الاستخدام. أنو القس النبات بيول 63:153 -182. https://doi.org/10.1146/annurev-arplant-042811-105532
يلدز HY، روبينا L، بيرهونن J، مينتي E، دومينغيز D، باريسي G (2017) رفاه الأسماك في أنظمة أكوابونك: علاقتها بجودة المياه مع التركيز على الأعلاف والبراز—استعراض. المياه 9. https://doi.org/10.3390/w9010013
يوغيف U, بارنز A, إجمالي A (2016) تحليل العناصر الغذائية وتوازن الطاقة لنموذج مفاهيمي من ثلاث حلقات خارج الشبكة, أكوابونيكش. المياه 8. https://doi.org/10.3390/w8120589
Zekki H، Gauthier L، Gosselin A (1996) النمو والإنتاجية والتكوين المعدني للطماطم المسببة للاحتباس الحراري المزروعة بالماء، مع أو بدون إعادة تدوير محلول المغذيات. جيه آم سوك هورتيك سي سي سي 121:1082 -1088
Zou Y, Hu Z, Zhang J, Xie H, Guimbaud C, Fang Y (2016) آثار الأس الهيدروجيني على تحولات النيتروجين في أكوابونيكش القائمة على وسائل الإعلام. بيوريسور تكنول 210:81 -87. https://doi.org/10.1016/ J.BIORTECH.2015.12.079
وصول مفتوح هذا الفصل مرخص بموجب شروط الترخيص الدولي للمشاع الإبداعي 4.0 (http://creativecommons.org/licenses/by/4.0/)، الذي يسمح بالاستخدام والمشاركة والتكيف والتوزيع والاستنساخ بأي وسيلة أو شكل، كما طالما أنك تعطي الائتمان المناسب للمؤلف الأصلي (المؤلفين) الأصلي والمصدر، وتوفير وصلة لترخيص المشاع الإبداعي والإشارة إلى ما إذا كانت قد أجريت تغييرات.
يتم تضمين الصور أو مواد الطرف الثالث الأخرى في هذا الفصل في ترخيص المشاع الإبداعي الخاص بالفصل، ما لم يذكر خلاف ذلك في خط ائتمان للمادة. إذا لم يتم تضمين المواد في ترخيص المشاع الإبداعي الخاص بالفصل ولم يكن الاستخدام المقصود مسموحًا به بموجب اللوائح القانونية أو يتجاوز الاستخدام المسموح به، فستحتاج إلى الحصول على إذن مباشرة من صاحب حقوق الطبع والنشر.
Aquaponics Food Production Systems contributors.
عرض الإصدار الأصلي · Creative Commons Attribution 4.0
أُعيد تنسيق هذه النسخة من المكتبة ودمجها من المصدر الأصلي.
9-1 مقدمة
Original publication · نُشر لأول مرة على FarmHub Learn · Aquaponics Food Production Systems
توفر أنظمة Aquaponic مزايا مختلفة عندما يتعلق الأمر بإنتاج الأغذية بطريقة مبتكرة ومستدامة. وإلى جانب الآثار التآزرية لزيادة تركيز COSUB2/الفرعية الجوي للمحاصيل المسببة للاحتباس الحراري وانخفاض إجمالي استهلاك الطاقة الحرارية عند زراعة الأسماك والمحاصيل في نفس المكان (Körner et al. 2017)، فإن أكوابونيكش لها ميزتان رئيسيتان لركوب المغذيات. أولا، إن الجمع بين نظام إعادة تدوير الاستزراع المائي مع الإنتاج المائي يتجنب تصريف النفايات السائلة للاستزراع المائي المخصبة بالنيتروجين والفوسفور الذائب إلى مياه جوفية ملوثة بالفعل (Buzby and Lin 2014؛ Guangzhi 2001؛ van Rijn 2013)، وثانيا، يسمح بتسميد المحاصيل الخالية من التربة مع ما يمكن اعتباره حلا عضويا (Goddek et al. 2015; Schneider et al. 2004; Yogev et al. 2016) بدلا من استخدام الأسمدة ذات الأصل المعدني المصنوعة من الموارد الطبيعية المستنفدة (Schmautz et al. 2016; Chap. 2). وعلاوة على ذلك، فإن الأحياء المائية تنتج نموا نباتيا مماثلا بالمقارنة مع الزراعة المائية التقليدية على الرغم من انخفاض تركيزات معظم المغذيات في مياه الاستزراع المائي (Graber and Junge 2009؛ Bittsanszky et al. 2016؛ Delaide et al. 2016)، ويمكن أن يكون الإنتاج أفضل من التربة (Rakocy et al. 2004). و يعتقد أن زيادة تركيزات COSUB2/الفرعية في البيئة الجوية و التغيرات في المناطق الأحيائية لمنطقة الجذور هي الأسباب الرئيسية لذلك. وبالإضافة إلى ذلك، أفادت التقارير بأن المحتوى المعدني والجودة التغذوية للطماطم التي تزرع في الماء تعادل أو أعلى من المحتوى المعدني للطماطم المزروعة تقليديا (Schmautz et al. 2016).
وعلى الرغم من وجود اثنين من الأصول الجذابة (أي إعادة تدوير النفايات السائلة في الاستزراع المائي واستخدام الأسمدة العضوية)، إلا أن استخدام النفايات السائلة للاستزراع المائي يزيد من تحدي مراقبة المغذيات داخل المحلول. في الواقع، من الصعب التحكم في تكوين المحلول حيث تنبع المغذيات من التحلل البيولوجي للمادة العضوية بدلاً من متابعة تطور تركيز المغذيات في محلول مائي مدروس بدقة يعتمد على المركبات المعدنية (Bittsanszky et al. 2016; Timmons و Ebeling 2013). وعلاوة على ذلك، تختلف الاحتياجات التغذوية للنبات خلال فترة النمو وفقا للمراحل الفسيولوجية، ومن الضروري تلبية هذه الاحتياجات لزيادة الغلة إلى أقصى حد (Bugbee 2004؛ Zekki et al. 1996؛ الفصل 4).
ومن أجل إعادة تدوير النفايات السائلة في الاستزراع المائي لإنتاج الكتلة الحيوية النباتية، من الضروري تحسين معدلات إعادة تدوير الفوسفور والنيتروجين (Goddek et al. 2016؛ Graber and Junge 2009؛ Chap. 1). ويمكن أن تؤثر عوامل عديدة على ذلك، مثل أنواع الأسماك، وكثافة الأسماك، ودرجة حرارة المياه، ونوع النباتات، ومجتمع الميكروبات (المرجع نفسه). ولذلك، من الأهمية بمكان فهم عمل دورات المغذيات في الأحياء المائية (Seawrit et al. 1998). يهدف هذا الفصل إلى شرح أصول المغذيات في النظام المائي، ووصف دورات المغذيات وتحليل أسباب فقدان المغذيات.
9.2 أصل المغذيات
Original publication · نُشر لأول مرة على FarmHub Learn · Aquaponics Food Production Systems
والمصادر الرئيسية للمغذيات في النظام المائي هي علف الأسماك والمياه المضافة (التي تحتوي على مغ، كاليفورنيا، S) (انظر القسم 9-3-2.) في النظام (Delaide et al. 2017; Schmautz et al. 2016) كما هو موضح بمزيد من التفصيل في الفصل 13. وفيما يتعلق بعلف الأسماك، هناك نوعان رئيسيان: الأعلاف القائمة على الأسماك والأعلاف النباتية. دقيق السمك هو النوع التقليدي من الأعلاف المستخدمة في الاستزراع المائي حيث تعتمد الدهون والبروتينات على وجبة السمك وزيت السمك (Geay et al. 2011). ومع ذلك، فقد أُثيرت منذ بعض الوقت شواغل بشأن استدامة هذه الأعلاف، ولفت الانتباه إلى النظم الغذائية النباتية (بويد 2015؛ ديفيدسون وآخرون 2013؛ هوا وبيرو 2012؛ تاكون وميتيان 2008). وكشفت دراسة تحليلية أجرتها هوا وبوريس (2012) أن استخدام البروتينات النباتية في علف الأسماك يمكن أن يؤثر على نمو الأسماك إذا ما أدمجت بنسب عالية. في الواقع، يمكن أن يكون للبروتينات النباتية تأثير على قابلية الهضم ومستويات العوامل المضادة للتغذية من الأعلاف. على وجه الخصوص، الفوسفور الناشئ من النباتات وبالتالي في شكل فيتاتس لا يستفيد، على سبيل المثال، سمك السلمون، سمك السلمون المرقط والعديد من أنواع الأسماك الأخرى (Timmons و Ebeling 2013). وليس من المستغرب أن تعتمد هذه الملاحظة بشكل كبير على أنواع الأسماك وعلى جودة المكونات (Hua and Bureau 2012). ومع ذلك، لا يُعرف سوى القليل عن تأثير تكوين الأعلاف السمكية المتفاوتة على غلة المحاصيل (يلدز وآخرون 2017).
تتكون العلف التقليدي للأسماك من 6 إلى 8 مكونات ماكرو وتحتوي على نسبة 6 إلى 8% من النيتروجين العضوي و1.2% من الفوسفور العضوي و40-45% من الكربون العضوي (تيمونز وEbeling 2013) مع حوالي 25% من البروتين للأسماك العاشبة أو النهمة وحوالي 55% من البروتين للأسماك الآكلة (بويد 2015). يمكن أن تكون الدهون الأسماك أو النباتات القائمة أيضا (بويد 2015).
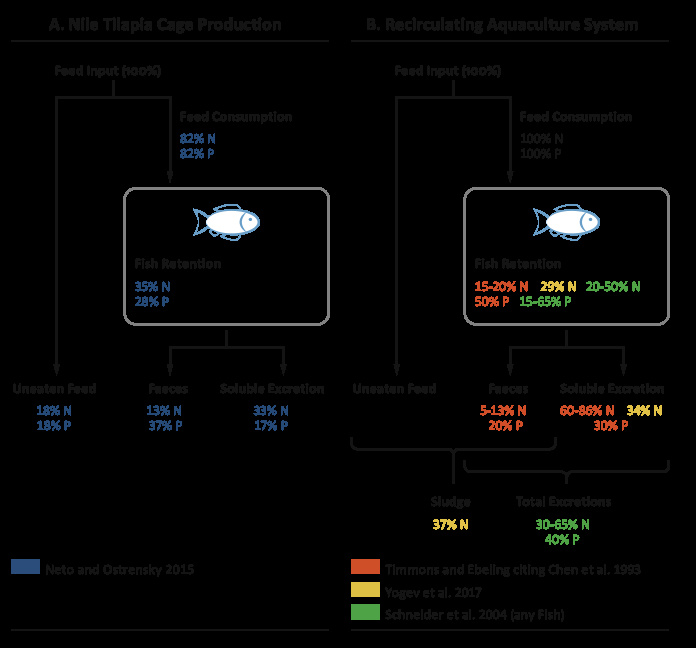
الشكل 9.1 التدفق البيئي للنيتروجين والفوسفور في% لإنتاج القفص النيل-البلطي (بعد نيتو وأوسترينسكي 2015) و (ب) إنتاج RAS (من مصادر متنوعة)
وبمجرد إضافة علف الأسماك إلى النظام، فإن جزءا كبيرا منه تؤكل من الأسماك ويستخدم إما للنمو والتمثيل الغذائي أو تفرز كبراز قابل للذوبان والصلبة، في حين أن بقية العلف المعطاة تتحلل في الخزانات (Goddek et al. 2015; Schneider et al. 2004) (الشكل 9-1). في هذه الحالة، يتم حل بقايا العلف والمنتجات الأيضية جزئياً في المياه المائية المائية، مما يمكن النباتات من امتصاص العناصر الغذائية مباشرة من محلول أكوابونك (Schmautz et al. 2016).
في معظم أنظمة الزراعة (الفصول 7 و 8)، يمكن إضافة المغذيات لاستكمال الحل المائي وضمان مطابقة أفضل مع احتياجات النباتات (Goddek et al. 2015). في الواقع، حتى عندما يقترن النظام، فمن الممكن إضافة الحديد أو البوتاسيوم (التي غالبا ما تكون غير موجودة) دون الإضرار بالأسماك (Schmautz et al. 2016).
9.2.1 بقايا علف الأسماك والبراز
من الناحية المثالية، يجب أن تستهلك جميع العلف المعطى من قبل الأسماك (الشكل 9.1). ومع ذلك، فإن جزءا صغيرا (أقل من 5٪ (يوغيف وآخرون 2016)) غالبا ما يترك للتحلل في النظام ويساهم في تحميل المغذيات من الماء (Losordo et al. 1998؛ Roosta وHamidpour 2013؛ Schmautz et al. 2016)، وبالتالي استهلاك الأكسجين المذاب والإفراج عن ثاني أكسيد الكربون والأمونيا (Losordo et al. 1998) ، من بين أمور أخرى. تكوين بقايا تغذية الأسماك يعتمد على تكوين الأعلاف.
ومن الناحية المنطقية، يعتمد تكوين براز الأسماك على النظام الغذائي للأسماك الذي يؤثر أيضاً على نوعية المياه (Buzby and Lin 2014؛ Goddek et al. 2015). ومع ذلك، فإن الاحتفاظ بالمغذيات في الكتلة الحيوية للأسماك يعتمد إلى حد كبير على أنواع الأسماك، ومستويات التغذية، وتكوين العلف، وحجم الأسماك، ودرجة حرارة النظام (شنايدر وآخرون 2004). ففي درجات الحرارة المرتفعة، على سبيل المثال، تتسارع عملية التمثيل الغذائي للأسماك مما يؤدي إلى المزيد من العناصر الغذائية الموجودة في الجزء الصلب من البراز (Turcios and Papenbrock 2014). تعتمد نسبة المغذيات المفرزة أيضًا على جودة النظام الغذائي وهضمه (Buzby و Lin 2014). وينبغي النظر بعناية في هضم علف الأسماك وحجم البراز ونسبة التسوية لضمان توازن جيد في النظام وزيادة غلة المحاصيل إلى أقصى حد (يلدز وآخرون 2017). وفي الواقع، على الرغم من أنه من الأولويات أن يتم اختيار علف الأسماك بعناية لتناسب احتياجات الأسماك، فإنه يمكن أيضا اختيار مكونات الأعلاف لتناسب احتياجات النبات عندما لا يحدث أي فرق في الأسماك (Goddek et al. 2015; Licamele 2009; Seawrit et al. 1998).
9-3 العمليات الميكروبيولوجية
Original publication · نُشر لأول مرة على FarmHub Learn · Aquaponics Food Production Systems
9.3.1 حل
ويتألف الحل من تحطيم الجزيئات العضوية المعقدة التي تؤلف نفايات الأسماك وتغذي بقايا الطعام إلى مغذيات في شكل معادن أيونية يمكن للنباتات استيعابها (Goddek et al. 2015; Somerville et al. 2014). وفي كل من الاستزراع المائي (Sugita et al. 2005؛ Turcios and Papenbrock 2014)، وفي الأحياء المائية، تتم عملية الذوبان بشكل رئيسي بواسطة بكتيريا متغايرة التغذية (van Rijn 2013; Chap. 6) التي لم يتم تحديدها بشكل كامل بعد (Goddek et al. 2015). وقد بدأت بعض الدراسات في فك رموز تعقيد مجتمعات البكتيريا هذه (Schmautz et al. 2017). في الاستزراع المائي الحالي، أكثر البكتيريا الملاحظة شيوعاً هي Rhizobium sp., Flavobacterium sp., Sphingobacterium sp., Comamonas sp., Acinetobacterium sp., Aeromonas sp. (مونغيا - فراغوزو و و آخرون 2015, و سوغيتا و آخرون 2005). ويمكن أن يتمثل أحد الأمثلة على الدور الرئيسي للبكتيريا في علم الأحياء المائية في تحويل النباتات غير القابلة للذوبان إلى فوسفور (P) المتاح لامتصاص النباتات من خلال إنتاج فيتاسيس الموجودة بشكل خاص في ga-proteobacteria (Jorquera et al. 2008). (يلزم إجراء المزيد من البحوث في هذا المجال). ويمكن أيضا أن تكون العناصر الغذائية الأخرى من P محاصرة كمواد صلبة وإخلاء من النظام مع الحمأة. وبالتالي، تُبذل جهود لإعادة تأهيل هذه الحمأة بمفاعلات UASB-EGSB من أجل إعادة إدخال المغذيات في النظام المائي (Delaide 2017؛ Goddek et al. 2016؛ Chap. 10). وعلاوة على ذلك، لا يتم إطلاق معادن مختلفة بنفس المعدل، اعتماداً على تركيبة العلف (LetelierGordo et al. 2015)، مما يؤدي إلى رصد أكثر تعقيداً لتركيزها في المحلول المائي (Seawrit et al. 1998).
9.3.2 النترجة
مصدر النيتروجين الرئيسي في النظام المائي هو تغذية الأسماك والبروتينات التي تحتوي عليها (Goddek et al. 2015؛ Ru et al. 2017؛ Wongkiew et al. 2017؛ Yildiz et al. 2017). من الناحية المثالية، يجب أن تؤكل 100٪ من هذه العلف من قبل الأسماك. ومع ذلك، لوحظ أن الأسماك لا تستخدم سوى حوالي 30 في المائة من النيتروجين الموجود في العلف المعطى (Rafiee and Saad 2005). وتستخدم الأعلاف التي يتم تناولها جزئياً للاستيعاب والتمثيل الغذائي (Wongkiew et al. 2017)، بينما تفرز الباقي إما عن طريق الخياشيم أو عن طريق البول والبراز (Ru et al. 2017). النيتروجين الذي يفرز من خلال الخياشيم هو أساسا في شكل الأمونيا، NHSub3/sub (Wongkiew et al. 2017؛ Yildiz et al. 2017)، في حين يتكون البول والبراز من النيتروجين العضوي (Wongkiew et al. 2017) الذي يتحول إلى الأمونيا بواسطة البروتياز والديناميناز (Sugita et al. 2005). بشكل عام، تفرز الأسماك النيتروجين تحت شكل تان، أي NHSub3/sub و NHSub4/subsup+/سوب. التوازن بين NHSub3/sub و NHSub4/subsup+/sup يعتمد في الغالب على الرقم الهيدروجيني ودرجة الحرارة. الأمونيا هي النفايات الرئيسية الناتجة عن هدم الأسماك من بروتينات الأعلاف (يلدز وآخرون 2017).
النتريفيكاتيون هي عملية من خطوتين يتم خلالها تحويل الأمونيا NHSub3/sub أو الأمونيوم NHSUB4/subsup+/سوب تفرز من الأسماك أولا إلى النتريت nosub2/subsup-/سوب ثم إلى نترات NOSUB3/subsup-/سوب بواسطة البكتيريا الذاتية التخليقية الكيميائية الهوائية محددة. وهناك حاجة إلى توافر كبير من الأكسجين المذاب لأن النتريك يستهلك الأكسجين (Carsiotis and Khanna 1989؛ Madigan and Martinko 2007؛ Shoda 2014). يتم تنفيذ الخطوة الأولى من هذا التحول من قبل البكتيريا المؤكسدة الأمونيا (AOB) مثل Nitrosomonas، Nitrosococcus، Nitrosospira، Nitrosoobus و Nitrosovibrio. يتم تنفيذ الخطوة الثانية من قبل البكتيريا المؤكسدة النتريت (NOB) مثل Nitrobacter، Nitrococcus، Nitrospira و Nitrospina (رورانغوا وفيرديجيم 2013؛ تيمونس وEbeling 2013؛ ونغكيو وآخرون. 2017). Nitrospira يستنتج حاليا أن يكون نتريفير كامل، أي أن تشارك في إنتاج كل من النتريت والنترات (Daims et al. 2015). ويمكن العثور على نفس البكتيريا في كل من الاستزراع المائي والنظم المائية (Wongkiew et al. 2017). توجد هذه البكتيريا بشكل رئيسي في الأفلام الحيوية المثبتة على الوسائط المكونة للمرشح الحيوي ولكن يمكن ملاحظتها أيضًا في الأجزاء الأخرى للنظام (Timmons و Ebeling 2013).
ويكتسي النتريت أهمية قصوى في علم الأحياء المائية حيث أن الأمونيا والنتريت سامة للغاية بالنسبة للأسماك: 0.02-0.07 ملغم/لتر من الأمونيا والنيتروجين كافية لمراقبة الضرر في أسماك المياه الدافئة، وينبغي أن يبقى النيتروجين أقل من 1 ملغم/لتر (Losordo et al. 1998؛ Timmons وEbeling 2013). تؤثر الأمونيا على الجهاز العصبي المركزي للأسماك (راندال وتسوي 2002؛ تيمونز وEbeling 2013)، في حين أن النتريت يسبب مشاكل في تثبيت الأكسجين (لوسوردو وآخرون 1998). ومع ذلك، فإن النيترات- النيتروجين يتم تحمله من قبل الأسماك حتى 150-300 ملغ/لتر (Goddek et al. 2015؛ Graber and Junge 2009؛ Yildiz et al. 2017).
يحدث النتروية في الغالب في المرشحات الحيوية (Losordo et al. 1998؛ Timmons و Ebeling 2013). لذلك، عند بدء تشغيل نظام، فمن المستحسن لتشغيل النظام دون الأسماك من أجل السماح للسكان المتزايد ببطء من البكتيريا النتريفينغ لإنشاء (تيمونس و إبيلينغ 2013؛ ونغكيو وآخرون. 2017). ومن الضروري أيضا تجنب، إلى أقصى حد ممكن، وجود المواد العضوية في المرشحات الحيوية من أجل منع نمو البكتيريا غير الغذائية ذات القدرة التنافسية العالية (تيمونز و Ebeling 2013). وبدلاً من ذلك، يمكن إضافة مزيج تجاري من بكتيريا النتريفينغ إلى النظام، قبل التخزين، للتعجيل بعملية الاستعمار (Kuhn et al. 2010). ومع ذلك، توجد أيضًا أنظمة أكوابونية صغيرة بدون فلتر بيولوجي. في هذه النظم، تشكل البكتيريا النتريفينغ الأفلام الحيوية للأسطح المتاحة (مثل جدران المقصورة المائية، الوسائط الخاملة عند استخدام تقنية سرير الوسائط) (Somerville et al. 2014).
9.4 التوازن الشامل: ماذا يحدث للمغذيات بمجرد دخولها في نظام أكوابونك؟
Original publication · نُشر لأول مرة على FarmHub Learn · Aquaponics Food Production Systems
9.4.1 السياق
ويستند عمل النظم المائية على التوازن الديناميكي لدورات المغذيات (Somerville et al. 2014). ولذلك فمن الضروري فهم هذه الدورات من أجل تحسين إدارة النظم على النحو الأمثل. النباتات التي تنمو المائية لديها متطلبات محددة، والتي ينبغي الوفاء بها خلال مراحل نموها المختلفة (Resh 2013). ولذلك، يجب رصد تركيزات المغذيات في مختلف أقسام النظام عن كثب، وينبغي استكمال المغذيات لمنع أوجه القصور (Resh 2013؛ Seawright et al. 1998) إما في مياه النظام أو عن طريق استخدام الأوراق (Roosta and Hamidpour 2011).
ووفقاً لـ Delaide et al. (2016)، في بعض الحالات، يمكن أن يؤدي تكميل المحلول المائي بالمغذيات المعدنية من أجل الوصول إلى نفس تركيزات المغذيات كما هو الحال في الزراعة المائية إلى غلات أعلى من تلك التي تحققت في الزراعة المائية. الخطوة الأولى التي يجب اتخاذها نحو نظام متوازن هي التصميم الصحيح والتحجيم النسبي للمقصورات (Buzby و Lin 2014). إذا كانت المقصورة المائية صغيرة جدا بالمقارنة مع خزانات الأسماك، ثم المواد الغذائية سوف تتراكم في الماء ويمكن أن تصل إلى مستويات سامة. وغالباً ما تستخدم نسبة معدل الأعلاف (أي كمية علف الأسماك في النظام القائم على سطح زراعة النبات ونوع النبات) في عملية التحجيم الأولى للنظام (Rakocy et al. 2006؛ Somerville et al. 2014). ومع ذلك، ووفقاً لما ذكره سي رايت وآخرون (1998)، لا يمكن الوصول إلى نسبة نبات/أسماك تسمح بالتوفيق الأمثل لاحتياجات النباتات إذا تم استخدام علف الأسماك فقط كمدخل. للتأكد من أن النظام متوازن بشكل جيد ويعمل بشكل صحيح، تعتمد طرق الرصد عادة على دورة النيتروجين (Cerozi and Fitzsimmons 2017؛ Somerville et al. 2014)، ولكن لضمان الأداء الأمثل للنظام، من الضروري مراقبة توازن المغذيات الكبيرة الأخرى عن كثب ( N، P، K، Ca، Mg، S) والمغذيات الدقيقة (Fe، Zn، B، Mn، Mo، Cu) (Resh 2013؛ Somerville et al. 2014؛ Sonneveld وVoogt 2009) كذلك. وقد بدأت الدراسات الحديثة (ديلايد وآخرون (2017)، شماوتز وآخرون (2015، 2016)) في معالجة هذا الموضوع. قارن شماوتز وآخرون (2015، 2016) تأثير ثلاثة تخطيطات مائية مختلفة (أي تقنية أغشية المغذيات (NFT)، الطوافة العائمة والري بالتنقيط) على امتصاص المغذيات من الطماطم المائية. كان الري بالتنقيط هو النظام الذي ينتج غلات أفضل قليلا مع الطماطم. وكان المحتوى المعدني للثمار (P، K، Ca، Mg) يعادل القيم التقليدية على الرغم من أن محتويات الحديد والزنك كانت أعلى. بيد أن مستويات الأوراق كانت أقل من P و K و S و Ca و Mg و Fe و Cu و Zn مما كانت عليه في الزراعة التقليدية. يتبع ديلايد وآخرون (2016) دورات المغذيات الكلية والمغذيات الدقيقة في نظام أكوابوني مقترن. لاحظوا أن K، P، Fe، Cu، Zn، Mn و Mo كانت تفتقر إلى حل aquaponic، في حين تراكمت بسرعة N، Ca، B و Na. وأشار Graber and Junge (2009) إلى أن المحلول المائي يحتوي على ثلاثة أضعاف أقل من النيتروجين وعشرة أضعاف الفوسفور أقل من المحلول المائي. أما بالنسبة للبوتاسيوم (K)، فقد كان أقل 45 مرة مقارنة بالزراعة المائية. ومع ذلك، فقد حصلوا على غلات مماثلة على الرغم من أن النوعية كانت أسوأ بسبب نقص البوتاسيوم (K).
العوامل المؤثرة على دورات المغذية
تؤثر كثافة الضوء ودرجة حرارة منطقة الجذر ودرجة حرارة الهواء وتوافر المغذيات ومرحلة النمو ومعدل النمو على امتصاص النبات للمغذيات (Buzby and Lin 2014). وأظهرت التجارب التي أجراها شماوتز وآخرون (2016) ولينارد وليونارد (2006) أن الطريقة المائية يمكن أن تلعب أيضاً دوراً في قدرة النبات على امتصاص المغذيات، ولذلك فمن الضروري مطابقة نظام النمو مع نوع الخضروات التي تزرع. وبالتالي فإن NFT وDWC (زراعة المياه العميقة - الطوف) مناسبان للخضر الورقية، في حين أن الري بالتنقيط على ألواح الصوف الصخري هو أكثر ملاءمة لخضروات الفواكه (Resh 2013).
9.4.2 دورات المغذيات الكبيرة
** الكربون (C) **
يتم توفير الكربون للأسماك عن طريق الأعلاف (Timmons و Ebeling 2013) وإلى النباتات عن طريق تثبيت Cosub2/sub. يمكن للأسماك استخدام 22% من الكربون الموجود في علف الأسماك لزيادة الكتلة الحيوية والتمثيل الغذائي. أما بقية الكربون الذي تم تناوله فيتم تخفيضه في شكل Cosub2/sub (52%) أو تفرز في شكل مذاب (0.7-3%) وصلبة (25%) (Timmons وEbeling 2013). يمكن استخدام Cosub2/sub المنتهية الصلاحية من قبل النباتات لمصدر الكربون الخاص بها كذلك (Körner et al. 2017). يتم ترك الجزء غير المأكل من كربون التغذية ليتحلل في النظام. كما يمكن أن يؤثر نوع الكربوهيدرات الموجودة في علف الأسماك (مثل السكريات النشا أو السكريات غير النشا) على قابلية هضم العلف والتحلل الحيوي للنفايات في الاستزراع المائي أو النظام المائي (Meriac et al. 2014).
** النيتروجين (N) **
يتم امتصاص النيتروجين من قبل النباتات إما في شكل نترات أو الأمونيوم (سونيفيلد وفوغت 2009؛ شو وآخرون 2012) اعتمادا على التركيز وعلم وظائف الأعضاء النباتية (فينك وفيلر 1998 استشهد بها ونغكيو وآخرون 2017). لا ينبغي إغفال الروابط بين النباتات والكائنات الدقيقة لأن النباتات تؤثر على وجود الكائنات الحية الدقيقة في أكوابونيكش، والكائنات الحية الدقيقة يمكن أن تلعب دورا هاما في قدرة امتصاص النيتروجين للنباتات (ونغكيو وآخرون 2017). يتأثر امتصاص النباتات للنيتروجين بتركيز ثاني أكسيد الكربون المحيط (Zhang et al. 2008 استشهد به Wongkiew et al. 2017).
**الفوسفور (P) **
الفوسفور هو واحد من العناصر الأساسية لنمو النبات ويمكن امتصاصه تحت شكله الأيوني أورثوفوسفات (HSUB2/subp4/Subsup-/سوب، HPOSUB4/Subsup2-/سوب، POSUB4/sub3-/سوب) (برابهو وآخرون. 2007؛ ريش 2013). لا يعرف سوى القليل عن ديناميات الفوسفور في أكوابونيكش. المدخلات الرئيسية للفوسفور في النظام هي تغذية الأسماك (Cerozi and Fitzsimmons 2017؛ Delaide et al. 2017؛ Schmautz et al. 2015)، وفي النظم غير المكملة (الفصل 7)، يميل الفوسفور إلى الحد وبالتالي يمكن أن يعوق أن يعوق نمو النبات (غرابر و جونج 2009؛ سيرايت وآخرون 1998). وفقا لرفيعي وسعد (2005)، يمكن للأسماك استخدام ما يصل إلى 15٪ من الفوسفور الموجود في العلف. في نظام زراعة الخس، لاحظ Cerozi و Fitzsimmons (2017) أن كمية الفوسفور التي توفرها تغذية الأسماك يمكن أن تكون كافية أو غير كافية اعتمادا على مرحلة النمو. يمكن إعادة تدوير ما يصل إلى 100% من الفوسفور الموجود في مياه السمك في الكتلة الحيوية النباتية، اعتمادًا على تصميم النظام. وقد لاحظ غرابر وجونج (2009) إعادة تدوير بنسبة 50%، في حين أفاد شماوتز وآخرون (2015) بأن 32% من الفوسفور يمكن العثور عليه في الفاكهة و28% في الأوراق. وتعتمد قابلية ذوبان الفوسفور على درجة الحموضة، وستعزز درجة الحموضة الأعلى هطول الفوسفور، مما يجعلها غير متاحة للنباتات (Yildiz et al. 2017). يمكن أن يعجل الفوسفور كما ستروفيت (فوسفات الأمونيوم المغنيسيوم) (Le Corre et al. 2005) و/أو هيدروكسيباتيت (Cerozi وFitzsimmons 2017؛ Goddek et al. 2015). تتم إزالة هذه المجمعات غير القابلة للذوبان عن طريق حمأة الأسماك الصلبة من النظام. وأفاد شنايدر وآخرون (2004) أن 30 إلى 65% من الفوسفور الموجود في علف الأسماك لا يزال غير متاح للنباتات لأنه ثابت في الإفرازات الصلبة التي تتم إزالتها بعد ذلك عن طريق الترشيح الميكانيكي. وقدر يوغيف وآخرون (2016) أن هذه الخسارة يمكن أن تصل إلى 85٪. أحد الخيارات لمنع هذا الفقدان الهائل من P عن طريق الحمأة الصلبة هو إضافة حجرة الهضم إلى نظام أكوابونك. أثناء الهضم الهوائي أو اللاهوائي، يتم إطلاق P في الهضم ويمكن إعادة إدخاله في المياه المتداولة (Goddek et al. 2016).
**البوتاسيوم (K) **
وجد ديلايد وآخرون (2017) أن المصدر الرئيسي للK في نظامهم هو تغذية الأسماك. يمكن للأسماك أن تستخدم ما يصل إلى 7% من K الموجود في علف الأسماك (Rafiee and Saad 2005). ومع ذلك، فإن البوتاسيوم ليس ضرورياً للأسماك مما يؤدي إلى انخفاض تكوين البوتاسيوم لعلف الأسماك وإلى انخفاض مستويات البوتاسيوم المتاحة للنباتات (Graber and Junge 2009؛ Seawright et al. 1998؛ Suhl et al. 2016). لتوريد البوتاسيوم، غالباً ما يستخدم المخزن المؤقت للدرجة الهيدروجيني KOH لأن الرقم الهيدروجيني غالباً ما ينخفض في أكوابونيكشن بسبب النتريفيكاتيون (Graber and Junge 2009). في نظام أكوابونك المزروع مع الطماطم، والبوتاسيوم المتراكمة أساسا في الفواكه (شماوتز وآخرون. 2016).
**المغنيسيوم (ملغ) والكالسيوم (كاليفورنيا) والكبريت (S) **
المصدر الرئيسي لMg و Ca و S هو مياه الصنبور التي تسهل الامتصاص من قبل النباتات حيث أن العناصر الغذائية متوفرة بالفعل (Delaide et al. 2017). غير أن الكالسيوم موجود في مستويات غير كافية في أكوابونيكش (شماوتز وآخرون 2015؛ سيرايت وآخرون 1998) ويضاف تحت شكل هيدروكسيد الكالسيوم كا (أوه) sub2/sub (تيمونز وEbeling 2013). ووفقا لرفيعي وسعد (2005)، يمكن للأسماك أن تستخدم في المتوسط 26.8٪ من الكالسيوم و 20.3٪ من المغنيسيوم الموجود في العلف. وكثيراً ما يكون الكبريت عند مستويات منخفضة في النظم المائية (Graber and Junge 2009؛ Seawrit et al. 1998).
دورات المغذيات الدقيقة
الحديد (الحديد) والمنغنيز (Mn) والزنك (Zn) مستمدة بشكل رئيسي من تغذية الأسماك، بينما يستمد البورون (B) والنحاس (Cu) من مياه الصنبور (Delaide et al. 2017). وفي علم الأحياء المائية، غالباً ما تكون المغذيات الدقيقة الرئيسية موجودة ولكن عند مستويات منخفضة جداً (Delaide et al. 2017)، ومن ثم يلزم الحصول على مكملات من مصادر خارجية للمغذيات (الفصل 8). وتحدث حالات نقص الحديد في كثير من الأحيان في علم الأحياء المائية (Schmautz et al. 2015؛ Seawright et al. 1998؛ Fitzsimmons and Posadas؛ 1997 الذي استشهد به Licamele 2009)، ويرجع ذلك في الغالب إلى عدم توافر شكل أيون الحديدي. ويمكن حل هذا النقص عن طريق استخدام سيديروفور البكتيرية (أي مركبات مخلب الحديد العضوية) التي تنتجها أجناس مثل Bacillus أو Pseudomonas (Bartelme et al. 2018) أو عن طريق تكميل الحديد بالحديد المخلب الكيميائي لتجنب هطول الحديد.
9.4.4 خسائر المغذيات
الحد من فقدان المغذيات هو تحد مستمر يواجه ممارسي الأحياء المائية. ويحدث فقدان المغذيات بعدة طرق، مثل تسوية الحمأة (37% من البراز و18% من الأعلاف غير المأكل) (Neto and Ostrensky 2015)، وفقدان المياه، وإزالة التلوث، وتطاير الأمونيا، وما إلى ذلك (Wongkiew et al. 2017). وكمثال على ذلك، لاحظ رافيي وسعد (2005) أن 24% من الحديد و 86% من المنغنيز و 47% من الزنك و 22% من النحاس و 16% من الكالسيوم و 89% من المغنيسيوم و 6% من النيتروجين و 6% من البوتاسيوم و 18% من الفوسفور الموجود في علف الأسماك كانت موجودة في الحمأة. يمكن أن تستوعب الحمأة ما يصل إلى 40٪ من العناصر الغذائية الموجودة في مدخلات التغذية (Yogev et al. 2016).
يمكن أن يؤدي نزع النيتروجين إلى فقدان 25 إلى 60% من النيتروجين (هو وآخرون 2015؛ زو وآخرون 2016). وترتبط عملية إزالة النترات أيضا بظروف نقص الأكسجين (Madigan and Martinko 2007؛ van Lier et al. 2008) وانخفاض مستويات الكربون، وهي مسؤولة عن تحويل النترات إلى النتريت، وأكسيد النيتريك (NSUB2/subo)، وفي نهاية المطاف غاز النيتروجين (NSUB2/sub) مع تدفقات إلى الغلاف الجوي (المرجع نفسه. ). يتم إجراء التحلل من قبل العديد من البكتيريا غير الغذائية الاختيارية مثل Achromobacter، Aerobacter، Acinetobacter، Bacillus، Brevibacterium، Flavobacterium، Pseudomonas، بروتيوس و micrococccus sp. (جنتيل وآخرون 2007؛ ميشود وآخرون 2006؛ ونغكيو وآخرون 2017). ويمكن لبعض البكتيريا أن تؤدي كل من النتروية وإزالة النيترينغ إذا كانت مستويات الأكسجين المذاب أقل من 0.3 ملغم/لتر (Fitzgerald et al. 2015؛ Wongkiew et al. 2017). ويمكن أن يحدث فقدان النيتروجين أيضا عن طريق أكسدة الأمونيوم اللاهوائية (ANAMMOX)، أي أكسدة الأمونيوم إلى غاز الدينتروجين في وجود النتريت (هو وآخرون 2011).
ومن الخسائر الهامة الأخرى في النيتروجين التي ينبغي أن تكون متاحة للنباتات استهلاك النيتروجين من قبل البكتيريا الهوائية غير الغذائية الموجودة في النظم المائية. وفي الواقع، فإن النيتروجين الذي تستخدمه هذه البكتيريا يفقد بسبب البكتيريا النتريمية، وبالتالي يتم إعاقة النتروجين (Blancheton et al. 2013). هذه البكتيريا موجودة بشكل خاص عندما تزداد نسبة C/N لأنها أكثر تنافسية وأكثر قدرة على استعمار وسائل الإعلام من البكتيريا النتريفينغ أوتوتروفيك (Blancheton et al. 2013؛ Wongkiew et al. 2017).
9.4.5 ديناميات أنظمة موازنة المغذيات
ويلزم الموازنة بين تركيز المغذيات للنظامين الفرعيين الرئيسيين في النظام المائي، أي خزانات الأسماك (تربية الأحياء المائية) والمحلول المائي لكل من احتياجاتهما. وفي النظم المائية المغلقة، يتم نقل المغذيات من الأسماك إلى النباتات بشكل مباشر إلى حد ما من خلال المرشحات (عادة مرشح طبل أو مستوطن ثم مرشح بيولوجي) من أجل النترجة. ومع ذلك، فإن الاحتياجات الغذائية للمحاصيل والمغذيات الموردة من النظام الفرعي المائي ليست في التوازن. في أنظمة متعددة الحلقات وفصلها (الفصل 8)، من الأسهل توفير الظروف المثلى لكل من أقسام الأسماك والنباتات. من خلال نمذجة النظم (الفصل 11)، يمكن حساب الحجم الأمثل للمنطقة المائية إلى خزانات الأسماك، والمرشحات الحيوية وغيرها من المعدات (Goddek and Körner 2019). ويكتسي ذلك أهمية خاصة مع أنظمة متعددة الحلقات المنفصلة التي تضم أنواعاً مختلفة من المعدات. على سبيل المثال، يحتاج UASB (بطانية الحمأة اللاهوائية) (Goddek et al. 2018) أو وحدات تحلية المياه (Goddek and Keesman 2018) إلى أن يتم حجمها بعناية كما نوقش في الفصل 8. ولا بد من تصحيح و توازن عدم التطابق الأساسي بين العناصر الغذائية التي توفرها البيئة السمكية و احتياجات المحاصيل. ولغرض زيادة تركيز العناصر الغذائية، وصف غودديك وكيسمان (2018) وحدة تحلية مناسبة (الفصل 8). ومع ذلك، فإن هذا النهج لا يحل سوى جزء من المشكلة، حيث أن النظام المتوازن تمامًا يحركه معدل تبخر غير ديناميكي لا يمكن تحقيقه إلا في الغرف المغلقة والمصانع العاملة بشكل مثالي. بيد أن الواقع هو أن تبخر المحصول ونتح (ETSubc/sub) في النظم المائية القائمة على الاحتباس الحراري يعتمد إلى حد كبير على عوامل متعددة مثل المناخ المادي والمتغيرات البيولوجية. Etsubc/sub تحسب لكل مساحة من سطح الأرض المغطى بالمحصول ويتم حسابها لمستويات مختلفة في المظلة (z) عن طريق دمج التدفقات الصافية التشعيعية، ومقاومة طبقة الحدود، ومقاومة ستوماتا وعجز ضغط البخار، /الفرعية في المظلة (Körner et al. 2007) باستخدام Penman- معادلة (مونتيث) ومع ذلك، تحسب هذه المعادلة تدفق المياه من خلال المحصول فقط. ويمكن حساب امتصاص المغذيات ببساطة بافتراض أن المحصول يتناول جميع المغذيات المخففة في الماء. في الواقع على الرغم من ذلك، امتصاص المواد الغذائية هو مسألة معقدة للغاية. المواد الغذائية المختلفة لها حالات مختلفة، وتغيير مع المعلمات مثل الرقم الهيدروجيني. وفي الوقت نفسه، يعتمد توافر المغذيات للنباتات بشدة على درجة الحموضة وعلاقات المغذيات مع بعضها البعض (مثل توافر K/CA). بالإضافة إلى ذلك، تلعب الميكروبيوم في منطقة الجذر دورًا مهمًا (Orozco-Mosque et al. 2018) الذي لم يتم تنفيذه بعد في النماذج على الرغم من أن بعض النماذج تفرق بين مسارات phloem و xylem. وبالتالي، فإن كمية هائلة من المواد الغذائية ليست على غرار بالتفصيل لموازنة المغذيات أكوابونك وتحجيم النظم. أسهل طريقة لتقدير امتصاص المغذيات هي الافتراض بأن المغذيات يتم تناولها/امتصاصها على أنها مذابة في مياه الري وتنطبق على نهج حساب etSubc/sub المشروح أعلاه وبافتراض عدم وجود مقاومة كيميائية أو بيولوجية أو فيزيائية خاصة بعناصر معينة. وبالتالي، للحفاظ على التوازن، يجب إضافة جميع العناصر الغذائية التي يتناولها المحصول كما هو وارد في محلول المغذيات مرة أخرى إلى النظام المائي.
9-5 الاستنتاجات
Original publication · نُشر لأول مرة على FarmHub Learn · Aquaponics Food Production Systems
9.5.1 العيوب الحالية لركوب الدراجات المغذيات في أكوابونيكش
في الزراعة المائية، يتم تحديد محلول المغذيات بدقة ويتم فهم مدخلات المغذيات في النظام بشكل جيد والتحكم فيها. وهذا يجعل من السهل نسبيا تكييف محلول المغذيات لكل نوع من النباتات ولكل مرحلة من مراحل النمو. وفي علم الأحياء المائية، وفقاً للتعريف (Palm et al. 2018)، يجب أن تكون العناصر الغذائية ناتجة بنسبة 50% على الأقل عن علف الأسماك غير المأكل، والبراز الصلب للأسماك، والإفرازات القابلة للذوبان في الأسماك، مما يجعل مراقبة تركيزات المغذيات المتاحة لامتصاص النباتات أكثر صعوبة. والعيب الثاني هو فقدان المواد الغذائية من خلال عدة مسارات مثل إزالة الحمأة، وتجديد المياه أو إزالة النيتريفيكاتيون. تؤدي إزالة الحمأة إلى فقدان المغذيات لأن العديد من العناصر الغذائية الرئيسية مثل الفوسفور غالباً ما تترسب ثم توضع في الحمأة الصلبة التي تم إجلاؤها. تجديد المياه، الذي يجب أن يحدث حتى لو كان في نسب صغيرة، يضيف أيضا إلى فقدان المواد الغذائية من الدائرة المائية. وأخيرا، يحدث التشويه بسبب وجود البكتيريا المسببة للتشويه والظروف المواتية لعملية الأيض الخاصة بهم.
9.5.2 كيفية تحسين دورة المغذيات؟
وفي الختام، لا يزال يتعين تحسين دورة المغذيات من أجل تحسين نمو النباتات في الأحياء المائية. ول ذلك يجري حاليا استكشاف عدة خيارات في الفصل 8. ولتجنب فقدان العناصر المغذية التي يتم التقاطها في الحمأة، تم تطوير وحدات إعادة تعبئة الحمأة (الفصل 10). والهدف من هذه الوحدات هو استخراج العناصر الغذائية التي تم التقاطها في شكل صلب في الحمأة وإعادة إدخالها في النظام في شكل يمكن للنباتات استيعابها (Delaide 2017). وهناك تقنية أخرى للحد من فقدان المغذيات تتمثل في تعزيز امتصاص النباتات من خلال تركيز المحلول المائي (أي إزالة جزء صغير من الماء للحفاظ على نفس الكمية من المغذيات ولكن في حجم أقل من الماء). ويمكن تحقيق هذا التركيز من خلال إضافة وحدة تحلية المياه كجزء من النظام المائي (Goddek and Körner 2019؛ Goddek and Keesman 2018). وأخيرا، فإن استخدام النظم المفصولة/متعددة الحلقات يتيح الظروف المعيشية والنمو المثلى لجميع الأسماك والنباتات والكائنات الحية الدقيقة. وفي حين أجريت بعض البحوث في هذا المجال، ينبغي إجراء المزيد من البحوث لتحسين فهم دورة المغذيات في الأحياء المائية. في الواقع، مزيد من المعلومات بشأن الدورات الدقيقة لكل المغذيات الكبيرة (ما الشكل، وكيف يمكن تحويلها أم لا عن طريق الكائنات الحية الدقيقة، وكيف يتم تناولها من قبل النباتات في الأحياء المائية) أو تأثير الأنواع النباتية والأسماك ومعلمات المياه على دورات المغذيات يمكن أن تساعد كثيرا في فهم أنظمة أكوابونك.