Source material
Глава 9 Цикл питательных веществ в системах аквапоники
Матильда Эк, Оливер Кёрнер и М. Хайсам Джиджакли
Абстракт В аквапонике питательные вещества происходят главным образом из кормов для рыб и воды, поступающей в систему. Значительная часть корма поглощается рыбой и используется для роста и обмена веществ или выводится в виде растворимых и твердых фекалий, в то время как остальная часть несъеденного корма распадается в резервуарах. В то время как растворимые экскременты легко доступны для растений, твердые фекалии должны быть минерализованы микроорганизмами, чтобы их содержание питательных веществ было доступно для поглощения растений. Таким образом, контролировать имеющиеся концентрации питательных веществ в аквапонике сложнее, чем в гидропонике. Кроме того, многие факторы, в частности pH, температура и интенсивность света, влияют на наличие питательных веществ и поглощение растений. До сегодняшнего дня большинство исследований было сосредоточено на циклах азота и фосфора. Однако для обеспечения хорошей урожайности необходимо обеспечить растения достаточным уровнем всех ключевых питательных веществ. Поэтому важно лучше понимать и контролировать циклы питательных веществ в аквапонике.
Ключевые слова Аквапоника · Цикл питательных веществ · Солюбилизация · Микробиологические процессы
- 9.1 Введение
- 9.2 Происхождение питательных веществ
- 9.3 Микробиологические процессы
- 9.4 Баланс массы: Что происходит с питательными веществами, когда они попадают в аквапоническую систему?
- 9.5 Выводы
- Ссылки
—
[М. Эк](mailto: mathilde.eck@uliege.be) · [М. Х. Джиджакли](mailto: mh.jijakli@uliege.be)
Лаборатория комплексной и городской патологии растений, Université de Liège, Agro-Bio Tech, Gembloux, Бельгия
[О. Кёрнер](mailto: koerner@igzev.de)
Лейбниц - Институт овощных и декоративных культур (IGZ), Гроссберен, Германия
© Автор (ы) 2019 231
С. Годдек и др. (ред.), Системы производства продуктов питания Aquaponics, https://doi.org/10.1007/978-3-030-15943-6_9
—
Ссылки
Bartelme RP, Oyserman BO, Blom JE, Sepulveda-Villet OJ, Newton RJ (2018) Удаление почвы: рост растений способствует микробиологическим возможностям в аквапонике. Передняя микробиол 9 (8). https://doi.org/10.3389/fmicb.2018.00008
Bittsanszky A, Uzinger N, Gyulai G, Mathis A, Junge R, Villarroel M, Kotzen B, Komives T (2016) Питательные вещества растений в аквапонных системах. Экоциклы 2 (1720). https://doi.org/10.19040/ ecocycles.v2i2.57
Blancheton JP, Attramadal KJK, Michaud L, d'Orbcastel ER, Vadstein O (2013) Изучение популяции бактерий в системах аквакультуры и ее влияние. Аквак Энг 53:30 —39
Boyd CE (2015) Обзор кормов для аквакультуры: глобальные последствия использования ингредиентов. Корм Корм Практ Аквак 3—25. https://doi.org/10.1016/B978-0-08-100506-4.00001-5
Багби Б (2004) Управление питательными веществами в рециркулирующей гидропонной культуре. Акта Хортик 648:99 —112. https://doi.org/10.17660/ActaHortic.2004.648.12
Buzby KM, Lin LS (2014) Масштабирование аквапонных систем: балансировка поглощения растений с выходом рыбы. Аквак ENG 63:39 -44. https://doi.org/10.1016/j.aquaeng.2014.09.002
Карсиотис М, Ханна С (1989) Генетическая инженерия микробной нитрификации. Агентство по охране окружающей среды Соединенных Штатов, Инженерная лаборатория по снижению рисков, Цинциннати
Cerozi BS, Fitzsimmons K (2017) Моделирование динамики фосфора и баланса масс в системе аквапоники. Агрик Сист 153:94 —100. https://doi.org/10.1016/j.agsy.2017.01.020
Даймс Г, Лебедева Е.В., Пьевац П, Хан П, Херболд С, Альбертсен М, Йемлих Н, Палатински М, Верхайлиг Дж, Булаев А, Киркегаард РГ, Фон Берген М, Раттей Т, Бендингер Б, Нильсен Н, Вагнер М (2015) Полная нитрификация Бактерии. Природа 528:504. https://doi.org/ 10.1038/nature16461
Davidson J, Good C, Barrows FT, Welsh C, Kenney PB, Summerfelt ST (2013) Сравнение влияния кормления зерна или рыбной пищи на основе качества воды, производства отходов и производительности радужной форели Oncorhynchus mykiss в системах рециркуляции аквакультуры с низкой обменной водой. Аквак Энг 52:45 —57. https://doi.org/10.1016/J.AQUAENG.2012.08.001
Delaide B (2017) Исследование минеральных элементов, имеющихся в аквапонике, их влияния на продуктивность салата и потенциальное улучшение их доступности. Кандидатская диссертация. Gembloux AgroBio Tech, Университет Льежа
Делайде Б, Годдек С, Готт Дж, Суйерт Г, Хайсам Джиджакли М, Лалман Дж, Джунге Р (2016) Сатива (Lactuca sativa L. var. Сукрин) производительность роста в дополненном растворе аквапоники превосходит гидропонику. Вода 8. https://doi.org/10.3390/w8100467
Delaide B, Delhaye G, Dermience M, Gott J, Soyeurt H, Jijakli MH (2017) Производительность завода и рыбного производства, балансы массы питательных веществ, использование энергии и воды в коробке PAFF, мелкомасштабной аквапонной системы. Аквак Энг 78:130 —139. https://doi.org/10.1016/j.aquaeng.2017. 06.002
Fitzgerald CM, Camejo P, Oshlag JZ, Noguera DR (2015) Аммиаокисляющие микробные сообщества в реакторах с эффективной нитрификацией при низкорастворенном кислороде. Вода Res 70:38 —51. https://doi.org/10.1016/J.WATRES.2014.11.041
Geay F, Ferraresso S, Zambonino-Infante JL, Bargelloni L, Quentel C, Vandeputte M, Kaushik S, Cahu CL, Mazurais D (2011) Последствия полной замены рациона на основе растений на печеночный транскриптом двух европейских морских окуней (Dicentrarchus labrax) полусемей демонстрируя различный рост цены с растительной диетой. Генемика BMC 12:522. https://doi.org/10.1186/1471-2164-12-522
Gentile ME, Lynn Nyman J, Criddle CS (2007) Корреляция закономерностей неустойчивости денитрификации в тиражируемых биореакторных сообществах со сдвигами в относительном изобилии и денитрификации конкретных популяций. ISME J 1:714 —728. https://doi.org/10.1038/ismej.2007.87
Goddek S, Keesman KJ (2018) Необходимость технологии опреснения для проектирования и калибровки многоконтурных систем аквапоники. Опреснение 428:76 —85. https://doi.org/10.1016/J.DESAL. 2017.11.024
Goddek S, Körner O (2019) Полностью интегрированная имитационная модель многоконтурной аквапоники: пример определения размеров системы в различных средах. Агрик Сыст 171:143
Goddek S, Delaide B, Mankasingh U, Ragnarsdottir KV, Jijakli H, Thorarinsdottir R (2015) Проблемы устойчивой и коммерческой аквапоники. Устойчивость 7:4199 —4224. https://doi.org/10.3390/su7044199
Goddek S, Schmautz Z, Scott B, Delaide B, Keesman K, Wuertz S, Junge R (2016) Влияние анаэробного и аэробного шлама рыб на гидропонный салат. Агрономия 6:37. https://doi.org/10.3390/agronomy6020037
Goddek S, Delaide BPL, Joyce A, Wuertz S, Jijakli MH, Gross A, Eding EH, Bläser I, Reuter M, Keizer LCP и др. (2018) Производительность минерализации питательных веществ и уменьшения органических веществ в реакторах на основе RASB-EGSB. Аквак Энг 83:10 —19
Graber A, Junge R (2009) Системы Aquaponic: переработка питательных веществ из рыбных сточных вод путем производства овощей. Опреснение 246:147 —156. https://doi.org/10.1016/j.desal.2008.03.048
Баланс массы и качество воды в резервуарах для аквакультуры. Университет Организации Объединенных Наций, Программа подготовки кадров в области рыболовства, Рейявик
Hu B, Shen L, Xu X, Zheng P (2011) Анаэробное окисление аммония (анаммокс) в различных природных экосистемах. Биохим Сок Транс 39:1811 —1816. https://doi.org/10.1042/BST20110711
Hu Z, Lee JW, Chandran K, Kim S, Brotto AC, Khanal SK (2015) Влияние видов растений на восстановление азота в аквапонике. Биоресурсы 188:92 —98. https://doi.org/10.1016/j.biortech. 2015.01.013
Hua K, Bureau DP (2012) Изучение возможности количественной оценки влияния растительных белковых ингредиентов в кормах для рыб с использованием методов метаанализа и моделирования питательных моделей. Аквакультура 356— 357:284 —301. https://doi.org/10.1016/J.AQUACULTURE. 2012.05.003
Jorquera M, Мартинес О, Маруяма F, Marschner P, de la Luz Mora M (2008) Текущее и будущее биотехнологическое применение бактериальных фитасов и фитасообразующих бактерий. Микробы Энвирон 23:182 —191. https://doi.org/10.1264/jsme2.23.182
Körner O, Aaslyng JM, Andreassen AU, Holst N (2007) Моделирование микроклимата для динамического климатического контроля парниковых газов. Хортнаук 42:272 —279
Körner O, Gutzmann E, Kledal PR (2017) Динамическая модель, имитирующая симбиотические эффекты в аквапонных системах. Акта Хортик 1170:309 —316
Kuhn DD, Drahos DD, Marsh L, Flick GJ (2010) Оценка продукта нитрифицирующих бактерий для повышения эффективности нитрификации в рециркулирующих системах аквакультуры. Аквак Энг 43:78 —82. https://doi.org/10.1016/J.Aquaeng.2010.07.001
Le Corre KS, Valsami-Jones E, Hobbs P, Parsons SA (2005) Влияние кальция на размер, форму и чистоту кристалла струвита. J Cryst Рост 283:514 —522. https://doi.org/10.1016/J.JCRYSGRO. 2005.06.012
Lennard WA, Leonard BV (2006) Сравнение трех различных гидропонных подсистем (гравийный слой, метод плавающей и питательной пленки) в испытательной системе Aquaponic. Аквак Инт 14:539 —550. https://doi.org/10.1007/s10499-006-9053-2
Летельер-Гордо CO, Dalsgaard J, Suhr KI, Ekmann KS, Pedersen PB (2015) Снижение соотношения пищевого белка: энергия (P:E) изменяет собилизацию и брожение радужной форели (Oncorhynchus mykiss) фекалий. Аквак ENG 66:22-29
Производство биомассы и динамика питательных веществ в системе аквапоники. Кандидатская диссертация. Департамент сельского хозяйства и биосистем, Аризонский университет
Losordo TM, Masser MP, Rakocy J (1998) Рециркулирующие системы производства резервуаров для аквакультуры: обзор критических соображений. ГРАК № 451, стр. 18—31
Мадиган М.Т., Мартинко Ю.М. (2007) Биология микроорганизмов, 11-е издание. Пирсон Образование Франция, Париж
Meriac A, Eding EH, Schrama J, Kamstra A, Verreth JAJ (2014) Диетический состав углеводов может изменить производство отходов и нагрузку биофильтра в рециркулирующих системах аквакультуры. Аквакультура 420— 421:254 —261. https://doi.org/10.1016/j.aquaculture.2013.11.018
Michaud L, Blancheton JP, Bruni V, Piedrahita R (2006) Влияние твердых частиц органического углерода на гетеротрофные популяции бактерий и эффективность нитрификации в биологических фильтрах. Аквак ENG 34:224 —233. https://doi.org/10.1016/j.aquaeng.2005.07.005
Мунгия-Фрагозо П, Алаторре-Жаком О, Рико-Гарсия Е, Торрес-Пачеко I, Крус-Эрнандес А, Окампо-Веласкес РВ, Гарсия-Трехо ЮФ, Гевара-Гонсалес РГ (2015) Перспективы для аквапонных систем: «омические» технологии для анализа микробных сообществ. Биомед Res Int 2015:1. https://doi.org/10.1155/2015/480386
Оценка нагрузки питательных веществ в отходах Нила Tilapia Oreochromis niloticus (L.), выращенных в клетках в тропических климатических условиях. Аквак Рес 46:1309 —1322. https://doi.org/10.1111/are.12280
Orozco-Mosque MC, Rocha-Granados MC, Glick BR, Santoyo G (2018) Технология микробиома для улучшения биоконтроля и стимулирования роста растений. Микробиол Res. в прессе
Palm HW, Knaus U, Appelbaum S, Goddek S, Strauch SM, Vermeulen T, Haїssam Jijakli M, Kotzen B (2018) На пути к коммерческой аквапонике: обзор систем, конструкций, весов и номенклатуры. Аквак Инт 26:813 —842
Прабху А.С., Фагерия Н.К., Берни РФ, Родригес ФА (2007) Фосфор и болезни растений. В: Datnoff LE, Elmer WH, Huber DM (eds) Минеральное питание и болезни растений. Американское фитопатологическое общество, Сент-Пол, стр. 45—55
Rafiee G, Saad CR (2005) Питательный цикл и образование осадка на разных стадиях роста красного Tilapia (Oreochromis sp.) в рециркулирующей системе аквакультуры. Аквакультура 244:109 —118. https://doi.org/10.1016/J.AQUACULTURE.2004.10.029
Rakocy JE, Shultz RC, Bailey DS, Thoman ES (2004) Aquaponic производство Tilapia и базилика: сравнение пакетной и шахматной системы возделывания. Акта Хортик 648:63 —69. https://doi.org/10. 17660/Актаортика.2004.648.8
Rakocy JE, Masser MP, Losordo TM (2006) Системы рециркулирующих резервуаров для аквакультуры: аквапоника - интеграция рыбной и растительной культуры. SRAC Publ South Reg Aquac Cent 16. https://doi.org/454
Рэндалл D, Tsui TK (2002) Токсичность аммиака в рыбе. Мар Поллут Бык 45:17 —23. https://doi.org/10. 1016/S0025-326X (02) 00227-8
Resh HM (2013) Гидропоники производства пищевых продуктов: окончательное руководство для продвинутого домашнего садовника и коммерческого гидропонного производителя, 7-е издание. CRC Пресс, Бока Ратон
Влияние внекорневого применения некоторых макро- и микропитательных веществ на растения томатов в аквапонной и гидропонной системах. Sci Hortic 129:396 —402. https://doi.org/ 10.1016/Й.scienta.2011.04.006
Roosta HR, Hamidpour M (2013) Минеральные питательные вещества растений томатов в аквапонной и гидропонной системах: эффект внекорневого применения некоторых макро- и микроэлементов. J завод Нутр 36:2070 —2083. https://doi.org/10.1080/01904167.2013.821707
Ru D, Liu J, Hu Z, Zou Y, Jiang L, Cheng X, Lv Z (2017) Повышение эффективности аквапоники за счет добавления микро- и макро-питательных веществ. Environ Sci загрязняет Res 24:16328 —16335. https://doi.org/10.1007/s11356-017-9273-1
Rurangwa E, Verdegem MCJ (2013) Микроорганизмы в рециркулирующих системах аквакультуры и управление ими. Рев Аквак 7:117 —130. https://doi.org/10.1111/raq.12057
Schmautz Z, Graber A, Mathis A, Griessler Bulc T, Junge R (2015) Производство томатов в аквапонной системе: баланс массы и переработка питательных веществ (реферат)
Schmautz Z, Loeu F, Liebisch F, Graber A, Mathis A, Bulc TG, Junge R (2016) Продуктивность и качество томатов в аквапонике: сравнение трех гидропонных методов. Вода 8:1 -22. https://doi.org/10.3390/w8110533
Schmautz Z, Graber A, Jaenicke S, Goesmann A, Junge R, Smits THM (2017) Микробное разнообразие в различных средах системы аквапоники. Арка Микробиол 199:613. https://doi.org/10. 1007/s00203-016-1334-1
Schneider O, Sereti V, Eding EH, Verreth JAJ (2004) Анализ потоков питательных веществ в интегрированных системах интенсивной аквакультуры. Аквак Энг 32:379-401. https://doi.org/10.1016/j.aquaeng.2004. 09.001
Seawright DE, Stickney RR, Walker RB (1998) Динамика питательных веществ в интегрированных системах аквакультуры — гидропоники. Аквакультура 160:215 —237
Шода М (2014) Гетеротрофическая нитрификация и аэробная денитрификация Alcaligenes faecalis. J Biosci Биоенг 117:737 —741. https://doi.org/10.5772/68052
Сомервилль С, Станкус А, Лователли А (2014) Маломасштабное аквапоническое производство пищевых продуктов. Комплексное рыбоводство и растениеводство. Продовольственная и сельскохозяйственная организация Объединенных Наций, Рим
Кормление растений тепличных культур//Зонневельд С., Voogt W (2009). Спрингер, Дордрехт/Хайдельберг/Лондон/Нью-Йорк
Sugita H, Nakamura H, Shimada T (2005) Микробные сообщества, связанные с фильтрующими материалами в рециркулирующих системах аквакультуры пресноводных рыб. Аквакультура 243:403. https://doi.org/10.1016/j.aquaculture.2004.09.028
Suhl J, Dannehl D, Kloas W, Baganz D, Jobs S, Schmeibe G, Schmidt U (2016) Передовая аквапоника: оценка интенсивного производства томатов в аквапонике против традиционной гидропоники. Агрическая вода Манаг 178:335 —344. https://doi.org/10.1016/j.agwat.2016.10.013
Tacon AGJ, Metian M (2008) Глобальный обзор использования рыбной муки и рыбьего жира в промышленных комбикормах: тенденции и перспективы на будущее. Аквакультура 285:146 —158. https://doi.org/10.1016/j.aquaculture.2008.08.015
Timmons MB, Эбелинг JM (2013) Рециркулирующая аквакультура. Итака Издательство, Нью-Йорк
Turcios AE, Papenbrock J (2014) Устойчивая обработка сточных вод аквакультуры — что мы можем извлечь из прошлого в будущем? Устойчивость 6:836 —856. https://doi.org/10.3390/su6020836 van Lier JB, Махмуд N, Zeeman G (2008) In: Henze M, van Loosdrecht MCM, Ekama GA, Brdjanovic D (eds) Анаэробная очистка сточных вод, в: биологическая очистка сточных вод: принципы, моделирование и дизайн. IWA Publishing, Лондон ISBN: 9781843391883
van Rijn J (2013) Обработка отходов в рециркулирующих системах аквакультуры. Аквак Энг 53:49 —56. https://doi.org/10.1016/J.AQUAENG.2012.11.010
Wongkiew S, Hu Z, Chandran K, Lee JW, Khanal SK (2017) Преобразования азота в аквапонных системах: обзор. Аквак Энг 76:9 —19. https://doi.org/10.1016/j.aquaeng.2017.01. 004
Xu G, Fan X, Miller AJ (2012) Усвоение азота и эффективность использования растений. Аннуский Рев Завод Биол 63:153 —182. https://doi.org/10.1146/annurev-arplant-042811-105532
Yildiz HY, Robaina L, Pirhonen J, Mente E, Domínguez D, Parisi G (2017) Благосостояние рыбы в системах Aquaponic: ее отношение к качеству воды с акцентом на корм и фекалии — обзор. Вода 9. https://doi.org/10.3390/w9010013
Йогев У, Барнс А, Гросс А (2016) Анализ питательных веществ и энергетического баланса для концептуальной модели трех петель вне сетки, аквапоники. Вода 8. https://doi.org/10.3390/w8120589
Zekki H, Gauthier L, Gosselin A (1996) Рост, продуктивность и минеральный состав тепличных томатов, выращиваемых на гидропонике, с переработкой питательных растворов или без них. J Am Soc Hortic Sci 121:1082 —1088
Zou Y, Hu Z, Zhang J, Xie H, Guimbaud C, Fang Y (2016) Влияние рН на превращения азота в медиааквапонике. Биоресурс Технол 210:81 —87. https://doi.org/10.1016/ Ж.БИОРТЕХ.2015.12.079
Open Access Данная глава лицензирована в соответствии с условиями международной лицензии Creative Commons Attribution 4.0 (http://creativecommons.org/licenses/by/4.0/), которая разрешает использование, обмен, адаптацию, распространение и воспроизведение на любом носителе или формате, как если вы даете должное первоначальному автору (авторам) и источнику, предоставите ссылку на лицензию Creative Commons и укажете, были ли внесены изменения.
Изображения или другие материалы третьих лиц в этой главе включены в лицензию Creative Commons главы, если иное не указано в кредитной линии материала. Если материал не включен в лицензию Creative Commons главы и ваше предполагаемое использование не разрешено законом или превышает разрешенное использование, вам необходимо получить разрешение непосредственно от правообладателя.
Aquaponics Food Production Systems contributors.
Открыть исходное издание · Creative Commons Attribution 4.0
Это библиотечное издание переформатировано и объединено из исходного источника.
9.1 Введение
Original publication · Впервые опубликовано в FarmHub Learn · Aquaponics Food Production Systems
Системы Aquaponic предлагают различные преимущества, когда дело доходит до производства продуктов питания инновационным и устойчивым способом. Помимо синергетического эффекта увеличения воздушной концентрации COSub2/Sub для тепличных культур и снижения общего потребления тепловой энергии при выращивании рыбы и сельскохозяйственных культур в одном и том же пространстве (Körner et al. 2017), аквапоника обладает двумя основными преимуществами для круговорота питательных веществ. Во-первых, сочетание рециркулирующей системы аквакультуры с гидропонным производством позволяет избежать сброса в уже загрязненные грунтовые воды аквакультуры, обогащенные растворенным азотом и фосфором (Buzby and Lin 2014; Guangzhi 2001; van Rijn 2013), и, во-вторых, это позволяет удобрять непочвенные культуры с тем, что можно считать органическим раствором (Goddek et al. 2015; Schneider et al. 2004; Yogev et al. 2016) вместо использования удобрений минерального происхождения, изготовленных из истощающих природных ресурсов (Schmautz et al. 2016; Chap. 2. Кроме того, аквапоника дает сопоставимый рост растений по сравнению с традиционными гидропониками, несмотря на более низкие концентрации большинства питательных веществ в аквакультуре (Graber and Junge 2009; Bittsanszky et al. 2016; Delaide et al. 2016), а производство может быть даже лучше, чем в почве (Rakocy et al. 2004). Считается, что основными причинами этого являются увеличение концентраций COSub2/sub в воздушной среде и изменение биомов корневой зоны. Кроме того, минеральное содержание и пищевое качество томатов, выращенных аквапоническим путем, согласно сообщениям, эквивалентны или превосходят содержание минералов в традиционных выращенных томатах (Schmautz et al. 2016).
Несмотря на наличие двух привлекательных активов (например, рециркуляция сточных вод аквакультуры и использование органических удобрений), использование водных сточных вод усиливает задачу мониторинга питательных веществ в растворе. Действительно, трудно контролировать состав раствора, в котором питательные вещества происходят от биологической деградации органического вещества, чем следить за эволюцией концентрации питательных веществ в точно дозированном гидропонном растворе на основе минеральных соединений (Bittsanszky et al. 2016; Timmons and Ebeling 2013). Кроме того, потребности растений в питании варьируются в течение периода роста в соответствии с физиологическими стадиями, и для максимального увеличения урожайности необходимо удовлетворять эти потребности (Bugbee 2004; Zekki et al. 1996; глава 4).
Для рециркуляции сточных вод аквакультуры для производства биомассы растений необходимо оптимизировать темпы рециркуляции фосфора и азота (Goddek et al. 2016; Graber and Junge 2009; глава 1). На это может влиять ряд факторов, таких, как виды рыб, плотность рыб, температура воды, тип растений и микробное сообщество (там же). Поэтому крайне важно понять функционирование циклов питательных веществ в аквапонике (Seawright et al. 1998). Цель этой главы состоит в том, чтобы объяснить происхождение питательных веществ в аквапонной системе, описать циклы питательных веществ и проанализировать причины потери питательных веществ.
9.2 Происхождение питательных веществ
Original publication · Впервые опубликовано в FarmHub Learn · Aquaponics Food Production Systems
Основными источниками питательных веществ в аквапонной системе являются корма для рыбы и добавленная вода (содержащая Mg, Ca, S) (см. [раздел 9.3.2]. (/community/статьи/9-3-микробиологические процессы #932 -Нитрификация))) в систему (Delaide et al. 2017; Schmautz et al. 2016), как более подробно изложено в главе 13. Что касается кормов для рыб, то существует два основных вида: корма на основе рыбы и корма растительного происхождения. Рыбная мука — это классический вид корма, используемый в аквакультуре, где липиды и белки опираются на рыбную муку и рыбий жир (Geay et al. 2011). Однако в течение некоторого времени высказывались опасения по поводу устойчивости таких кормов и обращалось внимание на растительные диеты (Boyd 2015; Davidson et al. 2013; Hua and Bureau 2012; Tacon and Metian 2008). Метаанализ, проведенный Hua and Bureau (2012), показал, что использование растительных белков в кормах для рыб может влиять на рост рыбы, если они включены в высокие пропорции. Действительно, растительные белки могут влиять на усвояемость и уровни антипитательных факторов корма. В частности, фосфор, происходящий из растений и, таким образом, в виде фитатов не приносит пользы, например, лосося, форель и несколько других видов рыб (Timmons and Ebeling 2013). Неудивительно, что это наблюдение сильно зависит от вида рыб и качества ингредиентов (Hua and Bureau 2012). Однако мало известно о влиянии разного состава кормов рыб на урожайность сельскохозяйственных культур (Yildiz et al. 2017).
Классический корм для рыб состоит из 6—8 макроингредиентов и содержит 6— 8% органический азот, 1,2% органический фосфор и 40— 45% органический углерод (Timmons and Ebeling 2013) с около 25% белка для травоядных или всеядных рыб и около 55% белка для плотоядных рыб (Boyd 2015). Липиды могут быть также на основе рыбы или растений (Boyd 2015).
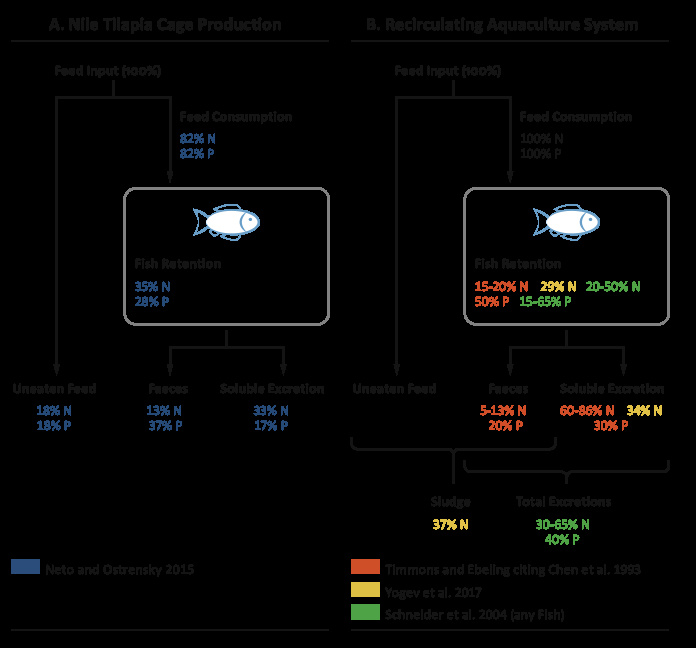
Рис. 9.1 Экологический поток азота и фосфора в% для (а) производства клеток Nile Tilapia (после Нето и Остренского 2015) и (b) производства РАС (из различных источников)
После добавления в систему корма для рыбы значительная часть его съедается рыбой и используется для роста и обмена веществ или выводится в виде растворимых и твердых фекалий, в то время как остальная часть данного корма распадается в резервуарах (Goddek et al. 2015; Schneider et al. 2004) (рис. 9.1). В этом случае остатки корма и продукты обмена веществ частично растворяются в аквапонной воде, что позволяет растениям принимать питательные вещества непосредственно из аквапонного раствора (Schmautz et al. 2016).
В большинстве систем возделывания (главы 7 и 8 могут добавляться питательные вещества, дополняющие аквапонный раствор и обеспечивающие лучшее соответствие с потребностями растений (Goddek et al. Действительно, даже когда система соединена, можно добавлять железо или калий (которых часто не хватает), не причиняя вреда рыбе (Schmautz et al. 2016).
9.2.1 Остатки корма для рыбы и фекалии
В идеале, весь данный корм должен потребляться рыбе (рис. 9.1). Однако небольшая часть (менее 5% (Yogev et al. 2016)) часто остается разлагаться в системе и способствует питательной нагрузке воды (Losordo et al. 1998; Roosta and Hamidpour 2013; Schmautz et al. 2016), тем самым потребляя растворенный кислород и высвобождая углекислый газ и аммиак (Losordo et al. 1998) , среди прочего. Состав остатков корма рыбы зависит от состава корма.
Логично, что состав рыбных фекалий зависит от рациона рыбы, что также влияет на качество воды (Buzby and Lin 2014; Goddek et al. 2015). Однако сохранение питательных веществ в биомассе рыб в значительной степени зависит от видов рыб, уровня кормления, состава кормов, размера рыбы и температуры системы (Schneider et al. 2004). Например, при более высоких температурах ускоряется обмен веществ рыбы, что приводит к увеличению количества питательных веществ, содержащихся в твердой фракции фекалий (Turcios and Papenbrock 2014). Доля выведенных питательных веществ также зависит от качества и усвояемости рациона (Buzby and Lin 2014). Необходимо тщательно рассмотреть усвояемость корма для рыбы, размер фекалий и коэффициент оседания, чтобы обеспечить хороший баланс в системе и максимизировать урожайность сельскохозяйственных культур (Yildiz et al. 2017). Действительно, хотя одним из приоритетов является тщательный выбор кормов для рыбы в соответствии с потребностями рыбы, компоненты корма также могут быть выбраны в соответствии с потребностями растений, если это не имеет значения для рыбы (Goddek et al. 2015; Licamele 2009; Seawright et al. 1998).
9.3 Микробиологические процессы
Original publication · Впервые опубликовано в FarmHub Learn · Aquaponics Food Production Systems
9.3.1 Солибилизация
Солибилизация состоит в разрушении сложных органических молекул, образующих отходы рыб и кормящих остатки в питательные вещества в виде ионных минералов, которые могут поглощать растения (Goddek et al. 2015; Somerville et al. 2014). Как в аквакультуре (Sugita et al. 2005; Turcios and Papenbrock 2014), так и в аквапонике собилизация проводится в основном гетеротрофными бактериями (van Rijn 2013; Chap. 6), которые еще не полностью идентифицированы (Goddek et al. 2015). Некоторые исследования начали расшифровать сложность этих бактериальных сообществ (Schmautz et al. 2017). В современной аквакультуре наиболее часто наблюдаемыми бактериями являются Rhizobium sp., Flavobacterium sp., _Sp., Comamonas sp., Acinetobacterium sp., Aeromonas sp. и Pseudomonas sp. (Мунгия-Фрагозо и др., 2015 год; Сугита и др., 2005 год). Примером важной роли бактерий в аквапонике может служить превращение нерастворимых фитатов в фосфор (P), доступный для поглощения растений путем производства фитасов, которые особенно присутствуют в γ-proteobacteria (Jorquera et al. 2008). (В этой области необходимо провести дополнительные исследования). Другие питательные вещества, кроме P, также могут быть улавливаны в виде твердых веществ и выведены из системы с помощью осадка. Таким образом, предпринимаются усилия по реминерализации этого осадка реакторами UASB-EGSB с целью повторного внесения питательных веществ в аквапонную систему (Delaide 2017; Goddek et al. 2016; глава 10)). Кроме того, различные минералы не выделяются одинаковыми темпами в зависимости от состава корма (LetelierGordo et al. 2015), что приводит к более сложному мониторингу их концентрации в аквапонном растворе (Seawright et al. 1998).
9.3.2 Нитрификация
Основным источником азота в аквапонной системе является корм для рыб и содержащиеся в нем белки (Goddek et al. 2015; Ru et al. 2017; Wongkiew et al. 2017; Yildiz et al. 2017). В идеале, 100% этого корма должна быть съедена рыбой. Тем не менее, было отмечено, что рыба использует только около 30% азота, содержащегося в данном корме (Rafiee and Saad 2005). Поглощенный корм частично используется для усвоения и обмена веществ (Wongkiew et al. 2017), в то время как остальная часть выводится либо через жабры, либо в виде мочи и фекалии (Ru et al. 2017). Азот, который выводится через жабры, в основном в виде аммиака, NHSub3/Sub (Wongkiew et al. 2017; Yildiz et al. 2017), в то время как моча и фекалии состоят из органического азота (Wongkiew et al. 2017), который превращается в аммиак протеазами и деаминазами (Sugita et al. 2005). Как правило, рыба выделяет азот в виде TAN, т.е. NHSub3/sub и NHSub4/sub+/SUP. Баланс между NHSub3/Sub и NHSub4/SubSup+/SUP в основном зависит от pH и температуры. Аммиак является основным отходом, образуемым рыбой катаболизма кормовых белков (Yildiz et al. 2017).
Нитрификация представляет собой двухэтапный процесс, в ходе которого аммиак NHSub3/Sub или аммоний NHSub4/Subsup+/SUP, выделяемый рыбой, преобразуется сначала в нитрит NOSub2/Subsup-/SUP, а затем в нитрат NOSub3/Subsup-/SUP специфическими аэробными химическими автотрофическими бактериями. Необходима высокая доступность растворенного кислорода, поскольку нитрификация потребляет кислород (Carsiotis and Khanna 1989; Madigan and Martinko 2007; Shoda 2014). Первым шагом этого преобразования являются аммиокисляющие бактерии (AOB), такие как Nitrosomonas, Nitrosoccus, Nitrosospira, Nitrosolobus и Nitrosovibrio. Второй этап проводится нитритно-окисляющими бактериями (NOB), такими как Nitrobacter, Nitrococus, Nitrospira и Nitrospina (Rurangwa and Verdegem 2013; Timmons and Ebeling 2013; Wongkiew et al. 2017). Nitrospira в настоящее время считается полным нитрификатором, т.е. участвует в производстве как нитрита, так и нитрата (Daims et al. 2015). Такие же бактерии можно обнаружить как в аквакультуре, так и в аквапонных системах (Wongkiew et al. 2017). Эти бактерии в основном встречаются в биопленках, прикрепленных к средам, составляющим биофильтр, но также могут наблюдаться в других отсеках системы (Timmons and Ebeling 2013).
Нитрификация имеет первостепенное значение в аквапонике, поскольку аммиак и нитрит являются достаточно токсичными для рыб: 0,02—0,07 мг/л аммиазота достаточно для наблюдения за повреждениями в теплой воде рыб, а нитрит-азот должен содержать менее 1 мг/л (Losordo et al. 1998; Timmons and Ebeling 2013). Аммиак поражает центральную нервную систему рыб (Randall and Tsui 2002; Timmons and Ebeling 2013), в то время как нитрит вызывает проблемы с фиксацией кислорода (Losordo et al. 1998). Однако нитрат — азот переносится рыбой до 150—300 мг/л (Goddek et al. 2015; Graber and Junge 2009; Yildiz et al. 2017).
Нитрификация происходит главным образом в биофильтрах (Losordo et al. 1998; Timmons and Ebeling 2013). Поэтому при запуске системы рекомендуется запускать систему без рыбы, чтобы позволить медленно растущей популяции нитрифицирующих бактерий установить (Timmons and Ebeling 2013; Wongkiew et al. 2017). Также необходимо избегать, насколько это возможно, присутствия органического вещества в биофильтрах, чтобы предотвратить рост высококонкурентных гетеротрофных бактерий (Timmons and Ebeling 2013). В качестве альтернативы, коммерческие смеси нитрифицирующих бактерий могут быть добавлены в систему, чтобы ускорить процесс колонизации (Kuhn et al. 2010). Тем не менее, небольшие аквапонные системы без биофильтра также существуют. В этих системах нитрифицирующие бактерии образуют биопленки доступных поверхностей (например, стенки гидропонного отсека, инертные среды при использовании технологии слоя сред) (Somerville et al. 2014).
9.4 Баланс массы: что происходит с питательными веществами после того, как они попадают в Aquaponic System?
Original publication · Впервые опубликовано в FarmHub Learn · Aquaponics Food Production Systems
9.4.1 Контекст
Функционирование аквапонных систем основано на динамическом равновесии циклов питательных веществ (Somerville et al. 2014). Поэтому необходимо понимать эти циклы, чтобы оптимизировать управление системами. Растения, растущие гидропонически, имеют специфические требования, которые должны быть выполнены на различных этапах их выращивания (Resh 2013). Поэтому необходимо внимательно следить за концентрацией питательных веществ в различных средах системы и дополнять питательные вещества для предотвращения их недостатков (Resh 2013; Seawright et al. 1998) либо в воде системы, либо в виде внекорневой формы (Roosta and Hamidpour 2011).
Согласно Delaide et al. (2016), в некоторых случаях добавление аквапонного раствора минеральными питательными веществами для достижения тех же концентраций питательных веществ, что и в гидропонике, может привести к более высокой урожайности, чем в гидропонике. Первым шагом на пути к сбалансированной системе является правильная конструкция и относительные размеры отсеков (Buzby and Lin 2014). Если гидропонный отсек слишком мал по сравнению с емкостями для рыб, то питательные вещества будут накапливаться в воде и могут достигать токсического уровня. Коэффициент корма (т.е. количество кормов для рыбы в системе на основе поверхности растениеводства и типа растений) часто используется для первого калибровки системы (Rakocy et al. 2006; Somerville et al. 2014). Однако, согласно Seawright et al. (1998), невозможно достичь соотношения растений/рыбы, которое позволило бы оптимально удовлетворить потребности растений, если бы в качестве входного материала использовался только корм для рыбы. Чтобы убедиться, что система хорошо сбалансирована и функционирует должным образом, методы мониторинга, как правило, основаны на азотном цикле (Cerozi и Fitzsimmons 2017; Somerville et al. 2014), но для обеспечения оптимального функционирования системы необходимо более внимательно следить за балансом других макроэлементов ( N, P, K, Ca, Mg, S) и микроэлементов (Fe, Zn, B, Mn, Mo, Cu) (Resh 2013; Somerville et al. 2014; Sonneveld and Voogt 2009). Недавние исследования (Delaide et al. (2017), Schmautz et al. (2015, 2016)) начали заниматься этой темой. Schmautz et al. (2015, 2016) сравнили влияние трех различных гидропонных макетов (т.е. технологии питательной пленки (NFT), плавучего плота и капельного орошения) на поглощение питательными веществами аквапонных томатов. Капельное орошение было системой, которая дала несколько лучшие урожаи с томатами. Минеральное содержание плодов (P, K, Ca, Mg) эквивалентно обычным значениям, несмотря на то, что содержание железа и цинка было выше. Листья, однако, имели более низкие уровни P, K, S, Ca, Mg, Fe, Cu и Zn, чем в обычном сельском хозяйстве. Delaide et al. (2016) следовали циклам макро- и микроэлементов в связанной аквапонной системе. Они отметили, что K, P, Fe, Cu, Zn, Mn и Mo не имеют в своем аквапонном растворе, в то время как N, Ca, B и Na быстро накапливались. Graber and Junge (2009) отметили, что их аквапонный раствор содержит в три раза меньше азота и в десять раз меньше фосфора, чем гидропонный раствор. Что касается калия (К), то он был в 45 раз ниже по сравнению с гидропоникой. Тем не менее, они получили урожайность как аналогичные урожаи, несмотря на то, что качество было хуже из-за отсутствия калия (К).
Факторы, влияющие на циклы питательных веществ
Интенсивность света, температура корневой зоны, температура воздуха, наличие питательных веществ, стадия роста и скорость роста — все это влияет на поглощение растений питательными веществами (Buzby and Lin 2014). Эксперименты, проведенные Schmautz et al. (2016) и Lennard and Leonard (2006), показали, что гидропонный метод также может играть определенную роль в поглощении растений питательными веществами, и поэтому необходимо сопоставить систему выращивания с типом выращиваемых овощей. Таким образом, NFT и DWC (глубоководная культура — плот) подходят для зелени, в то время как капельное орошение на каменноватных плитах больше подходит для фруктовых овощей (Resh 2013).
9.4.2 Макронутриентные циклы
**Углерод (С) **
Углерод подается рыбе через корм (Timmons and Ebeling 2013) и растениям с помощью фиксации COSub2/Sub. Рыба может использовать 22% углерода, содержащегося в корме для рыб, для увеличения биомассы и обмена веществ. Остальная часть поглощенного углерода либо экскретируется в форме COSub2/Sub (52%), либо выводится в растворенной (0,7— 3%) и твердой (25%) форме (Timmons and Ebeling 2013). Очищенный COSub2/Sub может также использоваться заводами для собственного источника углерода (Körner et al. 2017). Несъеденная часть кормового углерода остается для разложения в системе. Вид углеводов, содержащихся в кормах для рыб (например, крахмальные или некрахмальные полисахариды), также может влиять на усвояемость корма и биоразлагаемость отходов в аквакультуре или аквапонной системе (Meriac et al. 2014).
**Азот (N) **
Азот поглощается растениями либо в нитратной, либо аммониевой форме (Sonneveld and Voogt 2009; Xu et al. 2012) в зависимости от концентрации и физиологии растений (Fink and Feller 1998 цитируется Wongkiew et al. 2017). Не следует упускать из виду ассоциации растений и микроорганизмов, поскольку растения влияют на присутствие микроорганизмов в аквапонике, а микроорганизмы могут играть значительную роль в поглощении азота растений (Wongkiew et al. 2017). На поглощение азота растениями влияет концентрация углекислого газа в окружающем воздухе (Zhang et al. 2008 цитируется Wongkiew et al. 2017).
**Фосфор (P) **
Фосфор является одним из важнейших элементов роста растений и может быть поглощен в ионной ортофосфатной форме (HSub2/subposub4/subsup-/SUP, HPOSub4/sUP2-/SUP, POSub4/sUP3-/SUP) (Prabhu et al. 2007; Resh 2013). О динамике фосфора в аквапонике мало известно. Основным источником фосфора в систему является корм для рыб (Cerozi и Fitzsimmons 2017; Delaide et al. 2017; Schmautz et al. 2015), а в недополненных системах (глава 7), фосфор, как правило, может ограничивать рост растений (Graber и июнь 2009 года; Сирайт и др., 1998 год). По данным Rafiee and Saad (2005), рыба может использовать до 15% фосфора, содержащегося в корме. В системе выращивания салата Cerozi и Fitzsimmons (2017) заметили, что количество фосфора, обеспечиваемого кормом для рыбы, может быть достаточным или недостаточным в зависимости от стадии роста. До 100% фосфора, присутствующего в рыбной воде, может быть переработано в растительной биомассе, в зависимости от конструкции системы. Graber and Junge (2009) наблюдали 50% переработки, в то время как Schmautz et al. (2015) сообщили, что 32% фосфора можно найти в плодах и 28% в листьях. Растворимость фосфора зависит от рН, а более высокий рН будет способствовать осаждению фосфора, тем самым делая его недоступным для растений (Yildiz et al. 2017). Фосфор может осаждаться как струвит (фосфат магния аммония) (Le Corre et al. 2005) и/или гидроксиапатит (Cerozi и Fitzsimmons 2017; Goddek et al. 2015). Эти нерастворимые комплексы удаляются с помощью твердого рыбного ила из системы. Schneider et al. (2004) сообщили, что 30— 65% фосфора, содержащегося в корме для рыб, остается недоступным для растений, так как он фиксируется в твердых экскрементах, которые затем удаляются с помощью механической фильтрации. По оценкам Yogev et al. (2016), этот убыток может составить до 85%. Одним из вариантов предотвращения такой массовой потери P через твердый шлам является добавление пищеварения в систему аквапоники. Во время аэробного или анаэробного сбраживания Р высвобождается в дигестат и может быть повторно введен в циркулирующую воду (Goddek et al. 2016).
**Калий (K) **
Delaide et al. (2017) обнаружили, что основным источником K в их системе является корм для рыб. Рыба может потреблять до 7% K, содержащихся в кормах для рыб (Rafiee and Saad 2005). Однако калий не нужен для рыб, что приводит к низкому калийному составу корма для рыб и еще более низкому уровню калия, доступному для растений (Graber and Junge 2009; Seawright et al. 1998; Suhl et al. 2016). Для подачи калия часто используется буфер рН КОН, поскольку рН часто уменьшается в аквапонике из-за нитрификации (Graber and Junge 2009). В аквапонной системе, посаженной томатами, калий накапливается в основном в плодах (Schmautz et al. 2016).
**Магний (Mg), кальций (Ca) и серы (S) **
Основным источником Mg, Ca и S является водопроводная вода, которая облегчает поглощение растениями, поскольку питательные вещества уже доступны (Delaide et al. 2017). Однако кальций присутствует в недостаточном уровне в аквапонике (Schmautz et al. 2015; Seawright et al. 1998) и добавляется в виде гидроксида кальция Ca (OH) sub2/sub (Timmons and Ebeling 2013). Согласно Rafiee and Saad (2005), рыба может потреблять в среднем 26,8% кальция и 20,3% магния, присутствующего в корме. Сера часто находится на низком уровне в аквапонных системах (Graber and Junge 2009; Seawright et al. 1998).
9.4.3 Циклы питательных микроэлементов
Железо (Fe), марганец (Mn) и цинк (Zn) получают главным образом из корма для рыб, в то время как бор (B) и медь (Cu) получают из водопроводной воды (Delaide et al. 2017). В аквапонике основные микроэлементы часто присутствуют, но находятся на слишком низком уровне (Delaide et al. 2017), и в этом случае требуется дополнительное питание из внешних источников питательных веществ (глава 8). Дефицит железа очень часто встречается в аквапонике (Schmautz et al. 2015; Seawright et al. 1998; Fitzsimmons and Posadas; 1997 цитируется Licamele 2009), главным образом из-за отсутствия формы ионов железа. Этот недостаток можно решить путем использования бактериального сидерофора (т.е. органических железохелатных соединений), производимых такими родами, как Bacillus или Pseudomonas (Bartelme et al. 2018), или путем добавления железа химическим хелатным железом, чтобы избежать осадков железа.
9.4.4 Потери питательных веществ
Сокращение потерь питательных веществ является постоянной задачей, стоящей перед практикующими аквапоники. Потеря питательных веществ происходит несколькими способами, например, поселение осадка (37% фекалий и 18% нееденных кормов) (Neto и Ostrensky 2015), потери воды, денитрификация, летучесть аммиака и т.д. (Wongkiew et al. 2017). В качестве примера, Rafiee and Saad (2005) отмечают, что 24% железа, 86% марганца, 47% цинка, 22% меди, 16% кальция, 89% магния, 6% азота, 6% калия и 18% фосфора, содержащегося в корме для рыб, содержались в шламе. В осадке может содержаться до 40% питательных веществ, присутствующих в кормовых поступлениях (Yogev et al. 2016).
Денитрификация может привести к потере 25— 60% азота (Hu et al. 2015; Zou et al. 2016). Денитрификация также связана с аноксическими условиями (Madigan and Martinko 2007; van Lier et al. 2008) и низким уровнем углерода и является причиной превращения нитрата в нитрит, оксид азота (NO), закись азота (NSub2/Subo) и, в конечном счете, газ азота (NSub2/Sub), с потоками в атмосферу (там же. ). Денитрификация проводится несколькими факультативными гетеротрофными бактериями, такими как Ахромобактер, Аэробактер, _Ацинетобактерий, Bacillus, Brevibacterium, Flavobacterium, Pseudomonas, Proteus и Micrococccus sp. (Gentile et al. 2007; Michaud et al. 2006; Wongkiew et al. Некоторые бактерии могут выполнять как нитрификацию, так и денитрификацию, если уровень растворенного кислорода ниже 0,3 мг/л (Fitzgerald et al. 2015; Wongkiew et al. 2017). Потеря азота может также возникать в результате анаэробного окисления аммония (ANAMMOX), т.е. окисления аммония в динитрогенный газ в присутствии нитрита (Hu et al. 2011).
Еще одной важной потерей азота, которая должна быть доступна для растений, является потребление азота гетеротрофными аэробными бактериями, присутствующими в аквапонных системах. Действительно, азот, используемый этими бактериями, теряется от нитрифицирующих бактерий, и, таким образом, нитрификация затрудняется (Blancheton et al. 2013). Эти бактерии особенно присутствуют, когда соотношение C/N увеличивается, поскольку они более конкурентоспособны и способны колонизировать среду, чем автотрофические нитрифицирующие бактерии (Blancheton et al. 2013; Wongkiew et al. 2017).
9.4.5 Динамика систем баланса питательных веществ
Концентрация питательных веществ двух основных подсистем в аквапонной системе, т.е. в емкостях для рыб (аквакультура) и гидропонный раствор, должна быть сбалансирована с учетом каждой из их потребностей. В закрытых аквапонных системах питательные вещества переносятся от рыбы к растениям более или менее непосредственно через фильтры (обычно барабанный фильтр или отстойник, а затем биофильтр) для нитрификации. Однако потребности культур в питательных веществах и питательных веществах, поставляемых из аквапонной подсистемы, не сбалансированы. В многоконтурных и развязанных системах (глава 8) легче обеспечить оптимальные условия как для секций рыб, так и для растений. С помощью моделирования систем (глава 11) можно рассчитать оптимальный размер гидропонной площади для емкостей для рыб, биофильтров и другого оборудования (Goddek and Körner 2019). Это особенно важно для развязанных многоконтурных систем, которые включают различные типы оборудования. Например, UASB (восходящее анаэробное иловое одеяло) (Goddek et al. 2018) или опреснительные установки (Goddek and Keesman 2018) должны быть тщательно определены, как описано в главе 8. Необходимо устранить и сбалансировать основное несоответствие питательных веществ, поставляемых рыбной средой, и потребностей сельскохозяйственных культур. Для повышения концентрации питательных веществ Goddek и Kesman (2018) описали соответствующую установку опреснения (глава 8). Этот подход, однако, решает лишь часть проблемы, так как идеально сбалансированная система управляется нединамической скоростью испарения, достижимой только в закрытых камерах и идеально работающих установках. Однако реальность такова, что эвапотранспирация урожая (ETSubc/Sub) в системах аквапоники на основе теплиц в значительной степени зависит от множества факторов, таких как физический климат и биологические переменные. Etsubc/sub рассчитывается по площади поверхности земли, покрытой урожаем, и рассчитывается для различных уровней в пологе (z) путем интеграции облучающих чистых потоков, сопротивления граничного слоя, устойчивости к устьям и дефицита давления паров, /sub в пологе (Körner et al. 2007) с использованием Penman— Уравнение Монтейта. Это уравнение, тем не менее, вычисляет только поток воды через урожай. Употребление питательных веществ может быть рассчитано просто на основе предположения о том, что все разбавленные питательные вещества в воде поглощаются урожаем. На самом деле, однако, усвоение питательных веществ является весьма сложным вопросом. Различные питательные вещества имеют разные состояния, меняющиеся с такими параметрами, как рН. Между тем наличие питательных веществ в растениях сильно зависит от pH и зависимости питательных веществ друг от друга (например, наличие K/Ca). Кроме того, микробиом в корневой зоне играет важную роль (Orozco-Mosque et al. 2018), который еще не реализован в моделях, хотя некоторые модели различают пути флоема и ксилема. Таким образом, огромное количество питательных веществ не смоделировано в деталях для балансировки водных питательных веществ и определения размеров систем. Самый простой способ оценить поглощение питательных веществ - это предположение о том, что питательные вещества поглощаются или поглощаются как растворенные в оросительной воде и применяются к описанному выше подходу расчета ETSUBC/Sub и предполагают, что не существует конкретных химических, биологических или физических сопротивлений. Следовательно, для поддержания равновесия все питательные вещества, поглощенные растениями, содержащиеся в питательном растворе, должны быть добавлены обратно в гидропонную систему.
9.5 Выводы
Original publication · Впервые опубликовано в FarmHub Learn · Aquaponics Food Production Systems
9.5.1 Текущие недостатки циклического цикла питательных веществ в аквапонике
В гидропонике биогенный раствор точно определяется и хорошо понимается и контролируется поступление питательных веществ в систему. Это позволяет относительно легко адаптировать питательные растворы для каждого вида растений и для каждой стадии роста. В аквапонике, согласно определению (Palm et al. 2018), питательные вещества должны исходить не менее 50% из несъеденных кормов рыб, твердых фекалий рыб и растворимых в рыбе экскрементов, что затрудняет мониторинг концентраций питательных веществ для поглощения растений. Вторым недостатком является потеря питательных веществ по нескольким путям, таким как удаление осадка, обновление воды или денитрификация. Удаление осадка приводит к потере питательных веществ, поскольку несколько ключевых питательных веществ, таких как фосфор, часто оседают, а затем попадают в удаленный твердый шлам. Возобновление воды, которое должно происходить даже в небольших пропорциях, также приводит к потере питательных веществ из аквапонного контура. Наконец, денитрификация происходит из-за наличия денитрифицирующих бактерий и условий, благоприятных для их метаболизма.
9.5.2 Как улучшить цикл питательных веществ?
В заключение следует отметить, что циклы питательных веществ все еще нуждаются в совершенствовании, чтобы оптимизировать рост растений в аквапонике. Таким образом, в настоящее время в [главе 8] изучается несколько вариантов (/сообщество/статьи/глава 8-десопряженные системы аквапоники). Во избежание потери питательных веществ, улавливаемых в осадке, были разработаны агрегаты реминерализации осадка (глава 10). Цель этих агрегатов состоит в извлечении питательных веществ, улавливаемых в твердой форме в осадке, и их повторном внедрении в систему в форме, которую растения могут поглощать (Delaide 2017). Еще одним методом уменьшения потерь питательных веществ было бы содействие поглощению растений за счет концентрации аквапонного раствора (т.е. удаление части воды для сохранения такого же количества питательных веществ, но в меньшем объеме воды). Такая концентрация может быть достигнута с помощью установки опреснения в составе аквапонной системы (Goddek and Körner 2019; Goddek and Keesman 2018). Наконец, использование разветвленных/многоконтурных систем обеспечивает оптимальные условия жизни и выращивания для всех рыб, растений и микроорганизмов. Хотя в этой области были проведены некоторые исследования, необходимо провести дополнительные исследования, с тем чтобы лучше понять циклы питательных веществ в аквапонике. Более того, более подробная информация о точных циклах каждого макроэлемента (какая форма, как он может быть преобразован или нет микроорганизмами, как он воспринимается растениями в аквапонике) или о влиянии видов растений и рыб и параметров воды на циклы питательных веществ может значительно помочь пониманию аквапонические системы.