Source material
Chapitre 9 Cyclage des éléments nutritifs dans les systèmes aquaponiques
Mathilde Eck, Oliver Körner et M. Haïssam Jijakli
Abstract En aquaponie, les nutriments proviennent principalement de l'alimentation des poissons et des apports d'eau dans le système. Une partie importante de l'aliment est ingérée par les poissons et soit utilisée pour la croissance et le métabolisme, soit excrétée sous forme de matières fécales solubles et solides, tandis que le reste des aliments non consommés se désintègre dans les réservoirs. Bien que les excrétions solubles soient facilement disponibles pour les plantes, les matières fécales solides doivent être minéralisées par des micro-organismes afin que leur teneur en nutriments puisse être absorbée par les plantes. Il est donc plus difficile de contrôler les concentrations d'éléments nutritifs disponibles en aquaponie que dans l'hydroponie. De plus, de nombreux facteurs, entre autres le pH, la température et l'intensité lumineuse, influencent la disponibilité des nutriments et l'absorption des plantes. Jusqu'à aujourd'hui, la plupart des études se sont concentrées sur les cycles de l'azote et du phosphore. Cependant, pour assurer un bon rendement des cultures, il est nécessaire de fournir aux plantes des niveaux suffisants de tous les nutriments clés. Il est donc essentiel de mieux comprendre et contrôler les cycles nutritionnels en aquaponie.
Mots-clés Aquaponics · Cyclage des nutriments · Solubilisation · Procédés microbiologiques
- 9.1 Introduction
- 9.2 Origine des nutriments
- 9.3 Procédés microbiologiques
- 9.4 Bilan de masse : Qu'arrive-t-il aux nutriments une fois qu'ils entrent dans le système aquaponique ?
- 9.5 Conclusions
- Références
—
M. Eck · M. H. Jijakli
Laboratoire de pathologie végétale intégrée et urbaine, Université de Liège, Agro-Bio Tech, Gembloux, Belgique
O. Körner
Leibniz-Institut des cultures végétales et ornementales (IGZ), Grossbeeren, Allemagne
© L'auteur (s) 2019 231
S. Goddek et coll. (éd.), Aquaponics Food Production Systems, https://doi.org/10.1007/978-3-030-15943-6_9
—
Références
Bartelme RP, Oyserman BO, Blom JE, Sepulveda-Villet OJ, Newton RJ (2018) Décapage du sol : la croissance des plantes favorise les opportunités microbiologiques en aquaponie. Front Microbiol 9 (8). https://doi.org/10.3389/fmicb.2018.00008
Bittsanszky A, Uzinger N, Gyulai G, Mathis A, Junge R, Villarroel M, Kotzen B, Komives T (2016) Approvisionnement en nutriments des plantes dans les systèmes aquaponiques. Ecocycles 2 (1720). https://doi.org/10.19040/ ecocycles.v2i2.57
Blancheton JP, Attramadal KJK, Michaud L, d'Orbcastel ER, Vadstein O (2013) Aperçu de la population bactérienne dans les systèmes aquacoles et de ses implications. Aquac Fr 53:30 —39
Boyd CE (2015) Aperçu des aliments pour l'aquaculture : impacts mondiaux de l'utilisation des ingrédients. Alimentation Pract Aquac 3—25. https://doi.org/10.1016/B978-0-08-100506-4.00001-5
Bugbee B (2004) Gestion des éléments nutritifs dans la culture hydroponique en recirculation. Acta Hortic 648:99 —112. https://doi.org/10.17660/ActaHortic.2004.648.12
Buzby KM, Lin LS (2014) Mise à l'échelle des systèmes aquaponiques : équilibrer l'absorption des plantes avec la production de poissons. Aquac Eng 63:39 —44. https://doi.org/10.1016/j.aquaeng.2014.09.002
Carsiotis M, Khanna S (1989) Génie génétique de la nitrification microbienne. United States Environmental Protection Agency, Risk Reduction Engineering Laboratory, Cincinnati
Cerozi BS, Fitzsimmons K (2017) Modélisation dynamique du phosphore et bilan massique dans un système aquaponique. Agric Syst 153:94 —100. https://doi.org/10.1016/j.agsy.2017.01.020
Daims H, Lebedeva EV, Pjevac P, Han P, Herbold C, Albertsen M, Jehmlich N, Palatinszky M, Vierheilig J, Bulaev A, Kirkegaard RH, Von Bergen M, Rattei T, Bendinger B, Nielsen H, Wagner M (2015) Nitrification complète par _Nitrification - bactéries. Nature 528:504. https://doi.org/ 10.1038/nature16461
Davidson J, Good C, Barrows FT, Welsh C, Kenney PB, Summerfelt ST (2013) Comparaison des effets de l'alimentation d'une alimentation à base de céréales ou de poisson sur la qualité de l'eau, la production de déchets et la performance de la truite arc-en-ciel Oncorhynchus mykiss dans les systèmes d'aquaculture à recirculation de l'eau à faible échange. Aquac Eng 52:45 —57. https://doi.org/10.1016/J.AQUAENG.2012.08.001
Delaide B (2017) Étude sur les éléments minéraux disponibles en aquaponie, leur impact sur la productivité de la laitue et l'amélioration potentielle de leur disponibilité. Thèse de doctorat. Gembloux AgroBio Tech, Université de Liège
Delaide B, Goddek S, Gott J, Soyeurt H, Haissam Jijakli M, Lalman J, Junge R (2016) Laitue (Lactuca sativa L. var. Sucrine) performance de croissance dans une solution aquaponique complétée surpasse l'hydroponie. Eau 8. https://doi.org/10.3390/w8100467
Delaide B, Delhaye G, Dermience M, Gott J, Soyeurt H, Jijakli MH (2017) Performance de production végétale et de poisson, bilan de masse nutritive, utilisation de l'énergie et de l'eau de la boîte PAFF, un système aquaponique à petite échelle. Aquac Eng 78:130 —139. https://doi.org/10.1016/j.aquaeng.2017. 06.002
Fitzgerald CM, Camejo P, Oshlag JZ, Noguera DR (2015) Communautés microbiennes oxydantes d'ammoniac dans les réacteurs avec une nitrification efficace à l'oxygène faiblement dissous. Eau Res 70:38 —51. https://doi.org/10.1016/J.WATRES.2014.11.041
Geay F, Ferraresso S, Zambonino-Infante JL, Bargelloni L, Quentel C, Vandeputte M, Kaushik S, Cahu CL, Mazurais D (2011) Effets du remplacement total de l'alimentation à base de poisson par un régime végétal sur le transcriptome hépatique de deux demi-familles de bar européen (Dicentrarchus labrax) montrant une croissance différente taux avec le régime à base de plantes. BMC Genomics 12:522. https://doi.org/10.1186/1471-2164-12-522
Gentile ME, Lynn Nyman J, Criddle CS (2007) Corrélation des patrons d'instabilité de la dénitrification dans les communautés de bioréacteurs répliqués avec des changements dans l'abondance relative et les patrons de dénitrification de populations spécifiques. ISME J 1:714 —728. https://doi.org/10.1038/ismej.2007.87
Goddek S, Keesman KJ (2018) La nécessité de la technologie de dessalement pour la conception et le dimensionnement de systèmes aquaponiques multi-boucles. Dessalement 428:76 —85. https://doi.org/10.1016/J.DESAL. 2017.11.024
Goddek S, Körner O (2019) Un modèle de simulation entièrement intégré de l'aquaponie multi-boucles : une étude de cas pour le dimensionnement des systèmes dans différents environnements. Agric Syst 171:143
Goddek S, Delaide B, Mankasingh U, Ragnarsdottir KV, Jijakli H, Thorarinsdottir R (2015) Défis de l'aquaponie durable et commerciale. Durabilité 7:4199 —4224. https ://doi.org/10.3390/su7044199
Goddek S, Schmautz Z, Scott B, Delaide B, Keesman K, Wuertz S, Junge R (2016) Effet du surnageant anaérobie et aérobie des boues de poisson sur la laitue hydroponique. Agronomie 6:37. https ://doi.org/10.3390/agronomy6020037
Goddek S, Delaide BPL, Joyce A, Wuertz S, Jijakli MH, Gross A, Eding EH, Bläser I, Reuter M, Keizer LCP et al (2018) Minéralisation des éléments nutritifs et réduction de la matière organique des boues à base de RAS dans les réacteurs séquentiels UASB-EGSB. Aquac Fr 83:10 —19
Graber A, Junge R (2009) Systèmes aquaponiques : recyclage des nutriments provenant des eaux usées de poisson par production végétale. Dessalement 246:147 —156. https://doi.org/10.1016/j.desal.2008.03.048
Guangzhi G (2001) Bilan massique et qualité de l'eau dans les bassins aquacoles. Programme de formation à la pêche de l'Université des Nations Unies, Reyjavik
Hu B, Shen L, Xu X, Zheng P (2011) Oxydation anaérobie de l'ammonium (anammox) dans différents écosystèmes naturels. Biochem Soc Trans 39:1811 —1816. https://doi.org/10.1042/BST20110711
Hu Z, Lee JW, Chandran K, Kim S, Brotto AC, Khanal SK (2015) Effet des espèces végétales sur la récupération de l'azote en aquaponie. Bioressources 188:92 —98. https://doi.org/10.1016/j.biortech. 2015.01.013
Hua K, Bureau DP (2012) Explorer la possibilité de quantifier les effets des ingrédients protéiques végétaux dans les aliments pour poissons à l'aide de méta-analyses et d'approches fondées sur la simulation de modèles nutritionnels. Aquaculture 356— 357:284 —301. https://doi.org/10.1016/J.AQUACULTURE. 2012.05.003
Jorquera M, Martínez O, Maruyama F, Marschner P, de la Luz Mora M (2008) Applications biotechnologiques actuelles et futures des phytases bactériennes et des bactéries productrices de phytases. Microbes Environ 23:182 —191. https://doi.org/10.1264/jsme2.23.182
Körner O, Aaslyng JM, Andreassen AU, Holst N (2007) Modélisation du microclimat pour un contrôle dynamique du climat à effet de serre. Hortscience 42:272 —279
Körner O, Gutzmann E, Kledal PR (2017) Un modèle dynamique simulant les effets symbiotiques dans les systèmes aquaponiques. Acta Hortic 1170:309 —316
Kuhn DD, Drahos DD, Marsh L, Flick GJ (2010) Évaluation du produit de bactéries nitrifiantes pour améliorer l'efficacité de la nitrification dans les systèmes d'aquaculture en recirculation. Aquac Eng 43:78 —82. https ://doi.org/10.1016/j.aquaeng.2010.07.001
Le Corre KS, Valsami-Jones E, Hobbs P, Parsons SA (2005) Impact du calcium sur la taille, la forme et la pureté des cristaux de struvite. J Cryst Croissance 283:514 —522. https://doi.org/10.1016/J.JCRYSGRO. 2005.06.012
Lennard WA, Leonard BV (2006) Comparaison de trois sous-systèmes hydroponiques différents (lit de gravier, technique flottante et film nutritif) dans un système d'essai Aquaponic. Aquac Int 14:539 —550. https://doi.org/10.1007/s10499-006-9053-2
Letelier-Gordo CO, Dalsgaard J, Suhr KI, Ekmann KS, Pedersen PB (2015) La réduction du rapport protéine/énergie (P:E) change la solubilisation et la fermentation des fèces de truite arc-en-ciel (Oncorhynchus mykiss). Aquac Fr 66:22 —29
Licamele J (2009) Production de biomasse et dynamique des nutriments dans un système aquaponique. Thèse de doctorat. Département de l'agriculture et de l'ingénierie des biosystèmes, Université de l'Arizona
Losordo MC, Masser MP, Rakocy J (1998) Systèmes de production de réservoirs aquacoles recirculants : un aperçu des considérations critiques. SRAC no 451, p. 18 à 31
Madigan MT, Martinko JM (2007) Biologie des micro-organismes, 11e édn. Pearson Education France, Paris
Meriac A, Eding EH, Schrama J, Kamstra A, Verreth JAJ (2014) La composition des glucides alimentaires peut modifier la production de déchets et la charge de biofiltres dans les systèmes aquacoles en recirculation. Aquaculture 420— 421:254-261. https://doi.org/10.1016/j.aquaculture.2013.11.018
Michaud L, Blancheton JP, Bruni V, Piedrahita R (2006) Effet du carbone organique particulaire sur les populations bactériennes hétérotrophes et efficacité de nitrification dans les filtres biologiques. Aquac Eng 34:224 —233. https://doi.org/10.1016/j.aquaeng.2005.07.005
Munguia-Fragozo P, Alatorre-Jacome O, Rico-Garcia E, Torres-Pacheco I, Cruz-Hernandez A, Ocamppo-Velazquez RV, Garcia-Trejo JF, Guevara-Gonzalez RG (2015) Perspective pour les systèmes aquaponiques : technologies « omiques » pour l'analyse des communautés microbiennes. Biomed Res Int 2015:1. https://doi.org/10.1155/2015/480386
Neto MR, Ostrensky A (2015) Estimation de la charge nutritive dans les déchets du Nil Tilapia Oreochromis niloticus (L.) élevés dans des cages dans des conditions climatiques tropicales. Aquac Res 46:1309 —1322. https ://doi.org/10.1111/are.12280
Orozco-Mosque MC, Rocha-Granados MC, Glick BR, Santoyo G (2018) Ingénierie microbiome pour améliorer le contrôle biologique et le mécanisme favorisant la croissance des plantes. Microbiol Res sous presse
Palm HW, Knaus U, Appelbaum S, Goddek S, Strauch SM, Vermeulen T, Haїssam Jijakli M, Kotzen B (2018) Vers l'aquaponie commerciale : une revue des systèmes, des conceptions, des échelles et de la nomenclature. Aquac Int 26:813 —842
Prabhu AS, Fageria NK, Berni RF, Rodrigues FA (2007) Phosphore et maladie des plantes. In : Datnoff LE, Elmer WH, Huber DM (dir.) Nutrition minérale et maladie des plantes. The American Phytopathological Society, St. Paul, p. 45 à 55
Rafiee G, Saad CR (2005) Cycle nutritif et production de boues à différents stades de croissance rouge de Tilapia (Oreochromis sp.) dans un système aquacole en recirculation. Aquaculture 244:109 —118. https://doi.org/10.1016/J.AQUACULTURE.2004.10.029
Rakocy JE, Shultz RC, Bailey DS, Thoman ES (2004) Production aquaponique de Tilapia et de basilic : comparaison d'un système de culture par lots et échelonné. Acta Hortic 648:63 —69. https://doi.org/10. 17660/Actahortic.2004.648.8
Rakocy JE, Masser MP, Losordo TM (2006) Systèmes de production de bassins aquacoles recirculants : aquaponique- intégrant la pisciculture et la culture végétale. SRAC Publ Sud Reg Aquac Cent 16. https ://doi.org/454
Randall D, Tsui TK (2002) Toxicité de l'ammoniac chez les poissons. Mar Pollut Bull 45:17-23. https://doi.org/10. 1016/S0025-326X (02) 00227-8
Resh HM (2013) Production d'aliments hydroponiques : un guide définitif pour le jardinier avancé et le cultivateur hydroponique commercial, 7th edn. CRC Press, Boca Raton
Roosta HR, Hamidpour M (2011) Effets de l'application foliaire de certains macro- et micro-nutriments sur les plants de tomates dans les systèmes aquaponiques et hydroponiques. Sci Hortic 129:396-402. https://doi.org/ 10.1016/J.SCIENTA.2011.04.006
Roosta HR, Hamidpour M (2013) Teneur en nutriments minéraux des plants de tomates dans les systèmes aquaponique et hydroponique : effet de l'application foliaire de certains macro- et micro-nutriments. J Plant Nutr 36:2070 —2083. https://doi.org/10.1080/01904167.2013.821707
Ru D, Liu J, Hu Z, Zou Y, Jiang L, Cheng X, Lv Z (2017) Amélioration de la performance aquaponique grâce à l'ajout de micro-nutriments et macro-nutriments. Environ Sci Pollut Res 24:16328 —16335. https ://doi.org/10.1007/s11356-017-9273-1
Rurangwa E, Verdegem MCJ (2013) Les micro-organismes dans les systèmes d'aquaculture en recirculation et leur gestion. Rév Aquac 7:117 —130. https://doi.org/10.1111/raq.12057
Schmautz Z, Graber A, Mathis A, Griessler Bulc T, Junge R (2015) Production de tomates dans le système aquaponique : bilan massique et recyclage des éléments nutritifs (résumé)
Schmautz Z, Loeu F, Liebisch F, Graber A, Mathis A, Bulc TG, Junge R (2016) Productivité et qualité de la tomate en aquaponie : comparaison de trois méthodes hydroponiques. Eau 8:1 —22. https://doi.org/10.3390/w8110533
Schmautz Z, Graber A, Jaenicke S, Goesmann A, Junge R, Smits THM (2017) Diversité microbienne dans différents compartiments d'un système aquaponique. Arch Microbiol 199:613. https://doi.org/10. 1007/s00203-016-1334-1
Schneider O, Sereti V, Eding EH, Verreth JAJ (2004) Analyse des flux nutritifs dans les systèmes intégrés d'aquaculture intensive. Aquac Eng 32:379 —401. https://doi.org/10.1016/j.aquaeng.2004. 09.001
Seawright DE, Stickney RR, Walker RB (1998) Dynamique des éléments nutritifs dans les systèmes intégrés d'aquaculture — hydroponique. Aquaculture 160:215 —237
Shoda M (2014) Nitrification hétérotrophe et dénitrification aérobie par Alcaligenes faecalis. J Biosci Bioeng 117:737 —741. https://doi.org/10.5772/68052
Somerville C, Stankus A, Lovatelli A (2014) Production d'aliments aquaponiques à petite échelle. Exploitation piscicole et végétale intégrée. Organisation des Nations Unies pour l'alimentation et l'agriculture, Rome
Sonneveld C, Voogt W (2009) Nutrition des plantes des cultures en serre. Springer, Dordrecht/ Heidelberg/Londres/New York
Sugita H, Nakamura H, Shimada T (2005) Communautés microbiennes associées aux matériaux filtrants dans les systèmes d'aquaculture en recirculation des poissons d'eau douce. Aquaculture 243:403. https://doi.org/10.1016/j.aquaculture.2004.09.028
Suhl J, Dannehl D, Kloas W, Baganz D, Jobs S, Scheibe G, Schmidt U (2016) Aquaponie avancée : évaluation de la production intensive de tomates en aquaponie par rapport à l'hydroponie conventionnelle. Agric Water Manag 178:335 —344. https://doi.org/10.1016/j.agwat.2016.10.013
Tacon AGJ, Metian M (2008) Aperçu global de l'utilisation de la farine de poisson et de l'huile de poisson dans les aquafeeds industriels : tendances et perspectives d'avenir. Aquaculture 285:146 —158. https://doi.org/10.1016/j.aquaculture.2008.08.015
Timmons MB, Ebeling JM (2013) Reculating aquaculture. Ithaca Publishing, New York
Turcios AE, Papenbrock J (2014) Traitement durable des effluents aquacoles — Que pouvons-nous apprendre du passé pour l'avenir ? Sustainability 6:836 —856. https://doi.org/10.3390/su6020836 van Lier JB, Mahmoud N, Zeeman G (2008) In : Henze M, van Loosdrecht MCM, Ekama GA, Brdjanovic D (dir.) Traitement anaérobie des eaux usées, in : traitement biologique des eaux usées : principes, modélisation et conception. IWA Publishing, Londres. ISBN : 9781843391883
van Rijn J (2013) Traitement des déchets dans les systèmes aquacoles en recirculation. Aquac Eng 53:49 —56. https://doi.org/10.1016/J.AQUAENG.2012.11.010
Wongkiew S, Hu Z, Chandran K, Lee JW, Khanal SK (2017) Transformations d'azote dans les systèmes aquaponiques : une revue. Aquac Eng 76:9 —19. https://doi.org/10.1016/j.aquaeng.2017.01. 004
Xu G, Fan X, Miller AJ (2012) Assimilation d'azote des plantes et efficacité d'utilisation. Annu Rev Plante Biol 63:153 —182. https://doi.org/10.1146/annurev-arplant-042811-105532
Yildiz HY, Robaina L, Pirhonen J, Mente E, Domínguez D, Parisi G (2017) Bien-être des poissons dans les systèmes aquaponiques : sa relation avec la qualité de l'eau en mettant l'accent sur les aliments pour animaux et les matières fécales — Une revue. Eau 9. https://doi.org/10.3390/w9010013
Yogev U, Barnes A, Gross A (2016) Analyse des éléments nutritifs et du bilan énergétique pour un modèle conceptuel d'un trois boucles hors grille, aquaponique. Eau 8. https://doi.org/10.3390/w8120589
Zekki H, Gauthier L, Gosselin A (1996) Croissance, productivité et composition minérale de tomates de serre cultivées en hydroponie, avec ou sans recyclage de solution nutritive. J Am Soc Hortique Sci 121:1082 —1088
Zou Y, Hu Z, Zhang J, Xie H, Guimbaud C, Fang Y (2016) Effets du pH sur les transformations d'azote dans les milieux aquaponiques. Bioresour Technol 210:81 —87. https://doi.org/10.1016/ J.BIORTECH.2015.12.079
Open Access Ce chapitre est sous licence sous les termes de la licence Creative Commons Attribution 4.0 International (http://creativecommons.org/licenses/by/4.0/)), qui permet l'utilisation, le partage, l'adaptation, la distribution et la reproduction dans n'importe quel support ou format, comme dans la mesure où vous donnez le crédit approprié à l'auteur original et à la source, fournissez un lien vers la licence Creative Commons et indiquez si des modifications ont été apportées.
Les images ou tout autre matériel de tiers figurant dans ce chapitre sont inclus dans la licence Creative Commons du chapitre, sauf indication contraire dans une ligne de crédit relative au matériel. Si le matériel n'est pas inclus dans la licence Creative Commons du chapitre et que votre utilisation prévue n'est pas autorisée par la loi ou dépasse l'utilisation autorisée, vous devrez obtenir l'autorisation directement du détenteur du droit d'auteur.
Aquaponics Food Production Systems contributors.
Voir l’édition originale · Creative Commons Attribution 4.0
Cette édition de la bibliothèque est reformattée et consolidée à partir de la source originale.
9.1 Introduction
Original publication · Publié pour la première fois sur FarmHub Learn · Aquaponics Food Production Systems
Les systèmes aquaponiques offrent divers avantages lorsqu'il s'agit de produire des aliments de manière innovante et durable. Outre les effets synergiques de l'augmentation de la concentration aérienne de COSub2/sous pour les cultures en serre et de la diminution de la consommation totale d'énergie thermique lors de la culture du poisson et des cultures dans le même espace (Körner et al., 2017), l'aquaponie présente deux avantages principaux pour le cycle des nutriments. Premièrement, la combinaison d'un système d'aquaculture en recirculation et d'une production hydroponique évite le rejet d'effluents aquacoles enrichis en azote et en phosphore dissous dans des eaux souterraines déjà polluées (Buzby et Lin 2014 ; Guangzhi 2001 ; van Rijn 2013), et deuxièmement, elle permet la fertilisation de les cultures sans sol avec ce qui peut être considéré comme une solution organique (Goddek et al. 2015 ; Schneider et al. 2004 ; Yogev et al. 2016) au lieu d'utiliser des engrais d'origine minérale fabriqués à partir de ressources naturelles appauvrissant (Schmautz et al. 2016 ; Chap. 2). De plus, l'aquaponie produit une croissance végétale comparable à celle de l'hydroponie classique malgré les concentrations plus faibles de la plupart des nutriments dans l'eau d'aquaculture (Graber et Junge, 2009 ; Bittsanszky et al., 2016 ; Delaide et al., 2016), et la production peut être encore meilleure que dans le sol (Rakocy et al., 2004). On pense que l'augmentation des concentrations de COSub2/sous dans l'environnement aérien et les changements dans les biomes de la zone racinaire sont les principales raisons de cela. De plus, la teneur en minéraux et la qualité nutritionnelle des tomates cultivées en aquaponie sont équivalentes ou supérieures à la teneur en minéraux des tomates cultivées conventionnellement (Schmautz et al., 2016).
Malgré deux atouts attrayants (c'est-à-dire le recyclage des effluents d'aquaculture et l'utilisation d'engrais organiques), l'utilisation des effluents d'aquaculture accroît le défi de la surveillance des nutriments contenus dans la solution. En effet, il est plus difficile de contrôler la composition d'une solution où les nutriments proviennent d'une dégradation biologique de la matière organique que de suivre l'évolution de la concentration des éléments nutritifs dans une solution hydroponique avec précision à base de composés minéraux (Bittsanszky et al., 2016 ; Timmons et Ebeling 2013). De plus, les besoins nutritionnels d'une plante varient au cours de la période de croissance en fonction des stades physiologiques, et il est nécessaire de répondre à ces besoins pour maximiser les rendements (Bugbee 2004 ; Zekki et al. 1996 ; Chap. 4).
Afin de recycler les effluents d'aquaculture pour produire de la biomasse végétale, il est nécessaire d'optimiser les taux de recyclage du phosphore et de l'azote (Goddek et al. 2016 ; Graber et Junge 2009 ; Chap. 1). Plusieurs facteurs peuvent influer sur cette situation, notamment les espèces de poissons, la densité des poissons, la température de l'eau, le type de plantes et la communauté microbienne (ibid.). Il est donc primordial de comprendre le fonctionnement des cycles nutritionnels en aquaponie (Seawright et al., 1998). Ce chapitre vise à expliquer l'origine des nutriments dans un système aquaponique, à décrire les cycles nutritionnels et à analyser les causes des pertes de nutriments.
9.2 Origine des éléments nutritifs
Original publication · Publié pour la première fois sur FarmHub Learn · Aquaponics Food Production Systems
Les principales sources d'éléments nutritifs dans un système aquaponique sont les aliments pour poissons et l'eau ajoutée (contenant du Mg, du Ca, du S) (voir sect. 9.3.2.) dans le système (Delaide et coll. 2017 ; Schmautz et coll. 2016), tel que précisé dans Chap. 13. En ce qui concerne les aliments pour poissons, il existe deux types principaux : les aliments à base de farine de poisson et les aliments à base de plantes. La farine de poisson est le type classique d'aliment utilisé en aquaculture où les lipides et les protéines dépendent de la farine de poisson et de l'huile de poisson (Geay et al., 2011). Cependant, depuis un certain temps, des préoccupations concernant la durabilité de ces aliments ont été soulevées et l'attention a été attirée sur les régimes à base de plantes (Boyd, 2015 ; Davidson et al., 2013 ; Hua et Bureau, 2012 ; Tacon et Metian, 2008). Une méta-analyse menée par Hua et Bureau (2012) a révélé que l'utilisation de protéines végétales dans les aliments pour poissons peut influencer la croissance des poissons si elles sont incorporées dans des proportions élevées. En effet, les protéines végétales peuvent avoir un impact sur la digestibilité et les niveaux de facteurs anti-nutritionnels de l'aliment. En particulier, le phosphore provenant des plantes et donc sous forme de phytates ne profite pas, par exemple, au saumon, à la truite et à plusieurs autres espèces de poissons (Timmons et Ebeling, 2013). Il n'est pas surprenant que cette observation soit fortement tributaire des espèces de poissons et de la qualité des ingrédients (Hua et Bureau 2012). Cependant, on sait peu de choses sur l'impact des variations de la composition des aliments pour poissons sur les rendements des cultures (Yildiz et al., 2017).
Les aliments classiques pour poissons sont composés de 6 à 8 macroingrédients et contiennent de 6 à 8 % d'azote organique, 1,2 % de phosphore organique et 40 à 45 % de carbone organique (Timmons et Ebeling, 2013) avec environ 25 % de protéines pour les poissons herbivores ou omnivores et environ 55 % de protéines pour les poissons carnivores (Boyd, 2015). Les lipides peuvent aussi être à base de poissons ou de plantes (Boyd 2015).
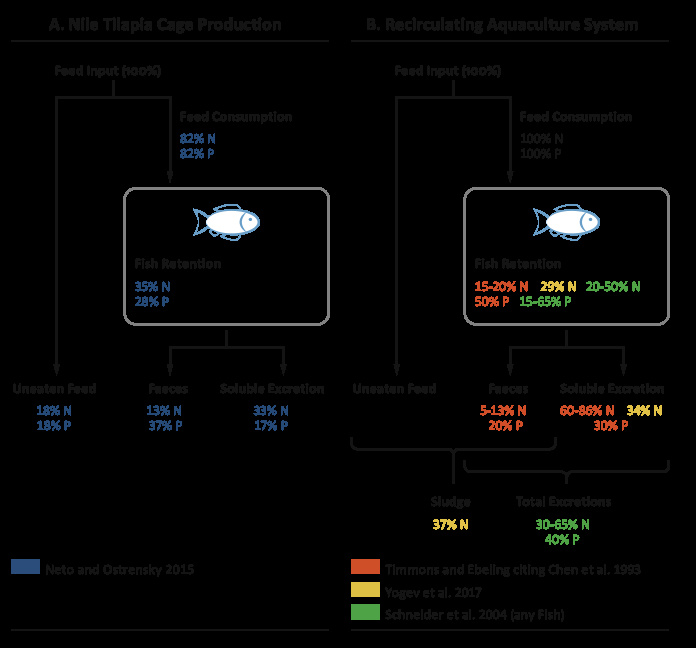
Fig. 9.1 Flux environnemental d'azote et de phosphore en% pour (a) la production en cage du Nil Tilapia (après Neto et Ostrensky 2015) et (b) la production de RAS (à partir de diverses sources)
Une fois les aliments pour poissons ajoutés au système, une partie importante de ceux-ci est consommée par les poissons et soit utilisée pour la croissance et le métabolisme, soit excrétée sous forme de matières fécales solubles et solides, tandis que le reste des aliments donnés se désintègre dans les réservoirs (Goddek et al., 2015 ; Schneider et al., 2004) (figure 9.1). Dans ce cas, les restes d'aliments et les produits métaboliques sont partiellement dissous dans l'eau aquaponique, ce qui permet aux plantes d'absorber directement les nutriments de la solution aquaponique (Schmautz et al., 2016).
Dans la plupart des systèmes de culture (Chap. 7 et 8, des nutriments peuvent être ajoutés pour compléter la solution aquaponique et assurer une meilleure adéquation avec les besoins des plantes (Goddek et al. 2015). En effet, même lorsque le système est couplé, il est possible d'ajouter du fer ou du potassium (qui font souvent défaut) sans nuire aux poissons (Schmautz et al., 2016).
9.2.1 Restes d'aliments pour poissons et excréments de poissons
Idéalement, tous les aliments donnés devraient être consommés par les poissons (Fig. 9.1). Cependant, une petite partie (moins de 5 % (Yogev et al. 2016)) est souvent laissée à la décomposition dans le système et contribue à la charge nutritive de l'eau (Losordo et al. 1998 ; Roosta et Hamidpour 2013 ; Schmautz et al. 2016), consommant ainsi de l'oxygène dissous et libérant du dioxyde de carbone et de l'ammoniac (Losordo et al. 1998) , entre autres choses. La composition des restes d'aliments pour poissons dépend de la composition de l'aliment.
Logiquement, la composition des excréments de poisson dépend de l'alimentation du poisson, ce qui a également un impact sur la qualité de l'eau (Buzby et Lin, 2014 ; Goddek et al., 2015). Cependant, la rétention des éléments nutritifs dans la biomasse des poissons dépend fortement des espèces de poissons, des niveaux d'alimentation, de la composition des aliments, de la taille des poissons et de la température du système (Schneider et al., 2004). À des températures plus élevées, par exemple, le métabolisme des poissons est accéléré et se traduit par une plus grande quantité de nutriments contenus dans la fraction solide des matières fécales (Turcios et Papenbrock, 2014). La proportion de nutriments excrétés dépend également de la qualité et de la digestibilité de l'alimentation (Buzby et Lin 2014). La digestibilité des aliments pour poissons, la taille des matières fécales et le taux de décantation doivent être soigneusement étudiés afin d'assurer un bon équilibre dans le système et de maximiser les rendements des cultures (Yildiz et al., 2017). En effet, bien qu'il soit prioritaire de choisir soigneusement les aliments pour poissons en fonction des besoins des poissons, les composantes des aliments pourraient aussi être choisies pour répondre aux besoins des plantes lorsqu'elles ne font aucune différence pour les poissons (Goddek et al., 2015 ; Licamele, 2009 ; Seawright et al., 1998).
9.3 Procédés microbiologiques
Original publication · Publié pour la première fois sur FarmHub Learn · Aquaponics Food Production Systems
9.3.1 Solubilisation
La solubilisation consiste à décomposer les molécules organiques complexes qui composent les déchets de poisson et à alimenter les restes en nutriments sous forme de minéraux ioniques que les plantes peuvent absorber (Goddek et al. 2015 ; Somerville et al. 2014). En aquaculture (Sugita et al., 2005 ; Turcios et Papenbrock, 2014) et en aquaponie, la solubilisation est principalement réalisée par des bactéries hétérotrophes (van Rijn, 2013 ; Chap. 6) qui n'ont pas encore été complètement identifiées (Goddek et al., 2015). Certaines études ont commencé à déchiffrer la complexité de ces communautés bactériennes (Schmautz et al., 2017). Dans l'aquaculture actuelle, les bactéries les plus fréquemment observées sont Rhizobium sp., Flavobacterium sp., Sphingobacterium sp., Comamonas sp., Acinetobacter sp., Aeromonas sp. et Pseudomonas sp. (Munguia-Fragozo et al. 2015 ; Sugita et al. 2005). Un exemple du rôle majeur des bactéries dans l'aquaponie pourrait être la transformation de phytates insolubles en phosphore (P) mis à la disposition des plantes par la production de phytases particulièrement présentes dans γ-proteobactéria (Jorquera et al., 2008). (Il faut faire davantage de recherches dans ce domaine). D'autres éléments nutritifs que le P peuvent également être piégés sous forme de solides et évacués du système avec les boues. Des efforts sont donc déployés pour reminéraliser cette boue avec des réacteurs UASB-EGSB afin de réinjecter des nutriments dans le système aquaponique (Delaide 2017 ; Goddek et al. 2016 ; Chap. 10. De plus, différents minéraux ne sont pas libérés à la même vitesse, selon la composition de l'aliment (LeTelierGordo et al., 2015), ce qui entraîne une surveillance plus compliquée de leur concentration dans la solution aquaponique (Seawright et al., 1998).
9.3.2 Nitrification
La principale source d'azote dans un système aquaponique est la nourriture pour poissons et les protéines qu'il contient (Goddek et al. 2015 ; Ru et al. 2017 ; Wongkiew et al. 2017 ; Yildiz et al. 2017). Idéalement, 100% de cet aliment devrait être consommé par les poissons. Cependant, on a observé que les poissons n'utilisent qu'environ 30 % de l'azote contenu dans l'aliment donné (Rafiee et Saad, 2005). L'aliment ingéré est utilisé en partie pour l'assimilation et le métabolisme (Wongkiew et al., 2017), tandis que le reste est excrété soit par les branchies, soit sous forme d'urine et de fèces (Ru et al., 2017). L'azote excrété par les branchies est principalement sous forme d'ammoniac, NHsub3/sub (Wongkiew et al. 2017 ; Yildiz et al. 2017), tandis que l'urine et les fèces sont composées d'azote organique (Wongkiew et al. 2017) qui est transformé en ammoniac par les protéases et les déaminases (Sugita et al. 2005). En général, les poissons excrètent de l'azote sous forme de TAN, c'est-à-dire NHSub3/Sub et NHSub4/Subsup+/SUP. L'équilibre entre NHsub3/sub et NHsub4/Subsup+/SUP dépend principalement du pH et de la température. L'ammoniac est le principal déchet produit par le catabolisme des protéines alimentaires (Yildiz et al., 2017).
La nitrification est un processus en deux étapes au cours duquel l'ammoniac NHsub3/sub ou l'ammonium NHsub4/Subsup+/SUP excrété par le poisson est transformé d'abord en nitrite NOsub2/Subsup-/SUP, puis en nitrate NOSub3/Subsup-/SUP par des bactéries autotrophes chimiosynthétiques aérobies spécifiques. Une grande disponibilité d'oxygène dissous est nécessaire car la nitrification consomme de l'oxygène (Carsiotis et Khanna 1989 ; Madigan et Martinko 2007 ; Shoda 2014). La première étape de cette transformation est réalisée par des bactéries oxydantes d'ammoniac (AOB) telles que Nitrosomonas, Nitrosococcus, Nitrosospira, Nitrosolobus et Nitrosovibrio. La deuxième étape est menée par des bactéries oxydantes aux nitrites (NOB) telles que Nitrobacter, Nitrococcus, Nitrospira et Nitrospina (Rurangwa et Verdegem 2013 ; Timmons et Ebeling 2013 ; Wongkiew et al. 2017). On déduit actuellement que Nitrospira est un nitrifiant complet, c'est-à-dire qu'il participe à la production de nitrite et de nitrate (Daims et al. 2015). Les mêmes bactéries peuvent être trouvées dans les systèmes aquacoles et aquaponiques (Wongkiew et al., 2017). Ces bactéries se trouvent principalement dans les biofilms fixés au milieu composant le biofiltre, mais peuvent également être observées dans les autres compartiments du système (Timmons et Ebeling 2013).
La nitrification est d'une importance primordiale en aquaponie, car l'ammoniac et le nitrite sont très toxiques pour les poissons : 0,02—0,07 mg/L d'ammonia—azote suffisent à observer les dommages chez les poissons d'eau chaude, et le nitrite—azote devrait être maintenu à moins de 1 mg/L (Losordo et al., 1998 ; Timmons et Ebeling, 2013). L'ammoniac affecte le système nerveux central du poisson (Randall et Tsui, 2002 ; Timmons et Ebeling, 2013), tandis que le nitrite provoque des problèmes de fixation de l'oxygène (Losordo et al., 1998). Le nitrate — L'azote est toutefois toléré par les poissons jusqu'à 150 à 300 mg/L (Goddek et al., 2015 ; Graber et Junge, 2009 ; Yildiz et al., 2017).
La nitrification se produit principalement dans des biofiltres (Losordo et al., 1998 ; Timmons et Ebeling, 2013). Par conséquent, lors du démarrage d'un système, il est recommandé de faire fonctionner le système sans poisson afin de permettre à la population croissante de bactéries nitrifiantes de s'établir (Timmons et Ebeling, 2013 ; Wongkiew et al., 2017). Il est également nécessaire d'éviter, dans la mesure du possible, la présence de matière organique dans les biofiltres afin d'empêcher la croissance de bactéries hétérotrophes hautement compétitives (Timmons et Ebeling 2013). Par ailleurs, des mélanges commerciaux de bactéries nitrifiantes peuvent être ajoutés au système, avant l'ensemencement, pour accélérer le processus de colonisation (Kuhn et al., 2010). Néanmoins, de petits systèmes aquaponiques sans biofiltre existent également. Dans ces systèmes, les bactéries nitrifiantes forment des biofilms des surfaces disponibles (p. ex. parois hydroponiques des compartiments, milieux inertes lors de l'utilisation de la technique du lit médiatique) (Somerville et al., 2014).
9.4 Bilan de masse : Qu'arrive-t-il aux nutriments une fois qu'ils entrent dans le système aquaponique ?
Original publication · Publié pour la première fois sur FarmHub Learn · Aquaponics Food Production Systems
9.4.1 Contexte
Le fonctionnement des systèmes aquaponiques repose sur un équilibre dynamique des cycles nutritifs (Somerville et al., 2014). Il est donc nécessaire de comprendre ces cycles afin d'optimiser la gestion des systèmes. Les plantes qui poussent en hydroponie ont des exigences spécifiques qui doivent être satisfaites à leurs différents stades de croissance (Resh, 2013). Par conséquent, les concentrations d'éléments nutritifs dans les différents compartiments du système doivent être surveillées de près, et les nutriments doivent être complétés pour prévenir les carences (Resh, 2013 ; Seawright et al., 1998), soit dans l'eau du système, soit par application foliaire (Roosta et Hamidpour, 2011).
Selon Delaide et al. (2016), dans certains cas, le complément d'une solution aquaponique avec des minéraux nutritifs afin d'atteindre les mêmes concentrations nutritives que dans l'hydroponie pourrait conduire à des rendements plus élevés que ceux obtenus en hydroponie. La première étape à franchir vers un système équilibré est la conception correcte et le dimensionnement relatif des compartiments (Buzby et Lin 2014). Si le compartiment hydroponique est trop petit par rapport aux bassins à poissons, les nutriments s'accumuleront dans l'eau et pourraient atteindre des niveaux toxiques. Le taux d'alimentation (c'est-à-dire la quantité d'aliments pour poissons dans le système en fonction de la surface de croissance et du type de plante) est souvent utilisé pour le premier dimensionnement du système (Rakocy et al., 2006 ; Somerville et al., 2014). Cependant, selon Seawright et al. (1998), il n'est pas possible d'atteindre un ratio plantes/poissons qui permettra une adéquation optimale des besoins des plantes si seulement les aliments pour poissons sont utilisés comme intrants. Pour s'assurer que le système est bien équilibré et fonctionne correctement, les méthodes de surveillance sont généralement basées sur le cycle de l'azote (Cerozi et Fitzsimmons 2017 ; Somerville et al. 2014), mais pour assurer un fonctionnement optimal du système, il est nécessaire de surveiller de plus près l'équilibre des autres macronutriments ( N, P, K, Ca, Mg, S) et micronutriments (Fe, Zn, B, Mn, Mo, Cu) (Resh 2013 ; Somerville et al. 2014 ; Sonneveld et Voogt 2009). Des études récentes (Delaide et coll. (2017), Schmautz et coll. (2015, 2016)) ont commencé à aborder ce sujet. Schmautz et coll. (2015, 2016) ont comparé l'impact de trois configurations hydroponiques différentes (c.-à-d. la technique du film nutritif, le radeau flottant et l'irrigation au goutte à goutte) sur l'absorption des nutriments des tomates aquaponiques. L'irrigation goutte à goutte était le système qui produisait des rendements légèrement meilleurs avec les tomates. La teneur en minéraux des fruits (P, K, Ca, Mg) était équivalente aux valeurs conventionnelles même si les teneurs en fer et en zinc étaient plus élevées. Cependant, les feuilles présentaient des niveaux plus faibles de P, K, S, Ca, Mg, Fe, Cu et Zn que dans l'agriculture conventionnelle. Delaide et al. (2016) ont suivi les cycles des macro- et micronutriments dans un système aquaponique couplé. Ils ont observé que K, P, Fe, Cu, Zn, Mn et Mo manquaient dans leur solution aquaponique, alors que N, Ca, B et Na s'accumulaient rapidement. Graber et Junge (2009) ont noté que leur solution aquaponique contenait trois fois moins d'azote et dix fois moins de phosphore qu'une solution hydroponique. Quant au potassium (K), il était 45 fois inférieur à celui de l'hydroponie. Néanmoins, ils ont obtenu des rendements similaires, même si la qualité était plus faible en raison d'un manque de potassium (K).
Facteurs influençant les cycles nutritives
L'intensité lumineuse, la température de la zone racinaire, la température de l'air, la disponibilité des éléments nutritifs, le stade de croissance et le taux de croissance influent tous sur l'absorption des éléments nutritifs d'une plante (Buzby et Lin, 2014). Des expériences menées par Schmautz et al. (2016) et Lennard et Leonard (2006) ont montré que la méthode hydroponique pouvait également jouer un rôle dans la capacité d'absorption des nutriments d'une plante, et il est donc nécessaire de faire correspondre le système de culture au type de légumes cultivés. NFT et DWC (culture en eau profonde — radeau) conviennent donc aux légumes verts feuillus, tandis que l'irrigation goutte à goutte sur des dalles de laine de roche est plus appropriée pour les légumes fruités (Resh 2013).
9.4.2 Cycles de macronutriments
**Carbone (C) **
Le carbone est fourni aux poissons par l'intermédiaire de l'alimentation (Timmons et Ebeling 2013) et aux plantes par fixation COSub2/sub. Les poissons peuvent utiliser 22 % du carbone contenu dans les aliments pour poissons pour augmenter la biomasse et le métabolisme. Le reste du carbone ingéré est soit expiré sous la forme de COSub2/sub (52 %), soit excrété sous forme dissoute (0,7 à 3 %) et solide (25 %) (Timmons et Ebeling, 2013). Le COSub2/Sub expiré peut également être utilisé par les usines pour leur propre source de carbone (Körner et al., 2017). La partie non consommée du carbone d'alimentation est laissée à se décomposer dans le système. Le type de glucides présents dans les aliments pour poissons (p. ex., amidon ou polysaccharides non amidons) peut également influencer la digestibilité de l'aliment et la biodégradabilité des déchets dans un système aquaponique ou aquaponique (Meriac et al., 2014).
**Azote (N) **
L'azote est absorbé par les plantes sous forme de nitrate ou d'ammonium (Sonneveld et Voogt, 2009 ; Xu et al., 2012) selon la concentration et la physiologie de la plante (Fink et Feller, 1998, cité par Wongkiew et al., 2017). Les associations entre les plantes et les micro-organismes ne doivent pas être négligées, car les plantes affectent la présence des micro-organismes dans l'aquaponie, et les micro-organismes peuvent jouer un rôle important dans la capacité d'absorption d'azote des plantes (Wongkiew et al., 2017). L'absorption d'azote par les plantes est affectée par la concentration ambiante de dioxyde de carbone (Zhang et al. 2008 cité par Wongkiew et al. 2017).
**Phosphore (P) **
Le phosphore est l'un des éléments essentiels de la croissance des plantes et peut être absorbé sous sa forme d'orthophosphate ionique (Hsub2/subposub4/subsup-/SUP, HPOsub4/subsup2-/SUP, POsub4/subsup3-/SUP) (Prabhu et al. 2007 ; Resh 2013). On sait peu de choses sur la dynamique du phosphore dans l'aquaponie. Le principal apport de phosphore dans le système est l'alimentation des poissons (Cerozi et Fitzsimmons, 2017 ; Delaide et al., 2017 ; Schmautz et al., 2015), et dans les systèmes non complétés (Chap. 7), le phosphore tend à limiter et peut donc entraver la croissance des plantes (Graber et Junge, 2009 ; Seawright et al., 1998). Selon Rafiee et Saad (2005), les poissons peuvent utiliser jusqu'à 15 % du phosphore contenu dans les aliments. Dans un système de culture de la laitue, Cerozi et Fitzsimmons (2017) ont remarqué que la quantité de phosphore fournie par les aliments pour poissons peut être suffisante ou insuffisante selon le stade de croissance. Jusqu'à 100 % du phosphore présent dans l'eau du poisson peut être recyclé dans la biomasse végétale, selon la conception du système. Graber et Junge (2009) ont observé un recyclage de 50 %, tandis que Schmautz et al. (2015) ont signalé que 32 % du phosphore se trouvait dans les fruits et 28 % dans les feuilles. La solubilité du phosphore dépend du pH, et un pH plus élevé favorisera la précipitation du phosphore, ce qui le rend indisponible pour les plantes (Yildiz et al., 2017). Le phosphore peut précipiter sous forme de struvite (phosphate d'ammonium de magnésium) (Le Corre et al. 2005) et/ou d'hydroxyapatite (Cerozi et Fitzsimmons 2017 ; Goddek et al. 2015). Ces complexes insolubles sont éliminés par des boues de poisson solides du système. Schneider et coll. (2004) ont signalé que 30 à 65 % du phosphore contenu dans les aliments pour poissons reste indisponible pour les plantes car il est fixé dans les excrétions solides qui sont ensuite éliminées par filtration mécanique. Yogev et coll. (2016) ont estimé que cette perte peut atteindre 85 %. Une option pour éviter cette perte massive de P par le biais de boues solides consiste à ajouter un compartiment de digestion au système aquaponique. Pendant la digestion aérobie ou anaérobie, le P est libéré dans le digestat et pourrait être réintroduit dans l'eau circulante (Goddek et al., 2016).
**Potassium (K) **
Delaide et al. (2017) ont constaté que la principale source de K dans leur système était la nourriture pour poissons. Les poissons peuvent utiliser jusqu'à 7 % du K contenu dans les aliments pour poissons (Rafiee et Saad, 2005). Cependant, le potassium n'est pas nécessaire pour les poissons, ce qui conduit à une faible composition en potassium des aliments pour poissons et à des niveaux encore plus faibles de potassium disponibles pour les plantes (Graber et Junge, 2009 ; Seawright et al., 1998 ; Suhl et al., 2016). Pour fournir du potassium, un tampon de pH KOH est souvent utilisé car le pH diminue souvent en aquaponie en raison de la nitrification (Graber et Junge 2009). Dans un système aquaponique planté de tomates, le potassium s'accumule principalement dans les fruits (Schmautz et al., 2016).
**Magnésium (Mg), calcium (Ca) et soufre (S) **
La principale source de Mg, Ca et S est l'eau du robinet qui facilite l'absorption par les plantes car les nutriments sont déjà disponibles (Delaide et al., 2017). Le calcium est toutefois présent dans des concentrations insuffisantes en aquaponie (Schmautz et al., 2015 ; Seawright et al., 1998) et est ajouté sous forme d'hydroxyde de calcium Ca (OH) sub2/sub (Timmons et Ebeling, 2013). Selon Rafiee et Saad (2005), les poissons peuvent utiliser en moyenne 26,8 % du calcium et 20,3 % du magnésium présent dans l'aliment. Le soufre est souvent à de faibles concentrations dans les systèmes aquaponiques (Graber et Junge, 2009 ; Seawright et al., 1998).
9.4.3 Cycles de micronutriments
Le fer (Fe), le manganèse (Mn) et le zinc (Zn) proviennent principalement de l'alimentation des poissons, tandis que le bore (B) et le cuivre (Cu) proviennent de l'eau du robinet (Delaide et al., 2017). En aquaponie, les micronutriments clés sont souvent présents, mais à des niveaux trop faibles (Delaide et al., 2017), et une supplémentation à partir de sources externes de nutriments est alors nécessaire (Chap. 8). Les carences en fer se produisent très souvent en aquaponie (Schmautz et al., 2015 ; Seawright et al., 1998 ; Fitzsimmons et Posadas ; 1997 cité par Licamele, 2009), principalement en raison de l'indisponibilité de la forme d'ion ferrique. Cette carence peut être résolue par l'utilisation de sidérophore bactérien (c.-à-d. composés organiques chélatants du fer) produits par des genres tels que Bacillus ou Pseudomonas (Bartelme et al. 2018) ou par une supplémentation en fer avec du fer chélaté chimique pour éviter les précipitations de fer.
9.4.4 Pertes d'éléments nutritifs
Réduire la perte d'éléments nutritifs est un défi constant pour les praticiens de l'aquaponie. La perte d'éléments nutritifs se produit de plusieurs façons, par exemple le dépeuplement des boues (37 % des matières fécales et 18 % des aliments non consommés) (Neto et Ostrensky, 2015), les pertes d'eau, la dénitrification, la volatilisation de l'ammoniac, etc. (Wongkiew et al., 2017). À titre d'exemple, Rafiee et Saad (2005) notent que 24% du fer, 86% du manganèse, 47% du zinc, 22% du cuivre, 16% du calcium, 89% du magnésium, 6% de l'azote, 6% du potassium et 18% du phosphore contenu dans les aliments pour poissons étaient contenus dans les boues. Les boues peuvent contenir jusqu'à 40 % des nutriments présents dans l'alimentation (Yogev et al., 2016).
La dénitrification peut entraîner une perte de 25 à 60 % de l'azote (Hu et al., 2015 ; Zou et al., 2016). La dénitrification est également liée aux conditions anoxiques (Madigan et Martinko 2007 ; van Lier et al. 2008) et aux faibles niveaux de carbone, et elle est responsable de la transformation du nitrate en nitrite, oxyde nitrique (NO), oxyde nitreux (NSub2/subo) et éventuellement en azote gazeux (NSub2/sub) avec des flux dans l'atmosphère (ibid. ). La dénitrification est réalisée par plusieurs bactéries hétérotrophes facultatives telles que Achromobacter, Aerobacter, Acinetobacter, Bacillus, Brevibacterium, Flavobacterium, Pseudomonas, Proteus et Micrococcus sp. (Gentile et coll. 2007 ; Michaud et coll. 2006 ; Wongkiew et coll. 2017). Certaines bactéries peuvent effectuer à la fois la nitrification et la dénitrification si les concentrations d'oxygène dissous sont inférieures à 0,3 mg/L (Fitzgerald et al., 2015 ; Wongkiew et al., 2017). La perte d'azote peut également se produire par oxydation anaérobie de l'ammonium (ANAMMOX), c'est-à-dire par oxydation de l'ammonium en gaz dinitrogène en présence de nitrite (Hu et al., 2011).
Une autre importante perte d'azote qui devrait être disponible pour les plantes est la consommation d'azote par les bactéries aérobies hétérotrophes présentes dans les systèmes aquaponiques. En effet, l'azote utilisé par ces bactéries est perdu par les bactéries nitrifiantes, ce qui empêche la nitrification (Blancheton et al., 2013). Ces bactéries sont particulièrement présentes lorsque le rapport C/N augmente, car elles sont plus compétitives et plus capables de coloniser le milieu que les bactéries nitrifiantes autotrophes (Blancheton et al., 2013 ; Wongkiew et al., 2017).
9.4.5 Dynamique des systèmes d'équilibre des éléments nutritifs
La concentration en éléments nutritifs des deux principaux sous-systèmes dans un système aquaponique, à savoir les bassins à poissons (aquaculture) et la solution hydroponique, doit être équilibrée pour chacun de leurs besoins. Dans les systèmes aquaponiques fermés, les nutriments sont transportés du poisson vers les plantes plus ou moins directement par des filtres (généralement un filtre à tambour ou un colon puis un biofiltre) pour la nitrification. Cependant, les besoins en nutriments des cultures et les nutriments fournis par le sous-système aquaponique ne sont pas équilibrés. Dans les systèmes multi-boucles et découplés (Chap. 8), il est plus facile de fournir des conditions optimales pour les sections de poissons et de plantes. Grâce à la modélisation des systèmes (Chap. 11), la taille optimale de la zone hydroponique pour les bassins à poissons, les biofiltres et autres équipements peut être calculée (Goddek et Körner 2019). Ceci est particulièrement important pour les systèmes découplés multi-boucles qui comprennent différents types d'équipements. Par exemple, l'UASB (couverture de boues anaérobies en amont) (Goddek et al. 2018) ou les unités de dessalement (Goddek et Keesman 2018) doivent être soigneusement dimensionnées, comme indiqué dans Chap. 8. L'inadéquation fondamentale entre les nutriments fournis par l'environnement des poissons et les besoins des cultures doit être corrigée et équilibrée. Aux fins de la concentration accrue des nutriments, Goddek et Keesman (2018) ont décrit une unité de dessalement appropriée (Chap. 8). Cependant, cette approche ne résout qu'une partie du problème, car le système parfaitement équilibré est guidé par un taux d'évaporation non dynamique que l'on ne peut atteindre que dans des chambres fermées et des installations parfaitement fonctionnelles. La réalité, cependant, est que l'évapotranspiration de la culture (ETsubC/sub) dans les systèmes aquaponiques à base de serre dépend fortement de multiples facteurs tels que le climat physique et les variables biologiques. ETsubc/sub est calculé par surface de la surface du sol couverte par la culture et est calculé pour différents niveaux dans la canopée (z) en intégrant les flux nets irradiatifs, la résistance de la couche limite, la résistance aux stomates et le déficit de pression de vapeur dans la canopée (Körner et al., 2007) à l'aide du Penman— L'équation de Monteith. Néanmoins, cette équation ne calcule que le flux d'eau à travers la culture. L'absorption des éléments nutritifs peut être calculée simplement en supposant que tous les nutriments dilués dans l'eau sont absorbés par la culture. En réalité, cependant, l'absorption des nutriments est une question très compliquée. Différents nutriments ont des états différents, changeant avec des paramètres tels que le pH. Pendant ce temps, la disponibilité des nutriments pour les plantes dépend fortement du pH et des relations entre les nutriments (p. ex. disponibilité K/Ca). De plus, le microbiome dans la zone racinaire joue un rôle important (Orozco-Mosque et al. 2018) qui n'est pas encore mis en œuvre dans les modèles, bien que certains modèles établissent une distinction entre les voies phloème et xylème. Ainsi, la grande quantité de nutriments n'est pas modélisée en détail pour l'équilibrage des nutriments aquaponiques et le dimensionnement des systèmes. La façon la plus simple d'estimer l'absorption des éléments nutritifs est l'hypothèse que les éléments nutritifs sont absorbés ou absorbés sous forme de dissous dans l'eau d'irrigation et qu'ils s'appliquent à l'approche de calcul de l'ETsubC/sous expliquée ci-dessus et en supposant qu'il n'existe aucune résistance chimique, biologique ou physique spécifique à un élément. Par conséquent, pour maintenir l'équilibre, tous les nutriments absorbés par la culture tels qu'ils sont contenus dans la solution nutritive doivent être ajoutés au système hydroponique.
9.5 Conclusions
Original publication · Publié pour la première fois sur FarmHub Learn · Aquaponics Food Production Systems
9.5.1 Inconvénients actuels du cycle des éléments nutritifs en aquaponie
En hydroponique, la solution nutritive est déterminée avec précision et l'apport nutritif dans le système est bien compris et contrôlé. Il est donc relativement facile d'adapter la solution nutritive pour chaque espèce végétale et pour chaque stade de croissance. En aquaponie, selon la définition (Palm et al. 2018), les nutriments doivent provenir d'au moins 50 % des aliments non consommés, des matières fécales solides et des excrétions solubles du poisson, ce qui rend plus difficile la surveillance des concentrations d'éléments nutritifs disponibles pour l'absorption des plantes. Un deuxième inconvénient est la perte de nutriments par plusieurs voies comme l'élimination des boues, le renouvellement de l'eau ou la dénitrification. L'élimination des boues entraîne une perte de nutriments car plusieurs éléments nutritifs clés comme le phosphore précipitent souvent et sont ensuite piégés dans les boues solides évacuées. Le renouvellement de l'eau, qui doit avoir lieu même dans de petites proportions, ajoute également à la perte de nutriments du circuit aquaponique. Enfin, la dénitrification est due à la présence de bactéries dénitrifiantes et à des conditions favorables à leurs métabolismes.
9.5.2 Comment améliorer le cycle des nutriments ?
En conclusion, le cycle des nutriments doit encore être amélioré afin d'optimiser la croissance des plantes en aquaponie. Plusieurs options sont donc actuellement étudiées dans Chap. 8. Afin d'éviter de perdre les nutriments capturés dans les boues, des unités de reminéralisation des boues ont été développées (Chap. 10). L'objectif de ces unités est d'extraire les nutriments capturés sous forme solide dans les boues et de les réinjecter dans le système sous une forme que les plantes peuvent absorber (Delaide 2017). Une autre technique pour réduire la perte d'éléments nutritifs consisterait à favoriser l'absorption des plantes par la concentration de la solution aquaponique (c.-à-d. l'élimination d'une fraction de l'eau pour conserver la même quantité de nutriments, mais dans un volume d'eau moindre). Une telle concentration pourrait être obtenue par l'ajout d'une unité de dessalement dans le cadre du système aquaponique (Goddek et Körner 2019 ; Goddek et Keesman 2018). Enfin, l'utilisation de systèmes découplés/multi-boucles permet des conditions de vie et de croissance optimales pour tous les poissons, plantes et micro-organismes. Bien que certaines recherches aient été entreprises dans ce domaine, d'autres recherches devraient être menées pour mieux comprendre le cycle des nutriments en aquaponie. En effet, plus d'informations sur les cycles exacts de chaque macronutriments (quelle forme, comment il peut être transformé ou non par des micro-organismes, comment il est absorbé par les plantes en aquaponie) ou sur l'influence des espèces de plantes et de poissons et des paramètres de l'eau sur les cycles nutritifs pourraient grandement aider à comprendre les systèmes aquaponiques.