Source material
Capítulo 9 Ciclismo de nutrientes em sistemas aquapônicos
Mathilde Eck, Oliver Körner e M. Haïssam Jijakli
Resumo Na aquapônica, os nutrientes provêm principalmente da alimentação dos peixes e das entradas de água no sistema. Uma parte substancial dos alimentos para animais é ingerida pelos peixes e utilizada para o crescimento e o metabolismo ou excretada como fezes solúveis e sólidas, enquanto o resto dos alimentos não consumidos decai nos tanques. Embora as excreções solúveis estejam prontamente disponíveis para as plantas, as fezes sólidas precisam ser mineralizadas por microrganismos para que o seu teor de nutrientes esteja disponível para a absorção das plantas. Assim, é mais desafiador controlar as concentrações de nutrientes disponíveis em aquapônica do que em hidroponia. Além disso, muitos fatores, entre outros, o pH, a temperatura e a intensidade da luz, influenciam a disponibilidade de nutrientes e a absorção das plantas. Até hoje, a maioria dos estudos tem focado nos ciclos de nitrogênio e fósforo. No entanto, para garantir um bom rendimento das culturas, é necessário fornecer às plantas níveis suficientes de todos os nutrientes essenciais. Portanto, é essencial compreender e controlar melhor os ciclos de nutrientes em aquaponia.
Palavras Aquaponics · Ciclismo de nutrientes · Solubilização · Processos microbiológicos
- 9.1 Introdução
- 9.2 Origem dos nutrientes
- 9.3 Processos microbiológicos
- 9.4 Balanço de Massa: O que acontece aos nutrientes quando entram no Sistema Aquapônico?
- 9.5 Conclusões
- Referências
—
[M. Eck](mailto: mathilde.eck@uliege.be) · [M. H. Jijakli](mailto: mh.jijakli@uliege.be)
Laboratório de Patologia Plantária Integrada e Urbana, Université de Liège, Agro-Bio Tech, Gembloux, Bélgica
[O. Körner](mailto: koerner@igzev.de)
Leibniz-Instituto de Culturas Vegetais e Ornamentais (IGZ), Grossbeeren, Alemanha
© O (s) Autor (es) 2019 231
S. Goddek et al. (eds.), Sistemas de Produção de Alimentos Aquaponics, https://doi.org/10.1007/978-3-030-15943-6_9
—
Referências
Bartelme RP, Oyserman BO, Blom JE, Sepulveda-Villet JO, Newton RJ (2018) Descascar o solo: crescimento vegetal promovendo oportunidades de microbiologia na aquapônica. Microbiol frontal 9 (8). https://doi.org/10.3389/fmicb.2018.00008
Bittsanszky A, Uzinger N, Gyulai G, Mathis A, Junge R, Villarroel M, Kotzen B, Komives T (2016) Fornecimento de nutrientes de plantas em sistemas aquapônicos. Ecociclos 2 (1720). https://doi.org/10.19040/ ecocycles.v2i2.57
Blancheton JP, Attramadal KJK, Michaud L, d'Orbcastel ER, Vadstein O (2013) Inspecção da população bacteriana em sistemas de aquicultura e sua implicação. Aquac Porg 53:30 —39
Boyd CE (2015) Visão geral dos alimentos para aquicultura: impactos globais do uso de ingredientes. Ração Pract Aquac 3—25. https://doi.org/10.1016/B978-0-08-100506-4.00001-5
Bugbee B (2004) Manejo de nutrientes em cultura hidropônica recirculante. Acta Hortic 648:99 —112. https://doi.org/10.17660/ActaHortic.2004.648.12
Buzby KM, Lin LS (2014) Escalagem de sistemas aquapônicos: equilibrar a absorção de plantas com a produção de peixes. Aquac Eng 63:39 —44. https://doi.org/10.1016/j.aquaeng.2014.09.002
Carsiotis M, Khanna S (1989) Engenharia genética da nitrificação microbiana. Agência de Proteção Ambiental dos EUA, Laboratório de Engenharia de Redução de Risco, Cincinnati
Cerozi BS, Fitzsimmons K (2017) Modelagem da dinâmica de fósforo e equilíbrio de massa em um sistema aquapônico. Agric Syst 153:94 —100. https://doi.org/10.1016/j.agsy.2017.01.020
Daims H, Lebedeva EV, Pjevac P, Han P, Herbold C, Albertsen M, Jehmlich N, Palatinszky M, Vierheilig J, Bulaev A, Kirkegaard RH, Von Bergen M, Rattei T, Bendinger B, Nielsen H, Wagner M (2015) Nitrificação completa por _Nitrificação Bactérias. Natureza 528:504. https://doi.org/ 10.1038/nature16461
Davidson J, Good C, Barrows FT, Welsh C, Kenney PB, Summerfelt ST (2013) Comparando os efeitos da alimentação de uma dieta à base de farinha de grãos ou peixes sobre a qualidade da água, produção de resíduos e desempenho da truta arco-íris Oncorhynchus mykiss em sistemas aquícolas de baixa troca. Aquac Eng 52:45 —57. https://doi.org/10.1016/J.AQUAENG.2012.08.001
Delaide B (2017) Estudo sobre os elementos minerais disponíveis na aquapônica, seu impacto na produtividade da alface e a potencial melhoria de sua disponibilidade. Tese de Doutoramento. Gembloux AgroBio Tech, Universidade de Liège
Delaide B, Goddek S, Gott J, Soyeurt H, Haissam Jijakli M, Lalman J, Junge R (2016) Alface (Lactuca sativa L. var. Sucrina) desempenho de crescimento em solução aquapônica complementada supera a hidroponia. Água 8. https://doi.org/10.3390/w8100467
Delaide B, Delhaye G, Dermience M, Gott J, Soyeurt H, Jijakli MH (2017) Desempenho de produção de plantas e peixes, balanços de massa de nutrientes, uso de energia e água da caixa PAFF, um sistema aquapônico de pequena escala. Aquac Eng 78:130 —139. https://doi.org/10.1016/j.aquaeng.2017. 06.002
Fitzgerald CM, Camejo P, Oshlag JZ, Noguera DR (2015) comunidades microbianas oxidantes de amônia em reatores com nitrificação eficiente a oxigênio de baixa dissolução. Água Res 70:38 —51. https://doi.org/10.1016/J.WATRES.2014.11.041
Geay F, Ferraresso S, Zambonino-Infante JL, Bargelloni L, Quentel C, Vandeputte M, Kaushik S, Cahu CL, Mazurais D (2011) Efeitos da substituição total da dieta à base de peixe por dieta à base de plantas sobre o transcriptoma hepático de duas famílias de meios-sicos europeus (Dicentrarchus labrax) com crescimento taxas com a dieta à base de plantas. BMC Genômica 12:522. https://doi.org/10.1186/1471-2164-12-522
Gentile ME, Lynn Nyman J, Criddle CS (2007) Correlação de padrões de instabilidade de desnitrificação em comunidades de biorreatores replicados com mudanças na abundância relativa e nos padrões de desnitrificação de populações específicas. ISME J 1:714 —728. https://doi.org/10.1038/ismej.2007.87
Goddek S, Keesman KJ (2018) A necessidade da tecnologia de dessalinização para projetar e dimensionar sistemas aquapônicos multi-loop. Dessalinização 428:76 —85. https://doi.org/10.1016/J.DESAL. 2017.11.024
Goddek S, Körner O (2019) Um modelo de simulação totalmente integrado de aquapônica multi-loop: um estudo de caso para dimensionamento de sistemas em diferentes ambientes. Agric Syst 171:143
Goddek S, Delaide B, Mankasingh U, Ragnarsdottir KV, Jijakli H, Thorarinsdottir R (2015) Desafios da aquapônica sustentável e comercial. Sustentabilidade 7:4199 —4224. https://doi.org/10.3390/su7044199
Goddek S, Schmautz Z, Scott B, Delaide B, Keesman K, Wuertz S, Junge R (2016) Efeito do sobrenadante de lodo de peixe anaeróbio e aeróbio na alface hidropônica. Agronomia 6:37. https://doi.org/10.3390/agronomy6020037
Goddek S, Delaide BPL, Joyce A, Wuertz S, Jijakli MH, Gross A, Eing EH, Bläser I, Reuter M, Keizer LCP et al (2018) Mineralização de nutrientes e redução de matéria orgânica de lodo à base de RAS em reatores sequenciais UASB-EGSB. Aquac Porg 83:10 —19
Graber A, Junge R (2009) Sistemas aquapônicos: reciclagem de nutrientes de águas residuais de peixes por produção vegetal. Dessalinização 246:147 —156. https://doi.org/10.1016/j.desal.2008.03.048
Guangzhi G (2001) Balanço de massa e qualidade da água em tanques de aquicultura. Universidade das Nações Unidas, Programa de Formação das Pescas, Reyjavik
Hu B, Shen L, Xu X, Zheng P (2011) Oxidação anaeróbica de amônio (anammox) em diferentes ecossistemas naturais. Biochem Soc Trans 39:1811 —1816. https://doi.org/10.1042/BST20110711
Hu Z, Lee JW, Chandran K, Kim S, Brotto AC, Khanal SK (2015) Efeito de espécies vegetais na recuperação de nitrogênio em aquapônica. Biorecursos 188:92 -98. https://doi.org/10.1016/j.biortech. 2015.01.013
Hua K, Bureau DP (2012) Explorando a possibilidade de quantificar os efeitos de ingredientes proteicos vegetais em alimentos para peixes usando meta-análise e abordagens baseadas em simulação de modelos nutricionais. Aquicultura 356— 357:284 —301. https://doi.org/10.1016/J.AQUACULTURE. 2012.05.003
Jorquera M, Martínez O, Maruyama F, Marschner P, de la Luz Mora M (2008) Aplicações biotecnológicas atuais e futuras de fitases bacterianas e bactérias produtoras de fitases. Micróbios Environ 23:182 —191. https://doi.org/10.1264/jsme2.23.182
Körner O, Aaslyng JM, Andreassen AU, Holst N (2007) Modelação de microclima para controle dinâmico do clima de estufa. Hortscience 42:272 —279
Körner O, Gutzmann E, Kledal PR (2017) Modelo dinâmico que simula os efeitos simbióticos em sistemas aquapônicos. Acta Hortic 1170:309 —316
Kuhn DD, Drahos DD, Marsh L, Flick GJ (2010) Avaliação do produto de bactérias nitrificantes para melhorar a eficácia da nitrificação em sistemas de aquicultura recirculantes. Aquac Eng 43:78 —82. https://doi.org/10.1016/j.Aquaeng.2010.07.001
Le Corre KS, Valsami-Jones E, Hobbs P, Parsons SA (2005) Impacto do cálcio no tamanho, forma e pureza dos cristais de estruvite. J Crist Crescimento 283:514 —522. https://doi.org/10.1016/J.JCRYSGRO. 2005.06.012
Lennard WA, Leonard BV (2006) Comparação de três diferentes subsistemas hidropônicos (camada de cascalho, técnica de filme flutuante e nutriente) em um sistema de teste Aquaponic. Aquac Int 14:539 —550. https://doi.org/10.1007/s10499-006-9053-2
Letelier-Gordo CO, Dalsgaard J, Suhr KI, Ekmann KS, Pedersen PB (2015) Reduzir a relação proteína:energia dietética (P:E) altera a solubilização e fermentação das fezes da truta arco-íris (Oncorhynchus mykiss). Aquac Porg 66:22 —29
Licamele J (2009) Produção de biomassa e dinâmica de nutrientes em um sistema aquaponico. Tese de Doutoramento. Departamento de Agricultura e engenharia de biossistemas, Universidade do Arizona
Losordo TM, Masser MP, Rakocy J (1998) Recirculando sistemas de produção de tanques de aquicultura: uma visão geral das considerações críticas. SRAC N.o 451, pp 18—31
Madigan MT, Martinko JM (2007) Biologie des micro-organismes, 11ª edn. Pearson Educação França, Paris
Meriac A, Eding EH, Schrama J, Kamstra A, Verreth JAJ (2014) A composição de carboidratos dietéticos pode alterar a produção de resíduos e a carga de biofiltro em sistemas de aquicultura de recirculação. Aquicultura 420— 421:254 —261. https://doi.org/10.1016/j.aquaculture.2013.11.018
Michaud L, Blancheton JP, Bruni V, Piedrahita R (2006) Efeito do carbono orgânico particulado sobre populações bacterianas heterotróficas e eficiência de nitrificação em filtros biológicos. Aquac Eng 34:224 —233. https://doi.org/10.1016/j.aquaeng.2005.07.005
Munguia-Fragozo P, Alatorre-Jacome O, Rico-Garcia E, Torres-Pacheco I, Cruz-Hernandez A, Ocampo-Velazquez RV, Garcia-Trejo JF, Guevara-Gonzalez RG (2015) Perspectiva para sistemas aquapônicos: tecnologias “ômicas” para análise microbiana de comunidade. Reses Int Biomed 2015:1. https://doi.org/10.1155/2015/480386
Neto MR, Ostrensky A (2015) Estimativa da carga de nutrientes nos resíduos do Nilo Tilapia Oreochromis niloticus (L.) criados em gaiolas em condições climáticas tropicais. Aquac Resolução 46:1309 —1322. https://doi.org/10.1111/are.12280
Orozco-Mesquita MC, Rocha-Granados MC, Glick BR, Santoyo G (2018) Engenharia de microbiomas para melhorar o biocontrole e mecanismo de promoção do crescimento de plantas. Microbiol Res. em Imprensa
Palm HW, Knaus U, Appelbaum S, Goddek S, Strauch SM, Vermeulen T, Hais-ssam Jijakli M, Kotzen B (2018) Rumo à aquaponia comercial: uma revisão de sistemas, desenhos, escalas e nomenclatura. Aquac Int 26:813 —842
Prabhu AS, Fageria NK, Berni RF, Rodrigues FA (2007) Fósforo e doença vegetal. Em: Datnoff LE, Elmer WH, Huber DM (eds) Nutrição mineral e doenças das plantas. Sociedade Fitopatológica Americana, São Paulo, pp 45—55
Rafiee G, Saad CR (2005) Ciclo de nutrientes e produção de lodo durante diferentes estágios de crescimento vermelho Tilapia (Oreochromis sp.) em um sistema aquícola recirculante. Aquicultura 244:109 —118. https://doi.org/10.1016/J.AQUACULTURE.2004.10.029
Rakocy JE, Shultz RC, Bailey DS, Thoman ES (2004) Produção aquaponica de Tilapia e manjericão: comparação de um sistema de cultivo em lote e escalonado. Acta Hortic 648:63 —69. https://doi.org/10. 17660/Actahortic.2004.648.8
Rakocy JE, Masser MP, Losordo TM (2006) Recirculando sistemas de produção de tanques de aquicultura: aquaponica- integração de peixes e vegetais. SRAC Publ South Reg Aquac Cent 16. https://doi.org/454
Randall D, Tsui TK (2002) Toxicidade por amoníaco em peixes Mar Poluir Boi 45:17 -23. https://doi.org/10. 1016/S0025-326X (02) 00227-8
Resh HM (2013) Produção de alimentos hidropônicos: um guia definitivo para o jardineiro doméstico avançado e o produtor hidropônico comercial, 7º edn. Imprensa CRC, Boca Raton
Roosta HR, Hamidpour M (2011) Efeitos da aplicação foliar de alguns macro e micronutrientes em plantas de tomateiro em sistemas aquapônicos e hidropônicos. Sci Hortic 129:396 —402. https://doi.org/ 10.1016/J.SCIENTA.2011.04.006
Roosta HR, Hamidpour M (2013) Teor mineral de plantas de tomateiro em sistemas aquapônicos e hidropônicos: efeito da aplicação foliar de alguns macro e micronutrientes. J Planta Nutr 36:2070 —2083. https://doi.org/10.1080/01904167.2013.821707
Ru D, Liu J, Hu Z, Zou Y, Jiang L, Cheng X, Lv Z (2017) Melhoria do desempenho aquapônico através da adição de micro e macro-nutrientes. Environ Sci Poluir Res 24:16328 —16335. https://doi.org/10.1007/s11356-017-9273-1
Rurangwa E, Verdegem MCJ (2013) Microorganismos em sistemas de aquicultura recirculantes e seu manejo. Rev. Aquac 7:117 —130. https://doi.org/10.1111/raq.12057
Schmautz Z, Graber A, Mathis A, Griessler Bulc T, Junge R (2015) Produção de tomate em sistema aquaponico: balanço de massa e reciclagem de nutrientes (resumo)
Schmautz Z, Loeu F, Liebisch F, Graber A, Mathis A, Bulc TG, Junge R (2016) Produtividade e qualidade do tomate em aquaponia: comparação de três métodos hidropônicos. Água 8:1 —22. https://doi.org/10.3390/w8110533
Schmautz Z, Graber A, Jaenicke S, Goesmann A, Junge R, Smits THM (2017) Diversidade microbiana em diferentes compartimentos de um sistema aquapônico. Arch Microbiol 199:613. https://doi.org/10. 1007/s00203-016-1334-1
Schneider O, Sereti V, Eding EH, Verreth JAJ (2004) Análise dos fluxos de nutrientes em sistemas integrados de aquicultura intensiva. Aquac Eng 32:379 —401. https://doi.org/10.1016/j.aquaeng.2004. 09.001
Seawright DE, Stickney RR, Walker RB (1998) Dinâmica de nutrientes em aquacultura integrada — sistemas hidropônicos. Aquicultura 160:215 —237
Shoda M (2014) Nitrificação heterotrófica e desnitrificação aeróbia por Alcaligenes faecalis. J Biosci Bioeng 117:737 —741. https://doi.org/10.5772/68052
Somerville C, Stankus A, Lovatelli A (2014) Produção aquapônica de alimentos em pequena escala. Piscicultura integrada e vegetal. Organização das Nações Unidas para a Alimentação e a Agricultura, Roma
Sonneveld C, Voogt W (2009) Nutrição vegetal de culturas em estufa. Springer, Dordrecht/ Heidelberg/London/Nova Iorque
Sugita H, Nakamura H, Shimada T (2005) Comunidades microbianas associadas a materiais filtrantes em sistemas aquícolas recirculantes de peixes de água doce. Aquicultura 243:403. https://doi.org/10.1016/j.aquaculture.2004.09.028
Suhl J, Dannehl D, Kloas W, Baganz D, Jobs S, Scheibe G, Schmidt U (2016) Aquapônica avançada: avaliação da produção intensiva de tomate em aquapônica versus hidroponia convencional. Ágil Água Manag 178:335 —344. https://doi.org/10.1016/j.agwat.2016.10.013
Tacon AGJ, Metian M (2008) Visão geral global sobre o uso de farinha de peixe e óleo de peixe em aquafeeds industrialmente compostos: tendências e perspectivas futuras. Aquicultura 285:146-158. https://doi.org/10.1016/j.aquaculture.2008.08.015
Timmons MB, Ebeling JM (2013) Recirculando aquicultura. Ithaca Publishing, Nova Iorque
Turcios AE, Papenbrock J (2014) Tratamento sustentável de efluentes aquícolas — o que podemos aprender com o passado para o futuro? Sustentabilidade 6:836 —856. https://doi.org/10.3390/su6020836 van Lier JB, Mahmoud N, Zeeman G (2008) In: Henze M, van Loosdrecht MCM, Ekama GA, Brdjanovic D (eds) Tratamento de águas residuais anaeróbicas, in: tratamento biológico de águas residuais: princípios, modelização e design. IWA Publishing, Londres. ISBN: 9781843391883
van Rijn J (2013) Tratamento de resíduos em sistemas aquícolas de recirculação. Aquac Eng 53:49 —56. https://doi.org/10.1016/J.AQUAENG.2012.11.010
Wongkiew S, Hu Z, Chandran K, Lee JW, Khanal SK (2017) Transformações de nitrogênio em sistemas aquapônicos: uma revisão. Aquac Eng 76:9 —19. https://doi.org/10.1016/j.aquaeng.2017.01. 004
Xu G, Fan X, Miller AJ (2012) Assimilação de nitrogênio vegetal e eficiência de uso. Annu Rev Planta Biol 63:153 —182. https://doi.org/10.1146/annurev-arplant-042811-105532
Yildiz HY, Robaina L, Pirhonen J, Mente E, Domínguez D, Parisi G (2017) Bem-estar dos peixes em sistemas aquapônicos: sua relação com a qualidade da água com ênfase na alimentação e nas fezes — uma revisão. Água 9. https://doi.org/10.3390/w9010013
Yogev U, Barnes A, Gross A (2016) Análise de nutrientes e balanço energético para um modelo conceitual de três loops off grid, aquaponics. Água 8. https://doi.org/10.3390/w8120589
Zekki H, Gauthier L, Gosselin A (1996) Crescimento, produtividade e composição mineral de tomates com efeito de estufa cultivados hidroponicamente, com ou sem reciclagem de soluções de nutrientes. J Am Soc Hortic Sci 121:1082 —1088
Zou Y, Hu Z, Zhang J, Xie H, Guimbaud C, Fang Y (2016) Efeitos do pH nas transformações de nitrogênio em aquapônica baseada em mídia. Bioresour Technol 210:81 —87. https://doi.org/10.1016/ J.BIORTECH.2015.12.079
Acesso Aberto Este capítulo está licenciado sob os termos da Licença Internacional Creative Commons Attribution 4.0 (http://creativecommons.org/licenses/by/4.0/), que permite o uso, compartilhamento, adaptação, distribuição e reprodução em qualquer meio ou formato, como desde que você dê crédito apropriado ao (s) autor (es) original (s) e à fonte, forneça um link para a licença Creative Commons e indique se foram feitas alterações.
As imagens ou outros materiais de terceiros neste capítulo estão incluídos na licença Creative Commons do capítulo, salvo indicação em contrário em uma linha de crédito para o material. Se o material não estiver incluído na licença Creative Commons do capítulo e seu uso pretendido não for permitido por regulamentos legais ou exceder o uso permitido, você precisará obter permissão diretamente do detentor dos direitos autorais.
Aquaponics Food Production Systems contributors.
Ver a edição original · Creative Commons Attribution 4.0
Esta edição da biblioteca foi reformatada e consolidada a partir da fonte original.
9.1 Introdução
Original publication · Publicado pela primeira vez no FarmHub Learn · Aquaponics Food Production Systems
Os sistemas Aquaponic oferecem várias vantagens quando se trata de produzir alimentos de forma inovadora e sustentável. Além dos efeitos sinérgicos do aumento da concentração aérea de COSub2/sub para culturas em estufa e da diminuição do consumo total de energia térmica ao cultivar peixes e culturas no mesmo espaço (Körner et al. 2017), a aquapônica tem duas vantagens principais para a ciclagem de nutrientes. Em primeiro lugar, a combinação de um sistema de aquicultura recirculante com a produção hidropônica evita a descarga de efluentes aquícolas enriquecidos em azoto dissolvido e fósforo em águas subterrâneas já poluídas (Buzby e Lin 2014; Guangzhi 2001; van Rijn 2013) e, em segundo lugar, permite a fertilização de as culturas sem solo com o que pode ser considerado uma solução orgânica (Goddek et al. 2015; Schneider et al. 2004; Yogev et al. 2016) em vez de usar fertilizantes de origem mineral feitos a partir de esgotamento dos recursos naturais (Schmautz et al. 2016; Chap. 2. Além disso, a aquapônica produz crescimento vegetal comparável em comparação com a hidropônica convencional, apesar das concentrações mais baixas de nutrientes na água da aquicultura (Graber e Junge 2009; Bittsanszky et al. 2016; Delaide et al. 2016), e a produção pode ser ainda melhor do que no solo (Rakocy et al. 2004). Considera-se que o aumento das concentrações de COSub2/sub no ambiente aéreo e as alterações nos biomas da zona radicular são as principais razões para isso. Além disso, o teor mineral e a qualidade nutricional dos tomates cultivados aquaponicamente têm sido reportados como equivalentes ou superiores ao teor mineral dos cultivados convencionalmente (Schmautz et al. 2016).
Apesar de possuir dois ativos atrativos (ou seja, a reciclagem de efluentes de aquicultura e a utilização de fertilizantes orgânicos), o uso de efluentes de aquicultura aumenta o desafio de monitorar os nutrientes dentro da solução. Com efeito, é mais difícil controlar a composição de uma solução onde os nutrientes se originam de uma degradação biológica da matéria orgânica do que acompanhar a evolução da concentração dos nutrientes numa solução hidropônica doseada com precisão à base de compostos minerais (Bittsanszky et al. 2016; Timmons e Ebeling 2013). Além disso, as necessidades nutricionais de uma planta variam durante o período de crescimento de acordo com os estágios fisiológicos, e é necessário atender a essas necessidades para maximizar os rendimentos (Bugbee 2004; Zekki et al. 1996; Cap. 4).
Para reciclar efluentes de aquicultura para produzir biomassa vegetal, é necessário otimizar as taxas de reciclagem de fósforo e nitrogênio (Goddek et al. 2016; Graber e Junge 2009; Chap. 1). Vários fatores podem influenciar isso, como a espécie de peixe, a densidade dos peixes, a temperatura da água, o tipo de plantas e a comunidade microbiana (ibid.). Portanto, é de primordial importância compreender o funcionamento dos ciclos de nutrientes em aquaponics (Seawright et al. 1998). Este capítulo tem como objetivo explicar as origens dos nutrientes em um sistema aquapônico, descrevendo os ciclos de nutrientes e analisando as causas das perdas de nutrientes.
9.2 Origem dos Nutrientes
Original publication · Publicado pela primeira vez no FarmHub Learn · Aquaponics Food Production Systems
As principais fontes de nutrientes num sistema aquapónico são os alimentos para peixes e a água adicionada (contendo Mg, Ca, S) (ver secção 9.3.2.) no sistema (Delaide et al. 2017; Schmautz et al. 2016) conforme elaborado em Cap. 13. No que diz respeito aos alimentos para peixes, existem dois tipos principais: alimentos à base de peixe e alimentos à base de plantas. A farinha de peixe é o tipo clássico de ração usado na aquicultura, onde lipídios e proteínas dependem de farinha de peixe e óleo de peixe (Geay et al. 2011). No entanto, há algum tempo, as preocupações com a sustentabilidade desses alimentos têm sido levantadas e a atenção para as dietas à base de plantas (Boyd 2015; Davidson et al. 2013; Hua and Bureau 2012; Tacon e Metian 2008). Uma meta-análise realizada por Hua and Bureau (2012) revelou que o uso de proteínas vegetais na ração de peixes pode influenciar o crescimento de peixes se incorporados em proporções elevadas. De facto, as proteínas vegetais podem ter um impacto na digestibilidade e nos níveis de factores anti-nutricionais da ração. Em especial, o fósforo proveniente de plantas e, portanto, sob a forma de fitatos não beneficia, por exemplo, o salmão, a truta e várias outras espécies de peixes (Timmons e Ebeling 2013). Não é surpreendente que esta observação seja altamente dependente da espécie de peixe e da qualidade dos ingredientes (Hua e Bureau 2012). No entanto, pouco se sabe sobre o impacto da composição variada da ração de peixes na produção de culturas (Yildiz et al. 2017).
A ração clássica para peixes é composta por 6—8 macro ingredientes e contém 6—8% de nitrogênio orgânico, 1,2% de fósforo orgânico e 40—45% de carbono orgânico (Timmons e Ebeling 2013) com cerca de 25% de proteína para peixes herbívoros ou onívoros e cerca de 55% de proteína para peixes carnívoros (Boyd 2015). Os lipídios também podem ser baseados em peixes ou plantas (Boyd 2015).
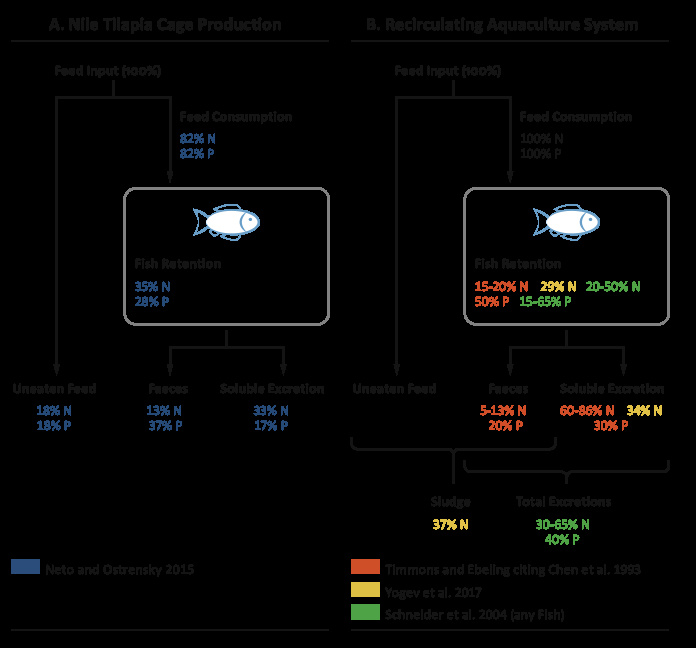
Fig. 9.1 Fluxo ambiental de azoto e fósforo em% para (a) produção de gaiolas do Nilo Tilapia (após Neto e Ostrensky 2015) e (b) produção de RAS (a partir de diversas fontes)
Uma vez que a ração para peixes é adicionada ao sistema, uma parte substancial dela é consumida pelos peixes e utilizada para o crescimento e metabolismo ou excretada como fezes solúveis e sólidas, enquanto o resto da ração dada decai nos tanques (Goddek et al. 2015; Schneider et al. 2004) (Fig. 9.1). Neste caso, os restos de alimentos e produtos metabólicos são parcialmente dissolvidos na água aquapônica, permitindo assim que as plantas absorvam nutrientes diretamente da solução aquapônica (Schmautz et al. 2016).
Na maioria dos sistemas de cultivo (Chaps. 7 e 8, podem ser adicionados nutrientes para complementar a solução aquapônica e garantir uma melhor correspondência com as necessidades das plantas (Goddek et al. 2015). De fato, mesmo quando o sistema é acoplado, é possível adicionar ferro ou potássio (que muitas vezes faltam) sem prejudicar o peixe (Schmautz et al. 2016).
9.2.1 Alimentos para peixes com sobras e fezes de peixe
Idealmente, todos os alimentos fornecidos devem ser consumidos pelos peixes (Fig. 9.1). No entanto, uma pequena parte (menos de 5% (Yogev et al. 2016)) é frequentemente deixada para se decompor no sistema e contribui para a carga nutritiva da água (Losordo et al. 1998; Roosta e Hamidpour 2013; Schmautz et al. 2016), consumindo oxigênio dissolvido e liberando dióxido de carbono e amônia (Losordo et al. 1998) , entre outras coisas. A composição das sobras de alimentos para peixes depende da composição da ração.
Logicamente, a composição das fezes de peixe depende da dieta do peixe, que também tem impacto na qualidade da água (Buzby e Lin 2014; Goddek et al. 2015). No entanto, a retenção de nutrientes na biomassa dos peixes é altamente dependente das espécies de peixes, dos níveis de alimentação, da composição da ração, do tamanho dos peixes e da temperatura do sistema (Schneider et al. 2004). Em temperaturas mais elevadas, por exemplo, o metabolismo dos peixes é acelerado e, assim, resulta em mais nutrientes contidos na fração sólida das fezes (Turcios e Papenbrock 2014). A proporção de nutrientes excretados também depende da qualidade e digestibilidade da dieta (Buzby e Lin 2014). A digestibilidade dos alimentos para peixes, o tamanho das fezes e o rácio de sedimentação devem ser cuidadosamente considerados para garantir um bom equilíbrio no sistema e maximizar o rendimento das culturas (Yildiz et al. 2017). Com efeito, embora seja uma prioridade que os alimentos para peixes sejam cuidadosamente escolhidos para atender às necessidades dos peixes, os componentes dos alimentos para animais também podem ser selecionados de acordo com as necessidades da planta quando não faz diferença para os peixes (Goddek et al. 2015; Licamele 2009; Seawright et al. 1998).
9.3 Processos microbiológicos
Original publication · Publicado pela primeira vez no FarmHub Learn · Aquaponics Food Production Systems
9.3.1 Solubilização
A solubilização consiste na quebra das moléculas orgânicas complexas que compõem os resíduos de peixes e alimentam os restos em nutrientes sob a forma de minerais iónicos que as plantas podem absorver (Goddek et al. 2015; Somerville et al. 2014). Tanto na aquicultura (Sugita et al. 2005; Turcios e Papenbrock 2014) como na aquapônica, a solubilização é conduzida principalmente por bactérias heterotróficas (van Rijn 2013; Cap. 6) que ainda não foram totalmente identificadas (Goddek et al. 2015). Alguns estudos começaram a decifrar a complexidade dessas comunidades de bactérias (Schmautz et al. 2017). Na aquicultura atual, as bactérias mais comumente observadas são Rhizobium sp., Flavobacterium sp., Sphingobacterium sp., Comamonas sp., Acinetobacter sp., Aeromonas sp. e Pseudomonas sp. (Munguia-Fragozo et al. 2015; Sugita et al. 2005). Um exemplo do papel importante das bactérias na aquapônica poderia ser a transformação de fitatos insolúveis em fósforo (P) disponibilizados para absorção vegetal através da produção de fitases particularmente presentes em γ-proteobacteria (Jorquera et al. 2008). (Mais pesquisas precisam ser feitas nesta área). Outros nutrientes além de P também podem ser presos como sólidos e evacuados do sistema com o lodo. Assim, estão sendo feitos esforços para remineralizar este lodo com reatores UASB-EGSB, a fim de reinjetar nutrientes no sistema aquapônico (Delaide 2017; Goddek et al. 2016; Cap. 10). Além disso, diferentes minerais não são liberados ao mesmo ritmo, dependendo da composição da ração (Leteliergordo et al. 2015), o que leva a um monitoramento mais complicado da sua concentração na solução aquapônica (Seawright et al. 1998).
9.3.2 Nitrificação
A principal fonte de nitrogênio em um sistema aquapônico é a alimentação de peixes e as proteínas que contém (Goddek et al. 2015; Ru et al. 2017; Wongkiew et al. 2017; Yildiz et al. 2017). Idealmente, 100% deste alimento deve ser comido pelos peixes. No entanto, observou-se que os peixes utilizam apenas cerca de 30% do azoto contido nos alimentos para animais (Rafiee e Saad 2005). O alimento ingerido é parcialmente utilizado para assimilação e metabolismo (Wongkiew et al. 2017), enquanto o resto é excretado através das brânquias ou como urina e fezes (Ru et al. 2017). O nitrogênio que é excretado através das brânquias é principalmente na forma de amônia, NHsub3/sub (Wongkiew et al. 2017; Yildiz et al. 2017), enquanto urina e fezes são compostas de nitrogênio orgânico (Wongkiew et al. 2017) que é transformado em amônia por proteases e desaminases (Sugita et al. 2005). Em geral, os peixes excretam azoto sob a forma de TAN, ou seja, NHsub3/sub e NHsub4/subsup+/Sup. O equilíbrio entre NHsub3/sub e NHsub4/subsup+/Sup depende principalmente do pH e temperatura. O amoníaco é o principal resíduo produzido pelo catabolismo de peixes das proteínas alimentares (Yildiz et al. 2017).
A nitrificação é um processo em duas etapas durante o qual o NHsub3/Sub de amónio ou NHsub4/subsup+/Sup de amónio excretado pelos peixes é transformado primeiro em nitrito Nosub2/subsup-/Sup e, em seguida, em nitrato Nosub3/subsup-/Sup por bactérias autotróficas aeróbias quimiosintéticas específicas. Uma alta disponibilidade de oxigênio dissolvido é necessária como nitrificação consome oxigênio (Carsiotis e Khanna 1989; Madigan e Martinko 2007; Shoda 2014). O primeiro passo desta transformação é realizado por bactérias oxidantes de amônia (AOB), tais como Nitrosomonas, Nitrosococcus, Nitrosospira, Nitrosolobus e Nitrosovibrio. O segundo passo é conduzido por bactérias oxidantes de nitrito (NOB) como Nitrobacter, Nitrococcus, Nitrospira e Nitrospina (Rurangwa e Verdegem 2013; Timmons and Ebeling 2013; Wongkiew et al. 2017). Nitrospira é atualmente deduzido como um nitrificador completo, ou seja, estar envolvido na produção tanto de nitrito como de nitrato (Daims et al. 2015). As mesmas bactérias podem ser encontradas tanto na aquicultura como nos sistemas aquapônicos (Wongkiew et al. 2017). Estas bactérias são encontradas principalmente em biofilmes fixados ao meio que compõe o biofiltro, mas também podem ser observadas nos outros compartimentos do sistema (Timmons e Ebeling 2013).
A nitrificação é de primordial importância na aquapônica, uma vez que o amoníaco e o nitrito são bastante tóxicos para os peixes: 0,02—0,07 mg/L de amônia—nitrogênio são suficientes para observar danos em peixes de água morna, e nitrito-nitrogênio deve ser mantido abaixo de 1 mg/L (Losordo et al. 1998; Timmons e Ebeling 2013). A amônia afeta o sistema nervoso central dos peixes (Randall e Tsui 2002; Timmons e Ebeling 2013), enquanto o nitrito induz problemas de fixação de oxigênio (Losordo et al. 1998). No entanto, o nitrogênio é tolerado pelos peixes até 150—300 mg/L (Goddek et al. 2015; Graber and Junge 2009; Yildiz et al. 2017).
A nitrificação ocorre principalmente em biofiltros (Losordo et al. 1998; Timmons e Ebeling 2013). Portanto, ao iniciar um sistema, recomenda-se executar o sistema sem peixes para permitir que a população de bactérias nitrificantes cresça lentamente (Timmons e Ebeling 2013; Wongkiew et al. 2017). Também é necessário evitar, na medida do possível, a presença de matéria orgânica nos biofiltros, a fim de evitar o crescimento de bactérias heterotróficas altamente competitivas (Timmons e Ebeling 2013). Alternativamente, misturas comerciais de bactérias nitrificantes podem ser adicionadas ao sistema, antes do estocamento, para acelerar o processo de colonização (Kuhn et al. 2010). No entanto, também existem pequenos sistemas aquapônicos sem biofiltro. Nestes sistemas, bactérias nitrificantes formam biofilmes das superfícies disponíveis (por exemplo, paredes do compartimento hidropônico, meios inertes quando se utiliza a técnica do leito de mídia) (Somerville et al. 2014).
9.4 Balanço de Massa: O que acontece com os nutrientes uma vez que eles entram no Sistema Aquapônico?
Original publication · Publicado pela primeira vez no FarmHub Learn · Aquaponics Food Production Systems
9.4.1 Contexto
O funcionamento dos sistemas aquapônicos baseia-se em um equilíbrio dinâmico dos ciclos de nutrientes (Somerville et al. 2014). Por conseguinte, é necessário compreender estes ciclos para optimizar a gestão dos sistemas. Plantas que crescem hidroponicamente têm requisitos específicos, que devem ser atendidos durante seus vários estágios de crescimento (Resh 2013). Portanto, as concentrações de nutrientes nos diferentes compartimentos do sistema devem ser monitoradas de perto e os nutrientes devem ser complementados para evitar deficiências (Resh 2013; Seawright et al. 1998) na água do sistema ou via aplicação foliar (Roosta e Hamidpour 2011).
De acordo com Delaide et al. (2016), em alguns casos, a suplementação de uma solução aquapônica com nutrientes minerais para atingir as mesmas concentrações de nutrientes que na hidropônica pode levar a rendimentos mais elevados do que os obtidos na hidropônica. O primeiro passo a dar para um sistema equilibrado é o design correto e o dimensionamento relativo dos compartimentos (Buzby e Lin 2014). Se o compartimento hidropônico for muito pequeno em comparação com os tanques de peixes, então os nutrientes se acumularão na água e poderão atingir níveis tóxicos. O rácio da taxa de alimentação (isto é, a quantidade de alimentos para peixes no sistema com base na superfície vegetal e no tipo de planta) é frequentemente utilizado para a primeira calibragem do sistema (Rakocy et al. 2006; Somerville et al. 2014). No entanto, de acordo com Seawright et al. (1998), não é possível alcançar uma relação planta/peixe que permita uma melhor correspondência das necessidades das plantas se apenas a alimentação dos peixes for utilizada como fonte de alimentação. Para garantir que o sistema esteja bem equilibrado e funcione corretamente, os métodos de monitoramento são geralmente baseados no ciclo do nitrogênio (Cerozi e Fitzsimmons 2017; Somerville et al. 2014), mas para garantir o ótimo funcionamento do sistema, é necessário monitorar mais de perto o equilíbrio dos outros macronutrientes ( N, P, K, Ca, Mg, S) e micronutrientes (Fe, Zn, B, Mn, Mo, Cu) (Resh 2013; Somerville et al. 2014; Sonneveld e Voogt 2009). Estudos recentes (Delaide et al. (2017), Schmautz et al. (2015, 2016)) começaram a abordar este tema. Schmautz et al. (2015, 2016) compararam o impacto de três diferentes layouts hidropônicos (técnica de filme nutriente (NFT), jangada flutuante e irrigação por gotejamento) na absorção de nutrientes de tomates aquapônicos. A irrigação por gotejamento foi o sistema que produziu rendimentos ligeiramente melhores com tomates. O teor mineral dos frutos (P, K, Ca, Mg) foi equivalente aos valores convencionais, embora os teores de ferro e zinco tenham sido maiores. No entanto, as folhas apresentaram níveis mais baixos de P, K, S, Ca, Mg, Fe, Cu e Zn do que na agricultura convencional. Delaide et al. (2016) acompanharam os ciclos de macro e micronutrientes em um sistema aquapônico acoplado. Eles observaram que K, P, Fe, Cu, Zn, Mn e Mo estavam faltando em sua solução aquapônica, enquanto N, Ca, B e Na foram rapidamente acumulados. Graber e Junge (2009) observaram que sua solução aquapônica continha três vezes menos nitrogênio e dez vezes menos fósforo do que uma solução hidropônica. Quanto ao potássio (K), foi 45 vezes menor em comparação com a hidropônica. No entanto, obtiveram rendimentos como rendimentos semelhantes, embora a qualidade tenha sido mais pobre devido à falta de potássio (K).
Fatores que influenciam os Ciclos de Nutrientes
A intensidade da luz, a temperatura da zona radicular, a temperatura do ar, a disponibilidade de nutrientes, o estágio de crescimento e a taxa de crescimento influenciam a absorção de nutrientes de uma planta (Buzby e Lin 2014). Os experimentos realizados por Schmautz et al. (2016) e Lennard e Leonard (2006) mostraram que o método hidropônico também pode desempenhar um papel na capacidade de absorção de nutrientes de uma planta, sendo, portanto, necessário combinar o sistema de cultivo com o tipo de hortaliças cultivadas. A NFT e a DWC (cultura de águas profundas — jangada) são, portanto, adequadas para folhas verdes, enquanto a irrigação por gotejamento em lajes de lã de rocha é mais adequada para vegetais frutados (Resh 2013).
9.4.2 Ciclos de macronutrientes
**Carbono (C) **
O carbono é fornecido aos peixes através da alimentação animal (Timmons e Ebeling 2013) e às plantas através da fixação CoSub2/Sub. Os peixes podem utilizar 22% do carbono contido na alimentação dos peixes para aumentar a biomassa e o metabolismo. O restante do carbono ingerido é expirado sob a forma de CoSub2/Sub (52%) ou excretado numa forma dissolvida (0,7— 3%) e sólida (25%) (Timmons e Ebeling 2013). O CoSub2/Sub expirado também pode ser usado por plantas para sua própria fonte de carbono (Körner et al. 2017). A parte não consumida do carbono alimentar é deixada para se decompor no sistema. O tipo de hidratos de carbono encontrados nos alimentos para peixes (por exemplo, amido ou polissacáridos não amiláceos) pode também influenciar a digestibilidade dos alimentos para animais e a biodegradabilidade dos resíduos num sistema aquícola ou aquapónico (Meriac et al. 2014).
**Nitrogênio (N) **
O nitrogênio é absorvido pelas plantas na forma de nitrato ou amônio (Sonneveld e Voogt 2009; Xu et al. 2012) dependendo da concentração e fisiologia da planta (Fink e Feller 1998 citados por Wongkiew et al. 2017). As associações entre plantas e microrganismos não devem ser negligenciadas, pois as plantas afetam a presença dos microrganismos na aquapônica, e os microrganismos podem desempenhar um papel significativo na capacidade de absorção de nitrogênio das plantas (Wongkiew et al. 2017). A absorção de nitrogênio pelas plantas é afetada pela concentração de dióxido de carbono ambiente (Zhang et al. 2008 citado por Wongkiew et al. 2017).
**Fósforo (P) **
O fósforo é um dos elementos essenciais para o crescimento das plantas e pode ser absorvido sob sua forma de ortofosfato iônico (Hsub2/subposub4/subsup-/sup, HPOsub4/subsup2-/sup, POsub4/subsup3-/sup) (Prabhu et al. 2007; Resh 2013). Pouco se sabe sobre a dinâmica do fósforo em aquaponia. A principal entrada de fósforo no sistema é a alimentação de peixes (Cerozi e Fitzsimmons 2017; Delaide et al. 2017; Schmautz et al. 2015), e em sistemas não suplementados (Chap. 7, o fósforo tende a ser limitante e, assim, pode impedir o crescimento vegetal (Graber e Junge 2009; Seawright et al. 1998). De acordo com Rafiee e Saad (2005), os peixes podem utilizar até 15% do fósforo contido na ração. Em um sistema de cultivo de alface, Cerozi e Fitzsimmons (2017) perceberam que a quantidade de fósforo fornecida pela ração de peixe pode ser suficiente ou insuficiente dependendo do estágio de crescimento. Até 100% do fósforo presente na água dos peixes podem ser reciclados na biomassa vegetal, dependendo do projeto do sistema. Graber e Junge (2009) observaram 50% de reciclagem, enquanto Schmautz et al. (2015) relataram que 32% do fósforo poderia ser encontrado na fruta e 28% nas folhas. A solubilidade do fósforo depende do pH, e um pH maior fomentará a precipitação do fósforo, tornando-o indisponível para as plantas (Yildiz et al. 2017). O fósforo pode precipitar como estruvita (fosfato de magnésio amônio) (Le Corre et al. 2005) e/ou hidroxiapatita (Cerozi e Fitzsimmons 2017; Goddek et al. 2015). Estes complexos insolúveis são removidos através de lodo de peixe sólido do sistema. Schneider et al. (2004) relataram que 30-65% do fósforo contido na ração dos peixes permanece indisponível para as plantas, pois é fixado nas excreções sólidas que são então removidas por filtração mecânica. Yogev et al. (2016) estimaram que essa perda pode ser de até 85%. Uma opção para evitar esta perda maciça de P através de lodo sólido é adicionar um compartimento de digestão ao sistema aquapônico. Durante a digestão aeróbica ou anaeróbica, o P é liberado na digestação e pode ser reintroduzido na água circulante (Goddek et al. 2016).
**Potássio (K) **
Delaide et al. (2017) descobriram que a principal fonte de K em seu sistema foi a alimentação de peixes. Os peixes podem utilizar até 7% do K contido nos alimentos para peixes (Rafiee e Saad 2005). No entanto, o potássio não é necessário para os peixes, o que leva a uma composição baixa de potássio da ração dos peixes e a níveis ainda mais baixos de potássio disponíveis para as plantas (Graber and Junge 2009; Seawright et al. 1998; Suhl et al. 2016). Para fornecer potássio, um tampão de pH KOH é frequentemente usado, pois o pH geralmente diminui na aquapônica devido à nitrificação (Graber e Junge 2009). Em um sistema aquapônico plantado com tomate, o potássio acumulou-se principalmente nos frutos (Schmautz et al. 2016).
**Magnésio (Mg), Cálcio (Ca) e Enxofre (S) **
A principal fonte de Mg, Ca e S é a água da torneira que facilita a absorção pelas plantas, já que os nutrientes já estão disponíveis (Delaide et al. 2017). No entanto, o cálcio está presente em níveis insuficientes em aquapônicos (Schmautz et al. 2015; Seawright et al. 1998) e é adicionado sob a forma de hidróxido de cálcio Ca (OH) sub2/sub (Timmons e Ebeling 2013). De acordo com Rafiee e Saad (2005), os peixes podem utilizar, em média, 26,8% do cálcio e 20,3% do magnésio presente na ração. O enxofre está frequentemente em níveis baixos em sistemas aquapônicos (Graber e Junge 2009; Seawright et al. 1998).
9.4.3 Ciclos de micronutrientes
O ferro (Fe), o manganês (Mn) e o zinco (Zn) derivam principalmente da ração dos peixes, enquanto o boro (B) e o cobre (Cu) derivam da água da torneira (Delaide et al. 2017). Na aquapônica, os micronutrientes chave estão frequentemente presentes, mas em níveis muito baixos (Delaide et al. 2017), e a suplementação a partir de fontes externas de nutrientes é então necessária (Cap. 8). As deficiências de ferro ocorrem muito frequentemente na aquapônica (Schmautz et al. 2015; Seawright et al. 1998; Fitzsimmons e Posadas; 1997 citado por Licamele 2009), principalmente devido à indisponibilidade da forma de íon férrico. Esta deficiência pode ser resolvida pelo uso de sideróforos bacterianos (isto é, compostos orgânicos quelantes de ferro) produzidos por gêneros como Bacillus ou Pseudomonas (Bartelme et al. 2018) ou pela suplementação de ferro com ferro quelatado químico para evitar a precipitação de ferro.
9.4.4 Perdas de nutrientes
Reduzir a perda de nutrientes é um desafio constante que os praticantes de aquaponia enfrentam. A perda de nutrientes ocorre de várias formas, por exemplo, a liquidação das lamas (37% das fezes e 18% dos alimentos não consumidos) (Neto e Ostrensky 2015), perdas de água, desnitrificação, volatilização do amoníaco, etc. (Wongkiew et al. 2017). A título de exemplo, Rafiee e Saad (2005) observam que 24% do ferro, 86% do manganês, 47% do zinco, 22% do cobre, 16% do cálcio, 89% do magnésio, 6% do nitrogênio, 6% do potássio e 18% do fósforo contido na ração dos peixes estavam contidos nas lamas. O lodo pode conter até 40% dos nutrientes presentes na alimentação (Yogev et al. 2016).
A desnitrificação pode levar a uma perda de 25 a 60% do azoto (Hu et al. 2015; Zou et al. 2016). A desnitrificação também está ligada a condições anóxicas (Madigan e Martinko 2007; van Lier et al. 2008) e baixos níveis de carbono e é responsável pela transformação do nitrato em nitrito, óxido nítrico (NO), óxido nitroso (NSub2/Subo) e, eventualmente, gás nitrogenado (NSub2/sub) com fluxos para a atmosfera (ibid. ). A desnitrificação é conduzida por várias bactérias heterotróficas facultativas, tais como Achromobacter, Aerobacter, Acinetobacter, Bacillus, Brevibacterium, Flavobacterium, Pseudomonas, Proteus e Micrococcus sp. (Gentile et al. 2007; Michaud et al. 2006; Wongkiew et al. 2017). Algumas bactérias podem realizar nitrificação e desnitrificação se os níveis de oxigênio dissolvido estiverem abaixo de 0,3 mg/L (Fitzgerald et al. 2015; Wongkiew et al. 2017). A perda de nitrogênio também pode ocorrer por oxidação anaeróbica de amônio (ANAMMOX), ou seja, a oxidação do amônio em gás dinitrogênio na presença de nitrito (Hu et al. 2011).
Outra importante perda de nitrogênio que deve estar disponível para as plantas é o consumo do nitrogênio pelas bactérias aeróbias heterotróficas presentes nos sistemas aquapônicos. De fato, o nitrogênio usado por essas bactérias é perdido para bactérias nitrificantes, e a nitrificação é assim impedida (Blancheton et al. 2013). Estas bactérias estão particularmente presentes quando a relação C/N aumenta à medida que são mais competitivas e mais capazes de colonizar os meios do que as bactérias nitrificantes autotróficas (Blancheton et al. 2013; Wongkiew et al. 2017).
9.4.5 Dinâmica dos Sistemas de Balanço Nutri
A concentração de nutrientes dos dois principais subsistemas num sistema aquapónico, isto é, os tanques de peixes (aquicultura) e a solução hidropônica, tem de ser equilibrada em função de cada uma das suas necessidades. Em sistemas aquapônicos fechados, os nutrientes são transportados de peixes para plantas mais ou menos diretamente através de filtros (geralmente um filtro de tambor ou um colono e, em seguida, um biofiltro) para nitrificação. No entanto, as necessidades de nutrientes das culturas e os nutrientes fornecidos pelo subsistema aquapónico não estão em equilíbrio. Em sistemas multi-loop e desacoplados (Cap. 8), é mais fácil fornecer condições ideais para as seções de peixes e plantas. Através da modelagem dos sistemas (Cap. 11), o tamanho ideal da área hidropônica para os tanques de peixes, biofiltros e outros equipamentos pode ser calculado (Goddek e Körner 2019). Isto é particularmente importante com os sistemas multi-loop dissociados que compreendem vários tipos de equipamentos. Por exemplo, UASB (cobertor de lodo anaeróbio ascendente) (Goddek et al. 2018) ou unidades de dessalinização (Goddek e Keesman 2018) precisam ser dimensionadas cuidadosamente conforme discutido em Cap. 8. A inadequação básica dos nutrientes fornecidos pelo ambiente dos peixes e as necessidades das culturas tem de ser corrigida e equilibrada. Para a concentração dos nutrientes, Goddek e Keesman (2018) descreveram uma unidade de dessalinização adequada (Cap. 8). Esta abordagem, no entanto, apenas resolve uma parte do problema, uma vez que o sistema perfeitamente equilibrado é impulsionado por uma taxa de evaporação não dinâmica alcançável apenas em câmaras fechadas e plantas que funcionam perfeitamente. A realidade, no entanto, é que a evapotranspiração da cultura (ETSubc/Sub) em sistemas aquapônicos baseados em estufa é altamente dependente de múltiplos fatores, como clima físico e variáveis biológicas. O ETsubc/sub é calculado por área da superfície do solo coberta pela cultura e é calculado para diferentes níveis no dossel (z), integrando fluxos líquidos irradiativos, resistência da camada limite, resistência aos estomatos e déficitsub da pressão de vapor, /sub no dossel (Körner et al. 2007) utilizando o Equação de Monteith. Esta equação, no entanto, apenas calcula o fluxo de água através da cultura. A absorção de nutrientes pode ser calculada simplesmente assumindo que todos os nutrientes diluídos na água são absorvidos pela cultura. Na realidade, porém, a absorção de nutrientes é uma questão altamente complicada. Diferentes nutrientes têm estados diferentes, mudando com parâmetros como o pH. Enquanto isso, a disponibilidade de nutrientes para as plantas depende fortemente do pH e das relações dos nutrientes entre si (por exemplo, disponibilidade de K/Ca). Além disso, o microbioma na zona radicular desempenha um papel importante (Orozco-Mesquita et al. 2018) que ainda não está implementado em modelos, embora alguns modelos diferenciem entre vias de phloema e xilema. Assim, a grande quantidade de nutrientes não é modelada em detalhes para balanceamento de nutrientes aquapônicos e dimensionamento de sistemas. A forma mais fácil de estimar a absorção de nutrientes é o pressuposto de que os nutrientes são absorvidos/absorvidos como dissolvidos na água de irrigação e aplicam-se à abordagem de cálculo ETsubc/sub explicada acima e assumindo que não existem resistências químicas, biológicas ou físicas específicas de elementos. Consequentemente, para manter o equilíbrio, todos os nutrientes absorvidos pela cultura como contidos na solução nutritiva precisam ser adicionados de volta ao sistema hidropônico.
9.5 Conclusões
Original publication · Publicado pela primeira vez no FarmHub Learn · Aquaponics Food Production Systems
9.5.1 Desvantagens atuais da ciclagem de nutrientes em Aquaponics
Na hidroponia, a solução nutritiva é determinada com precisão e a entrada de nutrientes no sistema é bem compreendida e controlada. Isso torna relativamente fácil adaptar a solução nutritiva para cada espécie vegetal e para cada estágio de crescimento. Na aquaponia, de acordo com a definição (Palm et al. 2018), os nutrientes têm de se originar pelo menos 50% de alimentos para peixes não consumidos, fezes sólidas de peixe e excreções solúveis em peixes, dificultando assim a monitorização das concentrações de nutrientes disponíveis para a captação das plantas. Uma segunda desvantagem é a perda de nutrientes através de várias vias, tais como remoção de lodo, renovação de água ou desnitrificação. A remoção de lodo induz uma perda de nutrientes, uma vez que vários nutrientes essenciais, como o fósforo, frequentemente precipitam e são então presos no lodo sólido evacuado. A renovação da água, que deve ocorrer mesmo em pequenas proporções, também contribui para a perda de nutrientes do circuito aquapônico. Finalmente, a desnitrificação ocorre devido à presença de bactérias desnitrificantes e condições favoráveis aos seus metabolismos.
9.5.2 Como melhorar a ciclagem de nutrientes?
Para concluir, a ciclagem de nutrientes ainda precisa ser melhorada, a fim de otimizar o crescimento da planta na aquapônica. Diversas opções são, portanto, exploradas atualmente em Chap. 8. Para evitar a perda de nutrientes capturados nas lamas, foram desenvolvidas unidades de remineralização de lamas (Cap. 10). O objetivo dessas unidades é extrair os nutrientes capturados em forma sólida no lodo e reinjetá-los no sistema sob uma forma que as plantas possam absorver (Delaide 2017). Uma outra técnica para reduzir a perda de nutrientes seria promover a absorção das plantas através da concentração da solução aquapônica (isto é, a remoção de uma fração da água para manter a mesma quantidade de nutrientes, mas em um menor volume de água). Essa concentração poderia ser alcançada através da adição de uma unidade de dessalinização como parte do sistema aquapônico (Goddek e Körner 2019; Goddek e Keesman 2018). Finalmente, o uso de sistemas dissociados/multi-loop permite condições ideais de vida e crescimento para todos os peixes, plantas e microrganismos. Embora algumas pesquisas tenham sido realizadas neste campo, mais pesquisas devem ser conduzidas para entender melhor a ciclagem de nutrientes em aquapônica. De fato, mais informações sobre os ciclos exatos de cada macronutriente (que forma, como ele pode ser transformado ou não por microrganismos, como ele é absorvido pelas plantas em aquapônica) ou a influência das espécies de plantas e peixes e dos parâmetros de água nos ciclos de nutrientes poderiam ajudar muito a compreensão de sistemas aquapônicos.