Source material
Capítulo 11 Modelação de Sistemas Aquapônicos
Karel J. Keesman, Oliver Körner, Kai Wagner, Jan Urban, Divas Karimanzira, Thomas Rauschenbach e Simon Goddek
Abstrato Os modelos matemáticos podem assumir formas muito diferentes e níveis muito diferentes de complexidade. Uma forma sistemática de postular, calibrar e validar, conforme fornecido pela teoria dos sistemas, pode, portanto, ser muito útil. Neste capítulo, a modelagem de sistemas dinâmicos de sistemas aquapônicos (AP), a partir de uma perspectiva teórica de sistemas, é considerada e demonstrada para cada um dos subsistemas do sistema AP, tais como tanques de peixes, digestor anaeróbio e estufa hidropônica (HP). Ele mostra ainda as ligações entre os subsistemas, de modo que, em princípio, um modelo completo de sistemas AP pode ser construído e integrado na prática diária no que diz respeito à gestão e controle de sistemas AP. O principal desafio é escolher uma complexidade de modelo adequada que atenda aos dados experimentais para estimativa de parâmetros e estados e nos permita responder a questões relacionadas ao objetivo de modelação, como simulação, design de experimentos, previsão e controle.
Palavras Modelação · Sistema aquícola de recirculação · Digestão anaeróbica · Estufa hidropônica · Sistema aquapônico multi-loop · Ferramentas
Conteúdo
- 11.1 Introdução
- 11.2 Fundo
- 11.3 Modelação RAS
- 11.4 Modelação da Digestão Anaeróbia
- 11,5 HP Greenhouse Modelling
- 11.6 Modelação Aquapônica Multi-loop
- 11.7 Ferramentas de modelação
- 11.8 Discussão e Conclusões
- Referências
—
[K. J. Keesman](mailto: karel.keesman@wur.nl) · [S. Goddek](mailto: simon@goddek.nl)
Métodos Matemáticos e Estatísticos (Biometris), Universidade de Wageningen, Wageningen, Países Baixos
[O. Körner](mailto: koerner@igzev.de)
Leibniz-Instituto de Culturas Vegetais e Ornamentais (IGZ), Grossbeeren, Alemanha
[K. Wagner](mailto: kai.wagner@htwsaar.de)
Institut für physikalische Prozesstechnik, Universidade de Ciências Aplicadas Saarbrücken, Saarbrücken, Alemanha
[J. Urban](mailto: urbanj@frov.jcu.cz)
Laboratório de Processamento de Sinais e Imagens, Instituto de Sistemas Complexos, Sul da Boêmia
Centro de Pesquisa de Aquicultura e Biodiversidade de Hidrocenoses, Faculdade de Pescas e
Protecção das águas, Universidade da Boémia do Sul em Ceske Budejovice, Nove Hrady, República Checa
[D. Karimanzira](mailto: kai.wagner@htwsaar.de) · [T. Rauschenbach](mailto: Thomas.Rauschenbach@iosb-ast.fraunhofer.de)
Fraunhofer IOSB-AST, Ilmenau, Alemanha
© O (s) Autor (es) 2019 267
S. Goddek et al. (eds.), Sistemas de Produção de Alimentos Aquaponics, https://doi.org/10.1007/978-3-030-15943-6_11
—
Referências
Análise de Badiola M, Mendiola D, Bostock J (2012) Recirculating Aquaculture Systems (RAS): principais questões de gestão. Aquac Eng 51:26 —35. https://doi.org/10.1016/j.aquaeng.2012.07. 004
Batstone DJ, Keller J, Angelidaki I, Kalyuzhnyi SV, Pavlostathis SG, Rozzi A, Sanders WTM, Siegrist H, Vavilin VA (2002) A Digestão Anaeróbica IWA Modelo nº 1 (ADM1). Esqui de Água Technol 45:65 —73
Boote KJ, Jones JW (1987) Equações para definir a fotossíntese do dossel a partir de uma dada eficiência quântica, taxa máxima foliar, extinção da luz, índice de área foliar e densidade do fluxo de fótons. In: Biggins J (ed) Progresso na pesquisa de fotossíntese. Martinus Nijhoff, Dordrecht, páginas 415-418
Bot GPA (1993) Modelação física do clima de estufa. Em: Hashimoto Y, Bot GPA, Dia W, Tantau HJ, Nonami H (eds) A estufa computadorizada. Imprensa Acadêmica, San Diego, pp 51-74
Buck-Sorlin G, De Visser PHB, Henke M, Sarlikioti V, Ven der Heijden G, Marcelis LFM, Vos J (2011) Rumo a um modelo funcional de planta estrutural de corta-rosa: simulação de ambiente luminoso, absorção de luz, fotossíntese e interferência com a estrutura da planta. Ann Bot 108:1121 —1134
Challa H, Bakker M (1999) Produção potencial dentro do ambiente de estufa. Em: Stanhill G,
Enoch HZ (eds) Ecossistemas do mundo 20 — Ecossistemas de estufa. Elsevier, pp 333-347
Colt JEK (2013) Impacto da aeração e da alcalinidade na qualidade da água e na qualidade do produto da tilápia transportada — um estudo de simulação. Aquac Eng:46—58
Corominas L, Riegler L, Takács I (2010) Novo quadro para notação padronizada em águas residuais. J Int Assoc Água Poluir Res 61 (4) :S841—S857
Dahl O-J, Nygaard K (1966) SIMULA: uma linguagem de simulação baseada em Algol. Commun ACM 9
(9) :671—678. https://doi.org/10.1145/365813.365819 de Zwart HF (1996) Analisando opções de economia de energia no cultivo de estufa usando um modelo de simulação. Universidade Agrícola de Wageningen, Wageningen, p. 236
Delaide B, Goddek S, Keesman, KJ, Jijakli MH (2018). Uma metodologia para quantificar o desempenho da digestão de lodo aeróbio e anaeróbio para reciclagem de nutrientes em aquapônica. https://popups. uliege.be:443/1780-4507 22, 12
Drayer GE, Howard AM (2014) Modelação e simulação de um habitat aquático para pesquisa bioregenerativa de suporte de vida. Astronauta Acta 93:S.138—S.147. https://doi.org/10.1016/j.actaastro.2013. 07.013
El-Mashad H (2003) Solar Termofílico Reator Anaeróbio (STAR) para produção de energia renovável tese de doutorado Universidade de Wageningen. ISBN: 9058089533-238
Emerenciano M, Carneiro P, Lapa M, Lapa K, Delaide B, Goddek S (2017) Mineralizacão de sólidos. Bras Aquac 21—26
Emrich S, Suslov S, Judex F (2007) Totalmente baseado em agente. Modelações de propagação epidêmica usando qualquer lógica. Em: Procedimentos do EUROSIM
FAO (2016) O Estado da Pesca Mundial e da Aquicultura 2016. Contribuir para a segurança alimentar e nutrição para todos. Organização das Nações Unidas para a Alimentação e a Agricultura, Roma
Ficara E, Hassam S, Allegrini A, Leva A, Malpei F, Ferretti G (2012) Modelos de digestão anaeróbica: um estudo comparativo. In: Procedimentos da 7ª Conferência Internacional de Viena sobre modelagem matemática 2012, p 1052
Fortmann-Roe S (2014) Insight maker: uma ferramenta de uso geral para modelagem e simulação baseada na web. Teoria do Modelo de Simul Pract 47:28 —45
Frantz JM, Mão B, Buckingham L, Ghose S (2010) Grower virtual: software para calcular os custos de aquecimento da produção de estufa nos Estados Unidos. HortTechnology 20:778 —785
Galí A, Benabdallah T, Astals S, Mata-Alvarez J (2009) Versão modificada do modelo ADM1 para aplicação de agroresíduos. Bioresour Technol 100 (11) :2783—2790
Goddek S (2017) Oportunidades e desafios de sistemas aquapônicos multi-loop. Universidade de Wageningen. https://doi.org/10.18174/412236
Goddek S, Delaide BPL, Joyce A, Wuertz S, Jijakli MH, Gross A, Eing EH, Bläser I, Reuter M, Keizer LCP, Morgenstern R, Körner O, Verreth J, Keesman KJ (2018) Mineralização de nutrientes e redução de matéria orgânica de lamas à base de RAS em UASB-EGSB sequencial reactores. Aquac Eng 83:10 —19. ISSN: 0144-8609
Goddek S, Keesman KJ (2018) A necessidade da tecnologia de dessalinização para projetar e dimensionar sistemas aquapônicos multi-loop. Dessalinização 428:76 —85. https://doi.org/10.1016/j.desal.2017. 11.024
Goddek S, Körner O (2019) Um modelo de simulação totalmente integrado de aquapônica multi-loop: Um estudo de caso para dimensionamento de sistemas em diferentes ambientes. Agric Syst
Goddek S, Delaide B, Mankasingh U, Ragnarsdottir K, Jijakli H, Thorarinsdottir R (2015) Desafios da aquapônica sustentável e comercial. Sustentabilidade 7:4199 —4224. https://doi.org/10.3390/su7044199
Goddek S, Espinal CA, Delaide B, Jijakli MH, Schmautz Z, Wuertz S, Keesman KJ (2016) Navegando em direção a sistemas aquapônicos dissociados: uma abordagem de projeto de dinâmica do sistema. Água (Suíça) 8:303. https://doi.org/10.3390/W8070303
Graber A, Junge R (2009) Sistemas aquapônicos: reciclagem de nutrientes de águas residuais de peixes por produção vegetal. Dessalinização 246:147 —156
Halamachi I, Simon Y (2005) Um novo modelo de simulação computacional para a concepção e gestão de sistemas aquícolas de recirculação. Aquac Eng 32 (3—4) :S443—S464. https://doi.org/10.1016/j. aquaeng.2004.09.010
Hassan J et al (2016) Acúmulo transitório de NO2-e N2O durante a desnitrificação explicado pela suposição da diversificação celular por transcrição estocástica de genes de desnitrificação. POS Comput Biol 11 (1) :e1004621
Ele E, Wurtsbaugh W (1993) Um modelo empírico de taxas de evacuação gástrica para peixes e uma análise da digestão em truta marrom piscívora. Trans Am Fish Soc 122 (5) :S.717—S.730
Henze M, Willi G, Takashi M, Mark L (2002) Modelos de lamas ativadas ASM1, ASM2, ASM2d E ASM3. IWA Publishing em sua série de relatórios científicos e técnicos, Reino Unido. ISBN: 1-900222-24-8
Heuvelink E (1996) Crescimento e rendimento do tomate: análise quantitativa e síntese. Departamento de Horticultura. Universidade Agrícola de Wageningen, Wageningen, Países Baixos, p. 326
Jablonsky J, Papacek S, Hagemann M (2016) Diferentes estratégias de regulação metabólica em cianobactérias: do controle transcricional ao bioquímico. Sci Rep 6:33024
Janka E, Körner O, Rosenqvist E, Ottosen CO (2018) Simulação da eficiência operacional PSII a partir da fluorescência clorofila em resposta à luz e à temperatura em crisântemo (Dendranthema grandiflora) usando um modelo de folha multicamada. Photosynthetica 56:633 —640
Karimanzira D, Keesman KJ, Kloas W, Baganz D, Rauschenbach T (2016) Modelagem dinâmica do sistema aquapônico INAPRO. Aquac Eng 75:29 —45. https://doi.org/10.1016/j.aquaeng.2016.10.004
Keesman KJ (2011) Identificação do sistema: uma introdução. Springer, Londres
Knaus U, Palm HW (2017) Efeitos da biologia de peixes nas ervas aquaponicais cultivadas no norte da Alemanha (Mecklenburg Ocidental Pomerânia). Aquicultura 466:51 —63. https://doi.org/ 10.1016/j.aquaculture.2016.09.025
Körner O, Hansen JB (2011) Uma ferramenta on-line para otimizar a produção de culturas com efeito de estufa. Acta Hortic 957:147 —154
Körner O, Van Straten G (2008) Apoio à decisão para estratégias dinâmicas de controlo do clima com efeito de estufa. Comput Electron Agric 60:18 —30
Körner O, Aaslyng JM, Andreassen AU, Holst N (2007) Modelação de microclima para controle dinâmico do clima de estufa. HortScience 42:272 —279
Körner O, Warner D, Tzilivakis J, Eveleens-Clark B, Heuvelink E (2008) Apoio à decisão para optimizar o consumo de energia em estufas europeias. Acta Hortic 801:803 —810
Körner O, Gutzmann E, Kledal PR (2017) Modelo dinâmico simulando os efeitos simbióticos em sistemas aquapônicos. Acta Hortic 1170:309 —316
Licamele JD (2009) Produção de biomassa e dinâmica de nutrientes em um sistema aquaponico. A Universidade do Arizona
Liebig HP, Alscher G (1993) Combinação de modelos de crescimento para controle otimizado de Cosub2/sub e temperatura de alface. Acta Hortic 328:155 —162
Lugert V, Thaller G, Tetens J, Schulz C, Krieter J (2014) Uma revisão sobre o cálculo do crescimento de peixes: múltiplas funções na produção de peixe e sua aplicação específica. Rev. Aquac 8 (1) :30—42
Lupatsch I, Kissil GW (1998) Predição de resíduos aquícolas provenientes da cultura de dourado (Sparus aurata) usando abordagem nutricional. Aquat Living Resour 11 (4) :265—268. https://doi.org/10. 1016/S0990-7440 (98) 80010-7
Lupatsch I, Kissil GW, Sklan D (2003) Comparação da eficiência energética e proteica entre três espécies de peixes dourados (Sparus aurata), robalo europeu (Dicentrarchus labrax) e garoupa branca (Epinephelus aeneus): gasto energético para deposição de proteínas e lipídios. Aquacultura: 175—189
Macal CM, North MJ (2005) Tutorial sobre modelagem e simulação baseada em agentes. In: Conferência de simulação, 2005 procedimentos do inverno. IEEE
Madsen LO, Møller-Pedersen B, Nygaard K (1993) Programação orientada a objetos na linguagem de programação BETA. Addison Wesley. ISBN 0-201-62430-3
Marcelis LFM (1994) Crescimento de frutos e particionamento de matéria seca em pepino. Departamento de Horticultura. Universidade Agrícola de Wageningen, Wageningen, p. 173
McCarthy J, Levin MI (1965) LISP 1.5 manual do programador. MIT Press, Cambridge, MA
Orellana JUW (2014) Cultura de peixe-do-mato (Seriola lalandi) em um sistema de aquicultura de recirculação marinha (RAS) com água do mar artificial. Aquac Eng:20—28
Pagand P, Blancheton JP, Casellas C (2000) Modelo para prever as quantidades de azoto inorgânico dissolvido libertado em efluentes de um sistema de recirculação de água de robalo (Dicentrarchus labrax). Aquac Eng 22 (1—2) :S137—S153
Pavlostathis SG, Giraldo-Gomez E (1991) Cinética do tratamento anaeróbio: Uma revisão crítica. Controle Ambiental Rev Crit 21:411 —490
Poorter H, Anten NP, Marcelis LFM (2013) Mecanismos fisiológicos em modelos de crescimento de plantas: precisamos de uma abordagem de biologia de sistemas supra-celulares. Célula Planta Environ 36:1673 —1690
Rath T (1992) Einsatz wissensbasierter Systeme zur Modellierung und Darstellung von gartenbautechnischem Fachwissen am Beispiel des hybriden Expertensystems HORTEX. Universidade de Hannover, Alemanha
Rath T (2011) Sistema de software zur Planung von Heizanlagen von Gewächshäusern. Fachgebiet Biosystem- und Gartenbautechnik Leibniz University Hannover, Alemanha
Reyes Lastiri D, Slinkert T, Cappon HJ, Baganz D, Staaks G, Keesman KJ, (2016) Modelo de um sistema aquapônico para necessidades minimizadas de água, energia e nitrogênio. Tecnol de Água. wst2016127. https://doi.org/10.2166/wst.2016.127
Richie M, Haley D, Oetker M (2004) Efeito da frequência alimentar na evacuação gástrica e no retorno do apetite em Tilapia Oreochromis niloticus (L.). Aquicultura 234 (1—4) :S657—S673. https://doi.org/10.1016/j.aquaculture.2003.12.012
Rusten BE (2006) Concepção e operação dos reatores de biofilme de leito móvel Kaldnes. Aquac Eng:322—331
Sánchez-Romero A, Miranda-Baeza A, Rivas-Vega M (2016) Desenvolvimento de um modelo para simular a dinâmica do nitrogênio em um sistema integrado de cultura de camarão e macroalgas com troca de água zero. J World Aquacult Soc 47 (1) :129—138
Sinha NK, Kuszta B (1983) Modelação e identificação de sistemas dinâmicos. Von-Nostrand Reinhold, Nova Iorque
Soukup J, Macháček P (2014) Serialização e objetos persistentes. O Springer. https://doi.org/10. 1007/978-3-642-39323-5
Sterman J (2000) Dinâmica de negócios: pensamento e modelagem de sistemas para um mundo complexo. McGraw Hill, Boston
Štys D, Stys D Jr, Pecenkova J, Stys KM, Chkalova M, Kouba P, Pautsina A, Durniev D, Nahlık T, Cısa P (2015) 5iD Visualizador - observação do comportamento da escola de peixes em labirintos e utilização de entropia semântica e sintática para definição da estrutura escolar. Mundo Acad Sci Eng Technol Int
J Comput Electr Autom Control Inf Eng 9 (1) :281—285 van Ooteghem RJC (2007) Projeto de controle ideal para uma estufa solar. Universidade de Wageningen, Wageningen, p. 304
Vanthoor B (2011) Um método de projeto de estufa baseado em modelos. Universidade de Wageningen, Wageningen, p. 307
Waller U, Buhmann AK, Ernst A et al (2015) Aquicultura multitrófica integrada em um sistema de aquicultura de recirculação de troca zero para produção de peixes marinhos e halófitos hidropônicos. Aquac Int 23:1473
Weatherley LR, Hill RG, Macmillan KJ (1993) Modelação de processos de um sistema de aquicultura intensivo. Aquac Eng:215—230
Wik TEI, Lindén BT, Wramner PI (2009) Modelagem integrada de aquicultura dinâmica e tratamento de águas residuais para sistemas de aquicultura de recirculação. Aquicultura 287 (3/4) :361—370
Willems JC, Polderman JW (1998) Introdução à teoria dos sistemas matemáticos: uma abordagem comportamental. O Springer. ISBN: 978-1-4757-2953-5
Wolfram S (1991) Mathematica: um sistema para fazer matemática por computador. Wolfram Research, Champagne
Yogev U, Barnes A, Gross A (2016) Análise de nutrientes e balanço energético para um modelo conceitual de três loops off grid, aquaponics. Água 8:589. https://doi.org/10.3390/W8120589
Zeigler BP, Praehofer H, Kim TG (2000) Teoria da modelagem e simulação, 2º edn. Elsevier, Londres
Acesso Aberto Este capítulo está licenciado sob os termos da Licença Internacional Creative Commons Attribution 4.0, que permite o uso, compartilhamento, adaptação, distribuição e reprodução em qualquer meio ou formato, desde que você dê crédito apropriado ao (s) autor (es) original (s) e à fonte, forneça um link para a licença Creative Commons e indique se foram feitas alterações.
As imagens ou outros materiais de terceiros neste capítulo estão incluídos na licença Creative Commons do capítulo, salvo indicação em contrário em uma linha de crédito para o material. Se o material não estiver incluído na licença Creative Commons do capítulo e seu uso pretendido não for permitido por regulamentos legais ou exceder o uso permitido, você precisará obter permissão diretamente do detentor dos direitos autorais.
Aquaponics Food Production Systems contributors.
Ver a edição original · Creative Commons Attribution 4.0
Esta edição da biblioteca foi reformatada e consolidada a partir da fonte original.
11.1 Introdução
Original publication · Publicado pela primeira vez no FarmHub Learn · Aquaponics Food Production Systems
Em geral, os modelos matemáticos podem assumir formas muito diferentes, dependendo do sistema em estudo, que podem variar de sistemas sociais, econômicos e ambientais a sistemas mecânicos e elétricos. Normalmente, os mecanismos internos dos sistemas sociais, econômicos ou ambientais não são muito conhecidos ou compreendidos e muitas vezes apenas pequenos conjuntos de dados estão disponíveis, enquanto o conhecimento prévio de sistemas mecânicos e elétricos está em um nível alto, e experimentos podem ser facilmente feitos. Além disso, o modelo de formulário também depende fortemente do objectivo final do procedimento de modelização. Por exemplo, um modelo para projeto de processo ou simulação deve conter muito mais detalhes do que um modelo usado para estudar diferentes cenários de longo prazo.
Em particular, para uma ampla gama de aplicações (por exemplo, Keesman 2011), os modelos são desenvolvidos para:
-
Obter ou ampliar a visão de diferentes fenômenos, por exemplo, a recuperação de relações físicas ou econômicas.
-
Analisar o comportamento do processo usando ferramentas de simulação, por exemplo, treinamento de processos de operadores ou previsões meteorológicas.
-
Estimar variáveis de estado que não podem ser facilmente medidas em tempo real com base em medições disponíveis, por exemplo, informações de processos on-line.
-
Controle, por exemplo, no controle do modelo interno ou no conceito de controle preditivo baseado em modelos ou para gerenciar processos.
Um passo crítico na modelagem de qualquer sistema é encontrar um modelo matemático que descreva adequadamente a situação ou estado real. Em primeiro lugar, os limites do sistema e as variáveis do sistema têm de ser especificados. Em seguida, as relações entre essas variáveis devem ser especificadas com base no conhecimento prévio, e pressupostos sobre as incertezas no modelo devem ser feitas. Combinar esta informação define a estrutura do modelo. Ainda assim, o modelo pode conter alguns coeficientes desconhecidos ou incompletamente conhecidos, os parâmetros do modelo, que em caso de comportamento variável no tempo definem um conjunto adicional de variáveis do sistema. Para uma introdução geral à modelagem matemática, referimo-nos, por exemplo, a Sinha e a Kuszta (1983), a Willems and Polderman (1998) e a Zeigler et al. (2000).
Neste capítulo, será descrita a modelização de um sistema aquapônico (alimentar) de produção (PA). A Figura 11.1 mostra um exemplo típico de um sistema AP, ou seja, o chamado sistema aquaponico de três ciclos dissociado. Como resultado da modelagem de princípios básicos, usando leis de conservação e relações constitutivas, modelos matemáticos de todos os tipos de sistemas AP são geralmente representados como um conjunto de equações diferenciais ordinárias ou parciais. Estes modelos matemáticos são comumente usados para design, estimativa e controle. Em cada um desses objetivos específicos de modelação, distinguimos entre análise e síntese.
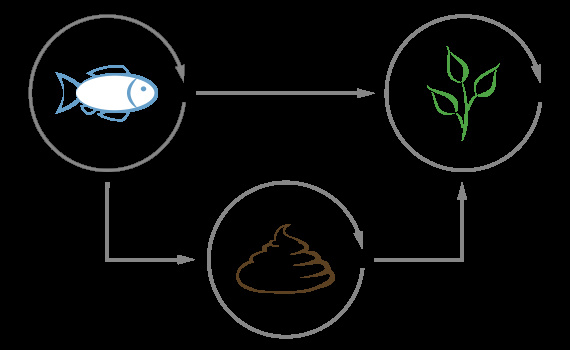
Fig. 11.1 Sistema aquaponico de três ciclos desacoplado com subsistemas RAS, hidropônico e remineralização. (Goddek, 2017)
O contorno do capítulo é o seguinte. Em Seção 11.1 são apresentados alguns antecedentes sobre a modelagem de sistemas matemáticos. As secções 11.2, 11.3, 11.4 e 11.5 descrevem a modelação de um sistema aquícola recirculante (RAS), digestão anaeróbica, estufa hidropônica (HP) e um sistema AP multi-loop, respectivamente. Em Seção 11.6 ferramentas de modelização são introduzidas e ilustradas com alguns exemplos. O capítulo termina com uma seção de Discussão e Conclusões.
-
11.2 Fundo
Original publication · Publicado pela primeira vez no FarmHub Learn · Aquaponics Food Production Systems
Muitas definições de um sistema estão disponíveis, variando de descrições soltas a formulações matemáticas rigorosas. No que se segue, um sistema é considerado um objeto no qual diferentes variáveis interagem em todos os tipos de escalas de tempo e espaço e que produz sinais observáveis. Esses tipos de sistemas também são chamados de sistemas abertos. Uma representação gráfica de um sistema aberto geral (S) com sinais de entrada e saída com valor vetorial é representada na Fig. 11.2. Assim, várias entradas ou saídas são combinadas em uma única seta. Assim, as variáveis do sistema podem ser escalares ou vetores. Além disso, eles podem ser funções contínuas ou discretas do tempo. É importante ressaltar que as setas na Fig. 11.2 representam fluxos de sinal e, portanto, não necessariamente fluxos físicos.
Também é possível conectar sistemas a uma rede, como em um sistema AP, com caminhos paralelos, feedback e feedforward. A Figura 11.3 apresenta um exemplo dessa rede.
Para análise e síntese de controlador/gerenciamento, muitas vezes é conveniente conectar o sistema (S) ao controlador ou estratégia de gerenciamento (C), como na Fig. 11.4. Na maioria das vezes, a entrada para o controlador ou estratégia de gestão é o sinal de direção externo do sistema controlado, e a saída do sistema é o comportamento do sistema observado.
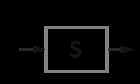
Fig. 11.2 Representação geral do sistema aberto
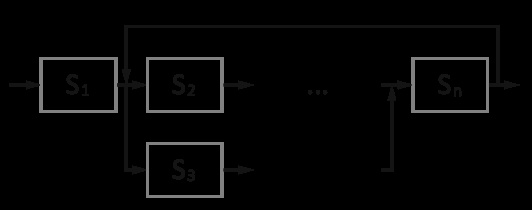
Fig. 11.3 Representação de rede de sistema aberto
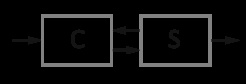
Fig. 11.4 Sistema controlado
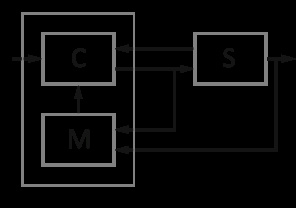
Fig. 11.5 Sistema controlado baseado em modelo
Finalmente, para enfatizar a incorporação de um modelo matemático (M) na estrutura do controlador ou estratégia de gerenciamento, a seguinte representação do sistema controlado baseado em modelo é introduzida (Fig. 11.5).
Por enquanto, basta apresentar a representação do diagrama de blocos. Nas seções subsequentes, a modelagem de sistemas AP será elaborada com mais detalhes.
Na teoria dos sistemas, a estrutura básica de um modelo matemático (M) é representada esquematicamente como na Fig. 11.6. Na Fig. 11.6, x é o chamado estado do sistema, u a entrada de controle, y a saída, w a entrada de perturbação e v o ruído de saída. Em geral, cada uma dessas variáveis tem valor vetorial.
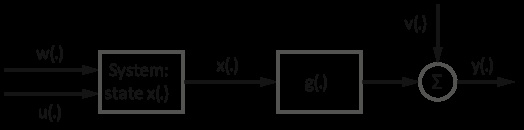
Fig. 11.6 Estrutura básica do modelo matemático (M)
Em tempo contínuo, o seguinte conjunto de equações descreve um modelo dinâmico geral (M), com vetor de parâmetro p, no que é chamado de forma de espaço de estado:
$\ frac {dx (t)} {dt} =f (t, x (t), u (t), w (t); p),\\ x (0) =x_0 $ (11.1)
$y (t) =g (t, x (t), u (t); p) +v (t),\ t\ em\ Re^+$ (11.1)
onde a primeira equação descreve a dinâmica não-linear e variável no tempo do sistema em termos de variáveis de estado (x) e a segunda expressa a relação algébrica entre u, x e y. Esta representação de modelo de estado espacial tem sido um ponto de partida para muitas implementações de software para design, controle e estimativa. No que se segue, no entanto, apenas modelos determinísticos, portanto sem os vetores estocásticos v e w, são considerados. Vamos ilustrar esta teoria sobre um sistema de tanques de peixes.
**Exemplo: Sistema de Tanques de Peixe
Considere o seguinte aquário, que é um exemplo típico do sistema geral apresentado na Fig. 11.7.
Vamos começar com a especificação do nosso conhecimento prévio dos mecanismos internos do sistema. O seguinte balanço de massa pode ser definido em termos do volume do tanque de armazenamento (V), também chamado de estado do sistema, entradas _u (t) _ e saídas _y (t) _:
$\ frac {dV (t)} {dt} =u (t) -y (t) $ (11.2)
Suponha que haja um controlador de nível (LC) que mantenha a saída proporcional ao volume no tanque. Isso pode ser aplicado através da implementação da seguinte lei de controle proporcional,
$Y (t) =KV (t) $ (11.3)
com K uma constante real e positiva. Assim, após substituir Eq. (11.3) em (11.2), obtém-se a seguinte equação diferencial
$\ frac {dV (t)} {dt} +KV (t) =n (t) $ (11.4)
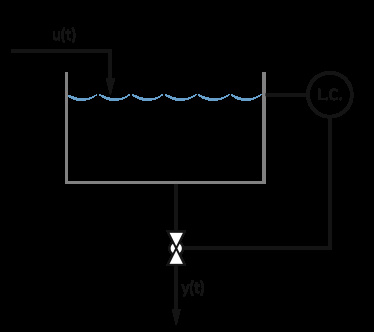
Fig. 11.7 Tanque de peixes com fluxo controlado por volume usando controlador de nível (LC)
Para esta equação diferencial linear específica com coeficientes constantes, existe uma solução analítica e é dada por
$y (t) =y (0) e^ {-Kt} +\ int^t_0ke^ {-K (t-s)} u (s) ds$ (11.5)
sob a suposição de que u (t) = 0 para t\ 0. A partir deste exemplo, é claro que a aplicação dos primeiros princípios — a conservação da massa neste caso — conduz diretamente a uma equação diferencial ordinária. No formato de espaço de estado, o modelo pode ser representado como
$\ frac {dx (t)} {dt} =-Kx (t) +u (t) $ (11.6)
$\ y (t) =Kx (t) $ (11.6)
Com $x$ volume, $u$ entrada de fluxo e $K$ ganho de controlador. Assim, em termos do Eq. (11.1), $f (t, x (t), u (t); p)\ equiv -Kx (t) + u (t) $ e $g (t), u (t); p)\ equiv Kx (t) $.
Para dois tanques de peixes controlados por volume em série com volume V<sub1/sub e VSub2/sub, e ganho de controlador KSub1/sub e KSub2/sub, respectivamente, podem ser formulados dois balanços de massa, ou seja
$\ frac {dv_1 (t)} {dt} =-K_1V_1 (t) +u (t) $ (11.7)
$\ frac {dv_2 (t)} {dt} =K_1V_1 (t) -K_2V_2 (t) $ (11.7)
Na forma de matriz vetorial, e para a saída física y (t), podemos escrever:
$\ frac {d} {dt}\ begin {bmatrix} V_1 (t)\ V_2 (t)\ end {bmatrix} =\ begin {bmatrix} -K_1 & 0\ K_1 & -K_2\ end {bmatrix}\ begin {bmatrix} V_1 (t)\\ V_2 (t)\ end {bmatrix} bmatrix} 1\ 0\ end {bmatrix} u (t) $ (11.8)
$y (t) =K_2V_2 (t) $ (11,8)
E assim, com $x_1=v_1, x_2=v_2:f (t, x (t), u (t); p)\ equiv\ begin {bmatrix} -k_1x_1 (t) +u (t)\ K_1x_1 (t) -k_2x_2 (t)\ end {bmatrix} $ e $g (t, (t), u (t); p)\ equiv K_2x_2 (t) $.
Nas próximas seções, cada um dos subsistemas do sistema AP (Fig. 11.1) será descrito com mais detalhes.
11.3 Modelação RAS
Original publication · Publicado pela primeira vez no FarmHub Learn · Aquaponics Food Production Systems
A aquicultura mundial atingiu 50 milhões de toneladas em 2014 (FAO 2016). Dada a crescente população humana, há uma crescente demanda por proteínas de peixe. O crescimento sustentável da aquicultura requer novas tecnologias (bio), tais como sistemas de aquicultura de recirculação (RAS). As RAS têm um baixo consumo de água (Orellana 2014) e permitem a reciclagem de produtos excretores (Waller et al. 2015). As RAS fornecem condições de vida adequadas para os peixes, como resultado de um tratamento de água em várias etapas, como separação de partículas, nitrificação (biofiltração), troca gasosa e controle de temperatura. Os produtos dissolvidos e excretores de partículas podem ser transferidos para tratamento secundário, como plantas (Waller et al. 2015) ou produção de algas em sistemas integrados de aquaagricultura (IAAC). Os sistemas IAAC são alternativas sustentáveis aos sistemas aquícolas convencionais e, em particular, constituem uma expansão promissora para a RAS. Na RAS, seria necessário circular a água de processo, que tem implicações especiais para a tecnologia de processo tanto no RAS como no sistema de algas/instalações. Para combinar a RAS e o sistema algas/planta, uma compreensão profunda da interação entre peixes e tratamento da água é pré-requisito e pode ser derivada da modelação dinâmica. O metabolismo dos peixes segue um padrão diário que é bem representado pela taxa de evacuação gástrica (Richie et al. 2004). Separação de partículas, biofiltração e troca gasosa são submetidas ao mesmo padrão. Para efeitos de concepção, a caracterização dos componentes básicos de um sistema de tratamento RAS deve ser investigada através de modelos de simulação. Estes modelos de simulação são altamente complexos. Os modelos numéricos disponíveis para RAS capturam apenas uma pequena parte da complexidade e consideram apenas uma parte dos componentes com mecanismos correspondentes. Assim, neste capítulo, apenas uma pequena parte de um modelo RAS dinâmico será apresentada, ou seja, a biofiltração baseada em nitrificação. A conversão de amoníaco tóxico em nitrato é um processo central no processo de tratamento de água em RAS. A seguir, será demonstrada a modelização dinâmica do balanço de massas da excreção de amoníaco de peixes e a conversão de amoníaco em nitrato, bem como a transferência do nutriente para um sistema aquapónico. Com isso, é possível não só projetar um RAS, mas também integrar a produção de peixe em um sistema IAAC baseado em parâmetros válidos.
11.3.1 Modelo Dinâmico de Biofiltração Baseada em Nitrificação em RAS
O modelo é subdividido em um modelo de peixe para o robalo europeu, Dicentrarchus labrax, um modelo que descreve a excreção de amoníaco dependente do tempo, e um modelo de nitrificação (Fig. 11.8). O padrão de excreção de peixes é introduzido no modelo através do vetor de entrada u (Eq. 11.15), semelhante à abordagem utilizada por Wik et al. (2009). A complexidade do modelo de peixe é mantida baixa para ser capaz de explicar o seu método de implementação. No entanto, é apresentada uma breve introdução na modelização dos peixes na secção 11.3.2. Quatro aspectos básicos importantes para descrever o fluxo de nutrientes em RAS (Badiola et al. 2012) são:
- O fluxo Q, que é o fluxo total de água de processo por unidade de tempo através do RAS, determina a transferência de massa de todas as matérias dissolvidas e particuladas, incluindo amoníaco e nitrato.
- A excreção do amoníaco de entrada de peixe para a água de processo RAS e é representada pelo produto da matriz B e do vetor u (Eq. 11.15).
- A conversão de amoníaco em nitrato, ocorrida na nitrificação, é representada no vetor de nitrificação n (Eq. 11.15).
- A transferência de nutrientes do RAS para um sistema HP conectado é representada em vectoru (Eq. 11.15). Outros aspectos importantes da cadeia de processos RAS, tais como a remoção de sólidos, a concentração de oxigénio dissolvido e a concentração de dióxido de carbono, não são aqui considerados. Dicas para modelar estes podem ser encontradas em Seitas. 3.1.1 e 3.2.2 deste livro.
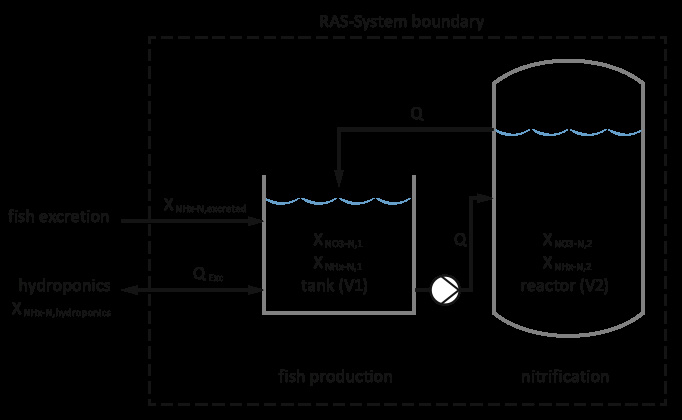
Fig. 11.8 Configuração RAS com tanque de peixes, bomba, reator de nitrificação e transferência de água para o sistema hidropônico
11.3.2 Peixe
Uma variedade de modelos na literatura científica preveem o crescimento e a ingestão de alimentos de diferentes espécies aquáticas. Os modelos descrevem o crescimento como ganho de peso por dia, como incremento percentual de crescimento ou como taxa de crescimento específica com base em um modelo de crescimento exponencial. Os modelos geralmente são válidos para estágios específicos da vida. O consumo de ração, a biomassa e o gênero estão influenciando a produção do modelo, bem como as condições ambientais, como temperatura, nível de oxigênio e concentração de nutrientes (Lugert et al. 2014). Pesquisa cuidadosa é necessária para identificar o modelo correto usado para a aplicação específica. RAS comerciais, que consiste em várias coortes de peixes em diferentes estágios da vida, exigem a modelação para incorporar coortes no modelo (Fig. 8.6) (Halamachi e Simon 2005). O fluxo de massa excretor para o robalo europeu (Dicentrarchus labrax) pode ser estimado com algoritmos publicados por Lupatsch e Kissil (1998).
Neste caso, estima-se o fluxo líquido de azoto para a água de processo a partir da composição alimentar (teor de proteínas), da quantidade de alimento dado e do azoto retido nos tecidos corporais através do crescimento (aumento de peso) dos peixes. As perdas fecais de azoto não estão incluídas no modelo, mas a taxa de excreção é corrigida assumindo uma percentagem de 0,25 e 0,75 da excreção de azoto para perda fecal e excreção de amoníaco, respectivamente. A entrada de azoto através da alimentação dos peixes é estimada a partir do teor de proteínas e do teor médio relativo de azoto das proteínas, que se pressupõe ser de 0,16. O teor de proteína do tecido de robalo é relatado em cerca de 0,17 g de proteínas gsup-1/sup (Lupatsch et al. 2003). Para um peixe que ganha peso corporal consumindo uma determinada quantidade de alimento, a excreção de azoto (xSubn, excretado/sub, g) pode ser calculada a partir da Eq. (11.9). Supõe-se que a ração (XSubfeed/Sub) contém 0,5 g de proteína gsup-1/sup peixe. Parte-se ainda do princípio de que a taxa de conversão dos alimentos para animais é igual a 1, ou seja, 1 g de consumo de alimentos para animais resulta em 1 g de aumento do peso corporal (Fig. 11.9):
$ X_ {N, excretado} = X_ {feed} * 0,16 * 0,75 * (0,5 - 0,17) $ (11,9)
O amoníaco dissolvido excretado através das brânquias de peixes segue um padrão diário semelhante ao da taxa de evacuação gástrica (GER). O GER é descrito para água fria e peixes de água morna por He e Wurtsbaugh (1993) e Richie et al. (2004), respectivamente. O padrão excretor pode ser bem simulado com uma função seno. A excreção de amoníaco pode ser calculada a partir da Eq. (11.10):
$X_ {NH_x-N, excretado} =X_ {N, excretado} [g] * (sin (\ frac {2\ pi} {1440}) +1) $ (11.10)
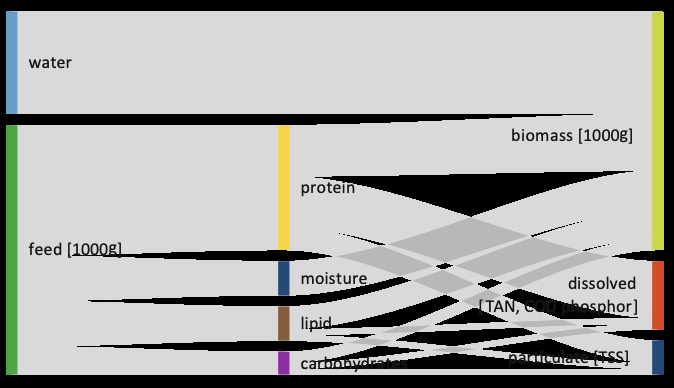
Fig. 11.9 Representação dos fluxos de massa (gráfico Sankey) dos ingredientes alimentares e dos produtos excretores para um peixe que consome 1000 g de alimento, assumindo uma RCF de 1
11.3.3 RAS
Uma variedade de modelos que descrevem RAS com diferentes níveis de complexidade pode ser encontrada na literatura. Modelos muito complexos estão disponíveis para aspectos específicos, como a interação de gases solúveis e alcalinidade (Colt 2013) ou a descrição da comunidade microbiana (Henze et al. 2002). Modelos mais práticos para o balanço de massa de RAS são publicados por Sánchez-Romero et al. (2016), Pagand et al. (2000), Wik et al. (2009) e Weatherley et al. (1993). Todos os modelos fornecem informações sobre fluxos de massa excretora e/ou fluxos de nutrientes em dependência do tempo e localização na cadeia de processos. Tais modelos fornecem uma base para a simulação do acoplamento de RAS e HP. A matéria dissolvida mais importante na modelação de RAS é o nitrogênio de amônia total (TAN). Além da TAN, a demanda química (CQO) e biológica (CBO) de oxigênio, os sólidos totais suspensos (SST) e a concentração de oxigênio dissolvido precisam ser considerados. No entanto, diferentes notações na literatura científica tornam às vezes difícil ler, converter e implementar a informação em modelos. A seguir, serão utilizadas as notações recomendadas por Corominas et al. (2010). O TAN será reescrito como xSubNHX-N/Sub e o azoto nitrato será expresso como XSubNO3-N/Sub.
11.3.4 Exemplo de modelo
O modelo descrito a seguir só é válido para o RAS apresentado na Fig. 11.8. Outras cadeias de processos possíveis para RAS são discutidas em Seção 11.3 deste capítulo. Para a representação matemática dos sistemas físicos, foram feitas as seguintes suposições:
a) Considera-se que a densidade da água é constante.
b) Presume-se que o reservatório e o reactor estão bem misturados.
c) Considera-se que o volume do reservatório e do reactor é constante.
(d) O fluxo de água do processo é sempre superior a zero.
A hipótese de um tanque e um reator bem misturados leva a uma equação de balanço de massa para o reator de tanque agitado contínuo (CSTR), como descrito por Drayer e Howard (2014) no Eq. (11.11). Deve-se mencionar que os processos difusos geralmente podem ser negligenciados nos cálculos RAS devido a uma taxa de fluxo de água de processo tipicamente alta. Para um RAS de vários tanques, o seguinte detém:
Acumulação = Fluxo de entrada - saída + geração - redução
$v_i {\ dot x} I=Q {in} x_ {i, in} -Q_ {out} x_ {i, out} +x_ {i, gen} -x_ {i, vermelho} $ (11.1)
$j=\ begin {casos} n, & i=1\ i-1, & i\ ne1 \ end {cases} $ (11.1)
Na equação acima dada $n $ representa o número de tanques no Sistema, $ {\ dot x} i $ é a mudança de concentração de um dado substrato x em um volume dado por $V {i.} $. O fluxo de água do processo para o tanque ou reator é representado por $Q {in} $. $V_I$ é o volume do componente onde o fluxo de água do processo $Q_ {in} $ está entrando. O fluxo de água do processo $Q_ {in} $ veio de um componente com o volume $V_J $.
A conversão de XSubnhx-N/Sub em XsubNO3-N/Sub em biofiltros nitrificantes ocorre na área de superfície A [msup2/sup] disponível nos bio-portadores do reactor de nitrificação (Rusten 2006). A superfície bioativa disponível na nitrificação é calculada multiplicando o volume do reator pela superfície ativa específica do volume dos bio-portadores ASUBs/sub [msup2/sup]. Calcula-se a superfície bioactiva total (Eq. 11.12) a partir do enchimento relativo fsubbc/sub do reactor de nitrificação que normalmente é de 0,6 (para mais pormenores, ver Rusten 2006).
A = vsubnitrificação/Sub ASUBS/Sub fsubbc/sub (11.2)
A conversão microbiana diária total μsubmax/sub g dsup-1/sup foi calculada multiplicando a taxa específica de conversão TAN (nitrificação), taxa de subconversão NHx/Sub [g msup-2/sup dsup-1/sup], com a área de superfície ativa total, A [msup2/sup], dos bio-portadores. Valores para conversão de TAN em diferentes tipos de biofiltros nitrificantes podem ser encontrados na literatura. Para os reatores de biofilme de leito móvel (MBBR), os valores são relatados por Rusten (2006). Esta taxa é válida para certas condições do processo, e presume-se que o biofilme da bactéria está totalmente desenvolvido ao longo do todo.
$ μ_ {mm} = a^*NHX_ {taxa de conversão} $ (11.13)
A massa total de NHsubx/Sub convertida em Nosub3/sub-N pode subsequentemente ser calculada com uma cinética de Monod (Eq. 11.14). Para tal, é necessária a concentração de NHsubx-N/sub, Xsubnhx-N,2/sub [g 1sup-1/sup], no volume do reactor de nitrificação (MBBR) VSub2/Sub.
$\ frac {d} {dt} X_ {NH_x-N,2} =-\ mu_ {max} * (\ frac {X_ {NH_X-N,2}} {K_S+X_ {NH_ {X-N,2}}}) *\ frac1 {V_2} $ com $K_s=\ frac {\ mu_ {max}}} $ (11.4)
$\ frac {d} {dt} X_ {N0_x-N,2} =+\ mu_ {max} * (\ frac {X_ {NH_X-N,2}} {K_s+X_ {NH_ {X-N,2}}}) *\ frac1 {V_2} $ com $k_s=\ frac {\ mu_ {max}}} $ (11.4)
Dado Eqs. (11.9, 11.10, 11.11, 11.12, 11.13 e 11.14), o seguinte modelo de statespace (combinando peixe-nitrificação) resultados
[\ frac {dx (t)} {dt} =A^*X+B^*U+N]
$X=\ begin {bmatrix} X_ {NH_ {x} -N,1}\ X_ {NH_ {x} -N,2}\ X_ {NO_ {3} -N,1}\ X_ {NO_ {3} -N,2}\ end {bmatrix} $ $u=\ begin {bmatrix} X_ {NH_x-n, texto {excretado}}\ 0\ {Q_ {Exc}} ^ {*} X_ {NH_x-N,\ text {hidroponia}}\ 0\ end {bmatrix} $ $n=\ begin {bmatrix} 0\ -\ frac {\ mu_ {max} * [X] _2} {k_s+ [X] 2} * {V_2}\ 0\ +\ frac {\ mu {max} * [X] _2} {K _s+ [X] _2} *\ frac1 {V_2}\ end {bmatrix} $
$A=\ begin {bmatrix} -\ frac {Q} {V_1} -\ frac {Q_ {Exc}} {V_1} &\ frac {Q} {V_1} &0&0\\ frac {Q} {V_2} &-\ frac {Q} {V_2} &0&0\ 0 &0&0&-\ frac Q} {V_1} -\ frac {Q_ {Exc}} {V_1} &\ frac {Q} {V_1}\ 0&0&\ frac {Q} {V_2} & -\ frac {Q} {V_1}\ end {bmatrix} $
$\ vezes B =\ begin {bmatrix}\ frac1 {V_1} &0&0&0\ 0&\ frac1 {V_2} &0&0\ 0&0&\ frac1 {V_1} &0\ 0&0&0&\ frac {1} {V_2}\ end {bmatrix} $
(11.5)
Exemplo
Neste exemplo, um RAS teórico com V_reator = 1300 l e V_Tank = 6000 l é simulado.
Todas as simulações tiveram uma alimentação diária de 2000 g/dia com 500 g de proteína/kg de ração (Eq. 11.8). A excreção diária de TAN foi assumida como sendo uma curva senoidal (Eq. 11.9). A superfície ativa dos bio-portadores ASUBs/Sub é de 300 [msup2/sup msup-3/sup], e o enchimento relativo do reator fsubbc/sub é de 0,6. A taxa específica de conversão TAN, a taxa de subconversão NHX/Sub, é de 1,2 [g msup-2 -/supd] e o biofilme deve estar totalmente desenvolvido (Eqs. 11.11 e 11.12). A representação estado-espacial (Eq. 11.14) foi implementada no MATLAB Simulink. O Exemplo mostra a importância do fluxo de massa para concentrações de nutrientes em sistemas acoplados (Fig. 11.10 e 11.11).
11.4 Modelação da Digestão Anaeróbica
Original publication · Publicado pela primeira vez no FarmHub Learn · Aquaponics Food Production Systems
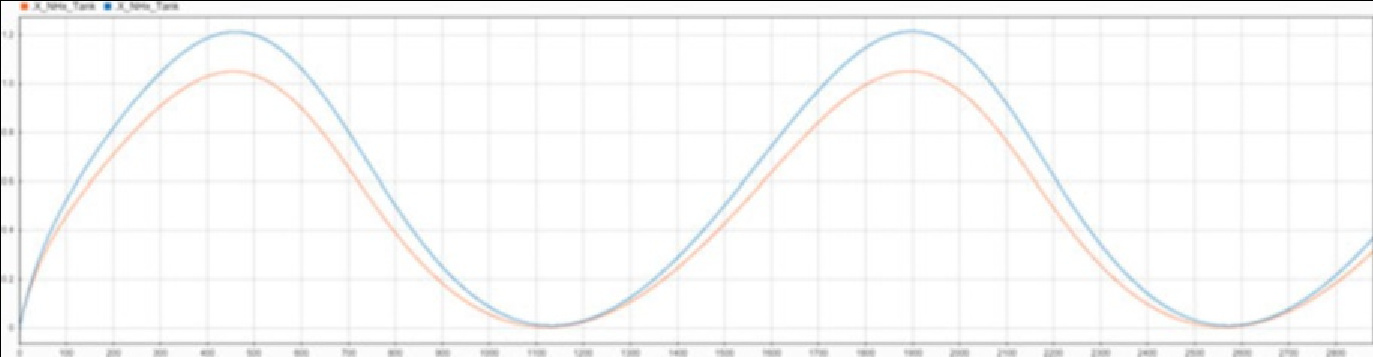
Fig. 11.10 Simulação de TAN (XSubnHx-N,1/Sub) em [mg/l] durante 2 dias = 2880 min com Q = 300 l/min (azul) e Q = 200 l/min (laranja)
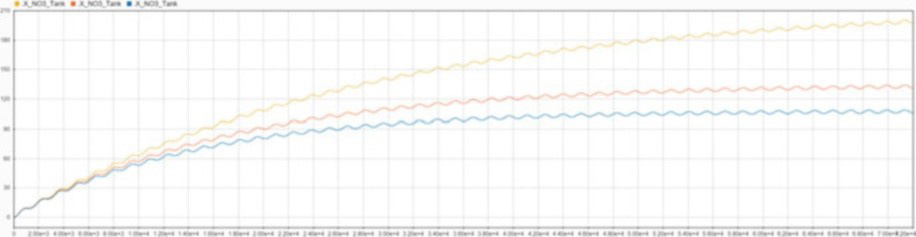
Fig. 11.11 Simulação de nitrato-N (XSubNO3-N,1/Sub) em [mg/l] durante 50 dias = 72.000 min com Qsubexc/sub = 300 l/dia (amarelo), Qsubexc/sub = 480 l/dia (laranja) e Qsubexc/sub = 600 l/dia (azul)
A digestão anaeróbica (DA) do material orgânico é um processo que envolve as etapas sequenciais da hidrólise, acidogênese, acetogênese e metanogênese (Batstone et al. 2002). A digestão anaeróbica de uma mistura de proteínas, carboidratos e lipídios é visualizada na Figura 11.11. Na maioria das vezes, a hidrólise é considerada como o passo limitador da taxa na digestão anaeróbica da matéria orgânica complexa (Pavlostathis e GiralDoGomez 1991). Assim, aumentar a taxa de reação de hidrólise provavelmente levará a uma maior taxa de reação de digestão anaeróbica. No entanto, aumentar as taxas de reação precisa de uma maior compreensão do processo relacionado. Uma maior compreensão pode ser obtida através de experimentação e/ou modelagem matemática. Como há muitos fatores que influenciam, por exemplo, o processo de hidrólise, tais como concentração de amônia; temperatura; composição do substrato; tamanho da partícula; pH; intermediários; grau de hidrólise; ou seja, o potencial do conteúdo hidrolisável; e tempo de residência, é quase impossível avaliar o total efeito dos fatores na taxa de reação de hidrólise através da experimentação. A modelagem matemática poderia, portanto, ser uma alternativa, mas como resultado de todas as incertezas na formulação do modelo, coeficientes de taxa e condições iniciais, não se pode esperar respostas únicas. Mas, uma estrutura de modelação matemática permitiria análises de sensibilidade e incerteza para facilitar o processo de modelação. Como mencionado anteriormente, a hidrólise é apenas um dos passos na digestão anaeróbica. Consequentemente, a compreensão e otimização do processo completo de digestão anaeróbica precisa de conexões da hidrólise aos outros processos que ocorrem durante a digestão anaeróbica e interações entre todas essas etapas.
O conhecido e amplamente utilizado ADM1 (modelo de digestão anaeróbica\ #1) é um modelo estruturado que inclui etapas de desintegração e hidrólise, acidogênese, acetogênese e metanogênese. A desintegração e a hidrólise são duas etapas extracelulares. Na etapa de desintegração, os substratos de partículas compósitas são convertidos em material inerte, carboidratos particulados, proteínas e lipídios. Posteriormente, a etapa de hidrólise enzimática decompõe as partículas de hidratos de carbono, proteínas e lípidos em monossacarídeos, aminoácidos e ácidos gordos de cadeia longa (LCFA), respectivamente (Batstone et al. 2002) (ver Fig. 11.12).
ADM1 é um modelo matemático que descreve os processos biológicos e os processos físico-químicos da digestão anaeróbica como um conjunto de equações diferenciais e algébricas (DAE). O modelo contém 26 variáveis de estado dinâmico em termos de concentrações, 19 processos cinéticos bioquímicos, 3 processos cinéticos de transferência gas-líquido e 8 variáveis algébricas implícitas para cada unidade de processo. Como alternativa, Galí et al. (2009) descreveram o processo anaeróbio como um conjunto de equações diferenciais com 32 variáveis de estado dinâmico em termos de concentrações e 6 processos cinéticos ácido-base adicionais por unidade de processo. Para uma visão geral da modelação dos processos de digestão anaeróbia, referimo-nos a Ficara et al. (2012). No entanto, no que se segue e para alguns primeiros insights sobre o processo AD, apresentaremos um modelo simples de equilíbrio nutricional de AD em um reator de lote de sequenciamento (SBR).
11.4.1 Mineralização de nutrientes
A mineralização de nutrientes pode ser calculada utilizando a seguinte equação (Delaide et al. 2018):
$NR=100%\ vezes (\ frac {DN_ {out} -DN {in}} {TN_ {in} -DN_ {in}}) $ (11.15a)
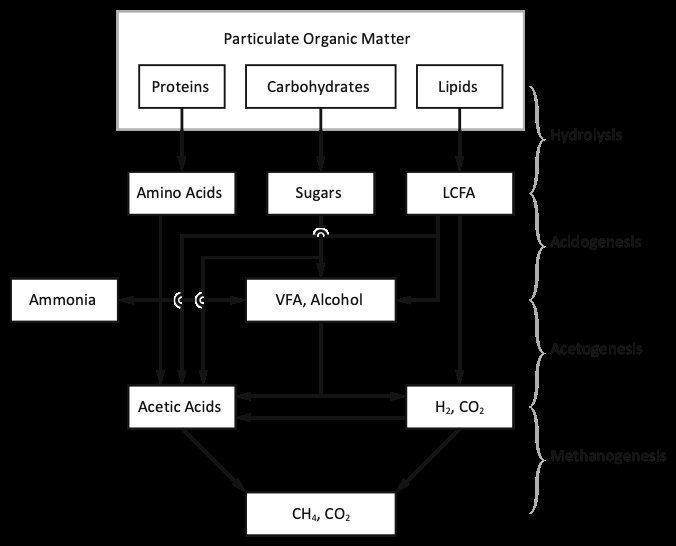
Fig. 11.12 Um esquema simplificado para a digestão anaeróbica de partículas orgânicas complexas (baseado em El-Mashad 2003)
onde NR é a recuperação de nutrientes no final do experimento em porcentagem, DNsubout/sub é a massa total de nutriente dissolvido na saída, DNsubin/sub é a massa total de nutriente dissolvido na entrada e TNsubin/sub é a massa total de nutrientes dissolvidos mais não dissolvidos no fluxo de entrada (ver também Fig. 11, 13).
11.4.2 Redução Orgânica
O desempenho de redução orgânica do reator pode ser calculado utilizando a seguinte equação:
$η_ {OM} =1-\ frac {\ Delta OM+T_ {OM\ out}} {T_ {OM\ in}} $ (11.15b)
em que ΔOM é a matéria orgânica (ou seja, CQO, TS, TSS, etc.) no interior do reator no final do experimento menos a do início do experimento, TSUBOM out/sub é a saída OM total e TSUBOM in/sub é a entrada total de OM (ver também Fig. 11.14).
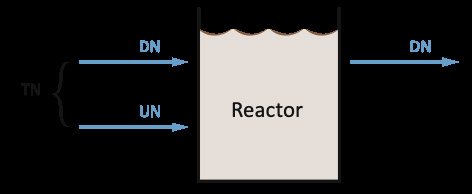
Fig. 11.13 Esquema geral do reator para determinar o potencial de mineralização, onde DN são os nutrientes dissolvidos na água, UN os nutrientes não dissolvidos no lodo (ou seja, TN-DN) e TN os nutrientes totais
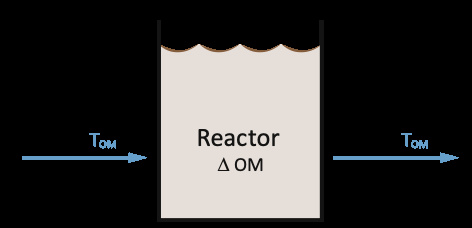
Fig. 11.14 Esquema geral do reator para determinar o potencial de redução de material orgânico, em que Tsubom/Sub é a matéria orgânica total e ΔOM a mudança de matéria orgânica no interior do reator
11.5 Modelação de Estufas HP
Original publication · Publicado pela primeira vez no FarmHub Learn · Aquaponics Food Production Systems
O uso da água das culturas e a absorção de nutrientes são um subsistema central da aquapônica. A parte HP é complexa, uma vez que a absorção pura de água e nutrientes dissolvidos não seguem simplesmente uma relação linear bastante simples, como, por exemplo, o crescimento dos peixes. Para criar um modelo totalmente funcional, é necessário um simulador completo de estufa. Isso envolve sistemas submodelos de física de estufa, incluindo controladores climáticos e biologia de culturas, cobrindo processos interativos com estressores biológicos e físicos.
No entanto, do ponto de vista da HP, o clima de estufa é o principal motor para o sistema aquapônico completo, incluindo, ao lado dos balanços de nutrientes, loops de feedback de calor produzidos pelos peixes e CoSub2/Sub adicional fornecido às plantas, conforme relatado por Körner et al. (2017) (Fig. 11.15).
Neste modelo, a cultura de peixe produz calor através de processos metabólicos. A quantidade de calor produzida pelos peixes é calculada diretamente a partir do consumo de oxigênio que é uma função da temperatura e uma constante para a produção de calor para uma unidade de oxigênio consumida (ou seja, 13608 J gsup-1/sup fish). O calor resultante da degradação da matéria orgânica (Qsubbio/sub), por exemplo, as fezes e os alimentos para animais, está também a contribuir para o equilíbrio térmico. O fornecimento de energia ao sistema de água pode então ser calculado pela produção de calor através do peixe calculado a partir de uma taxa média de consumo de oxigénio (FSUBO2, TWB/Sub). A produção de calor adicional pode então ser calculada pela degradação biológica das fezes (Fig. 11.16).
A produção de cosub2/sub a partir do subsistema aquático (Dsubcosub2/sub/sub, g hsup-1/sup), ou seja, a entrega ao ambiente aéreo (d, g hsup-1/sup), pode ser calculada para a temperatura da água indicada (TsubH2O/sub, K) a partir da entrega de oxigénio ao sistema (Dsubosub2/sub/sub, g hsup-1/sup, g hsup-1/sup) à temperatura da água (tSubH2 O, b/sub, K) e o valor QSub10/sub da respiração dos peixes (Qsub10, R/sub). São utilizadas as seguintes relações:
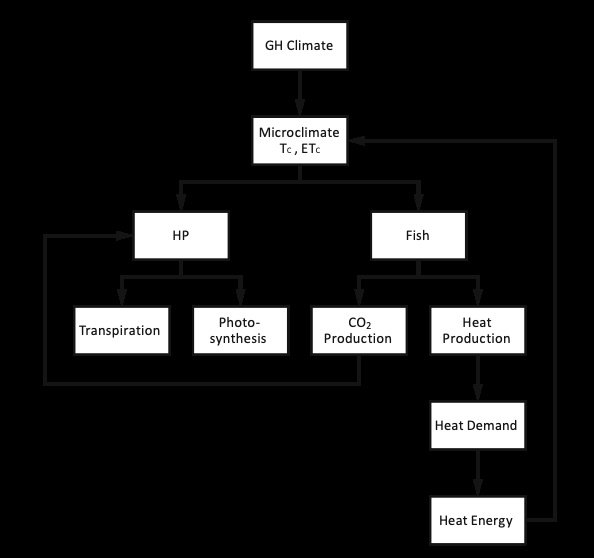
Fig. 11.15 Comportamento simbiótico adicional de um sistema aquapônico
$ d_ {O_2} = f_ {fish}\ f_ {O_2} W_ {O_2} $
$d_ {CO_2} =\ frac {[CO_2]} {[O_2]}\ d_ {O_2}\ Q_ {10, R} (T_ {H2O, b}) /10$ (11.16)
com quantidade de alimento para os peixes (fsubfish/sub, g hsup-1/sup), taxa de consumo de oxigénio à temperatura de base (FSUBO2/sub, kg [OSub2/sub] kgsup-1/sup [feed]), fracção da perda de alimentação WSUBO2/sub (sup-/sup) e balanço de massa de OSub2/sub/COsub2/sub (sup-/sup).
Para calcular a base da aquapônica, ou seja, o fluxo do processo (indicado com setas, →) macroclima estufa → microclima → evapotranspiração → absorção de nutrientes, vários simuladores de estufa que foram desenvolvidos no passado podem ser usados e combinados com aquacultura para um sistema aquapônico . Todos os modelos de estufa incluem um modelo de crescimento de culturas. A qualidade do modelo, no entanto, pode variar muito desde modelos de regressão empírica simples, por exemplo, Boote e Jones (1987), através de modelos determinísticos, por exemplo, Heuvelink (1996), até modelos de plantas estruturais funcionais (FSPM), por exemplo, Buck-Sorlin et al. (2011). Como os modelos atuais de crescimento e desenvolvimento de culturas são imprecisos e têm um poder preditivo limitado (Poorter et al. 2013), os modelos são ocasionalmente empregados no manejo de culturas, mas, em seguida, principalmente para questões de planejamento em simuladores de estufa, por exemplo, Vanthoor (2011) e Körner e Hansen (2011). A precisão da previsão é comprometida por muitas fontes de incerteza, como a modelagem
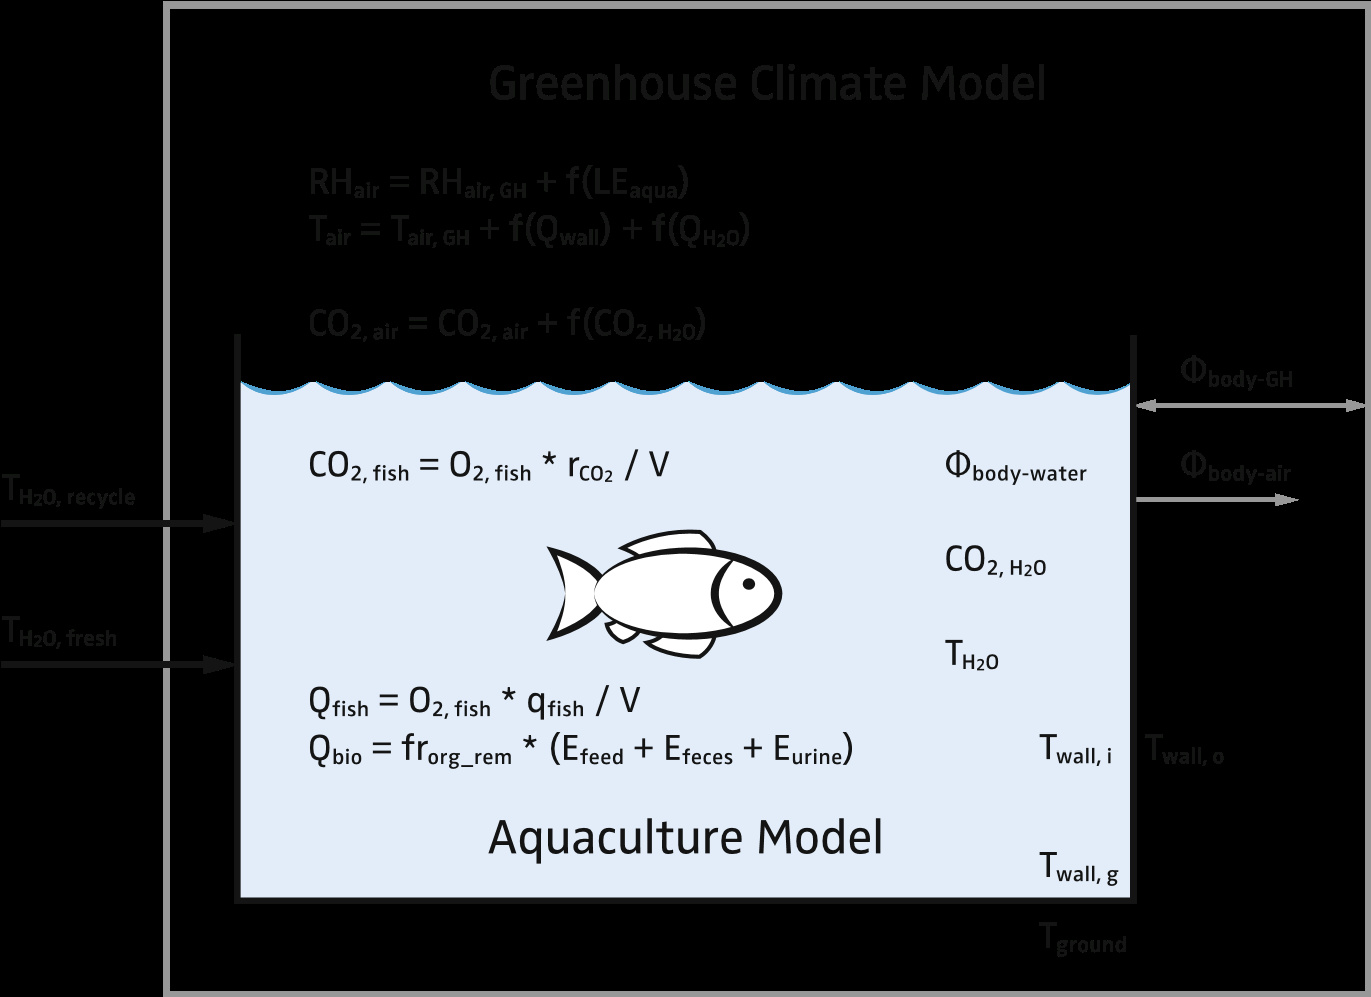
Fig. 11.16 Sistema de aquicultura implementado em estufa com umidade, temperatura e concentrações de CO2 do ar (Rhsubair/Sub Tsubair/Sub, CoSub2, ar/sub), calor de (Q) ambiente de peixe (peixe), degradação biológica (bio) e fluxos de calor ($$), retirados de Körner et al. (2017)
erros, variabilidade entre plantas, variabilidade entre estufas e condições climáticas externas incertas. Quanto às previsões, a precisão também varia fortemente de acordo com a situação. No entanto, a alimentação on-line de informações do sensor no modelo da planta pode tornar as previsões do modelo da planta consideravelmente mais confiáveis e úteis para o produtor.
Simuladores de estufa foram desenvolvidos em e para vários locais, como o Virtual Grower (Frantz et al. 2010), KASPRO (De Zwart 1996), Greenergy Energy Audit Tool (Körner et al. 2008), The Virtual Greenhouse (Körner e Hansen 2011), The Adaptive Greenhouse (Vanthoor 2011), Hortex (Rath 1992, 2011) e o modelo integrado de estufa aquapônica (Goddek e Körner 2019). A nível de investigação, foram desenvolvidos alguns modelos (ou seja, modelos de simulação em combinação com certas tecnologias de efeito estufa) que podem potencialmente ser utilizados para otimizar investimentos e modificações estruturais na unidade de produção e no processo de produção. No entanto, a maioria dos sistemas envolve ambientes de software fechados que só podem ser usados pelos desenvolvedores, e muitos deles só existem em um modo de pesquisa e não têm mais desenvolvimento e aceitação da indústria. No entanto, ainda não existe uma base comum para compartilhamento de modelos e desenvolvimento de modelos colaborativos. Como resultado, a maioria dos modeladores e equipes de modelagem trabalham isoladamente desenvolvendo seus próprios modelos e códigos. Uma lacuna desse procedimento é que modelos de simulação de estufa são desenvolvidos em paralelo em ambientes de pesquisa distintos, que falham no crescimento e desenvolvimento cooperativos.
Todos os simuladores de modelos de estufa HP são uma compilação de submodelos que dependem do objetivo de integrar a interação de plantas e equipamentos de estufa. A diferenciação geral em duas partes nos modelos de estufa e também no controle e planejamento é o ambiente de tiro e raiz. Foram feitas abordagens de modelos bastante complicadas e diferenciadas para o clima de estufa (Bot 1993; de Zwart 1996), e o crescimento das culturas com efeito de estufa tem sido intensivamente modelado nos anos 90 para as principais culturas com efeito de estufa, tais como tomates (Heuvelink 1996), pepino (Marcelis 1994) e alface (Liebig e Alscher 1993). No entanto, para calcular a absorção de água e nutrientes das culturas, é necessário conhecer o microclima, isto é, o clima próximo e sobre os órgãos vegetais (Challa e Bakker 1999). Esta é uma questão em curso na modelagem de estufa, uma vez que as variáveis microclimáticas, como a temperatura central das folhas, são altamente variáveis e dependem de muitos parâmetros e variáveis. Uma versão de um modelo de temperatura foliar usado em um dossel de cultura para temperatura de cultura (Tsubc/Sub) integrado sobre camadas verticais (z) por Körner et al. (2007) integrando fluxos líquidos irradiativos absorvidos (Rsubn, a/sub, WMSUP2/sup), resistências de camada limite e estomatos (rsubb/sub e rsubs/sub, respectivamente, smsup-1/ sup) e o déficit de pressão de vapor na superfície foliar (VPDsubs/Sub, Pa) no dossel é mostrado aqui, isto é,
$Tc (Z) -t_a =\ frac {\ frac {1} {\ rho_ac_p} (r_b (Z) +r_s (Z)) R_ {n, a} (z) -\ frac1 {\ gamma} VPD_s (z)} {1+\ frac {\ delta} {\ gamma} +\ frac {r_s {}} {r_b (z)} +\ frac1 {\ rho_ac_p/4\ sigma Ta^3} (r_b (z) +r_s (z))} $ (11.17)
com temperatura do ar de estufa (Tsuba/sub, K), densidade do ar da pressão de vapor (ρsuba/sub, g msup-2/sup), constante de Stefan-Boltzmann (σ, WMSUP-2/sup KSUP-4/sup), capacidade térmica específica do ar (csubp/sub, J gsup-1/sup KSUP), a constante psicrométrica (γ, KSUP-1/Sup) e a inclinação entre o vapor saturado pressão e temperatura do ar de estufa (δ, Pa KSUP-1/Sup).
A temperatura das folhas é a parte central do modelo de microclima, possui loops de feedback para várias variáveis de entrada e especialmente resistência aos estomatos (muitas vezes também usada como sua condutância recíproca), e o cálculo precisa de várias etapas de simulação para o equilíbrio. Para a HP, como parte do sistema aquapônico, no entanto, modelar fluxos de água e nutrientes é mais importante. Todos os balanços de água e nutrientes em um sistema fechado multi-loop são controlados com base na taxa de evapotranspiração da cultura ETSubc/Sub (Cap. 8). Comumente ETSubc/Sub é calculado como calor latente de evaporação, isto é, em termos de energia (λE, WMSUP2/sup), e pode estar de acordo com a temperatura das folhas expressa em diferentes camadas de dossel
$\ lambda E (z) = (\ frac {\ frac {\ delta} {\ gama} R_ {n, a} (z) +\ frac {\ rho _AC_P} {\ gama} (\ frac1 {r_b (z)} +\ frac1 {\ rho _AC_P/4\ sigma Ta^3} VPD_s (z)} {1+\ frac {\ delta} {\ gama} +\ frac {r_s (z)} {r_b (z)} +\ frac {1} {\ rho _AC_P/4\ sigma Ta^3} (r_s (z) +r_b (z))}) $ (11.18)
Para calcular etsubc/sub (L msup-2/sup), λE precisa ser multiplicado com a constante Lsubw/sub (calor de vaporização da água; 2454 103 J kgsup-1/sup) e o peso específico da água (9,789 kN msup-3/sup a 20° C).
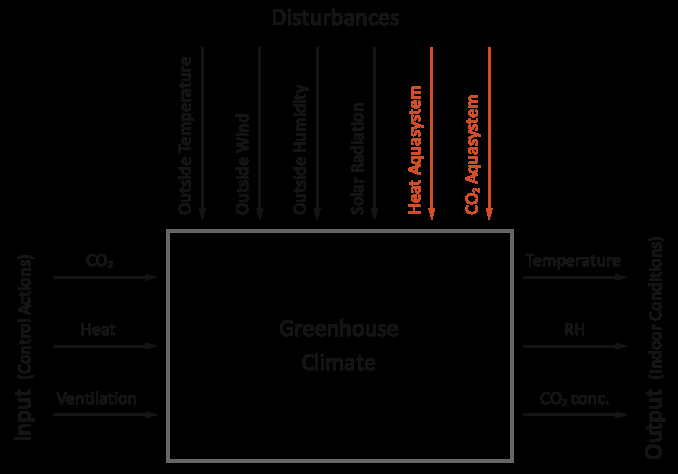
Fig. 11.17 Sistema de entrada-saída de uma estufa
A equação (11.18), no entanto, calcula apenas o fluxo de água através da cultura, enquanto a maneira mais fácil de estimar a absorção de nutrientes é a suposição de que os nutrientes são absorvidos/absorvidos como dissolvidos em água de irrigação e assumindo que não existem resistências químicas, biológicas ou físicas específicas de elementos. Na realidade, a absorção de nutrientes é uma questão altamente complicada. Consequentemente, para manter o equilíbrio, todos os nutrientes absorvidos pela cultura, tal como contidos na solução nutritiva, precisam ser adicionados de volta ao sistema hidropônico (ver Cap. 8). No entanto, Eq. (11.18) apenas calcula o potencial EtC, enquanto níveis de potencial muito altos podem resultar em uma transpiração maior do que as plantas podem lidar, e então a perda de água potencial pode exceder a absorção de água. Para isso, a simples suposição de absorção de nutrientes não é satisfatória. Conforme descrito em Chap. 10, os diferentes nutrientes podem ter estados diferentes e mudar estados com, por exemplo, pH, enquanto a disponibilidade da planta depende fortemente do pH e da relação dos nutrientes com uns aos outros. Além disso, o microbioma na zona radicular desempenha um papel importante, que ainda não é implementado em modelos. Alguns modelos, no entanto, diferenciam entre as vias de phloema e xilema. A grande quantidade de nutrientes, no entanto, não é modelada em detalhes para o equilíbrio de nutrientes aquapônicos e dimensionamento de sistemas, enquanto a maneira mais fácil de estimar a absorção de nutrientes é a suposição de que os nutrientes são absorvidos/absorvidos como dissolvidos em água de irrigação e aplicar a abordagem de cálculo EtC acima explicada .
Para fins de controle, a estufa é geralmente considerada como uma caixa preta, onde as condições climáticas externas determinam as entradas de perturbação, CoSub2/Sub fornecimento, aquecimento e ventilação são as entradas de controle, e o macro e microclima de estufa definem a saída do sistema (Fig. 11.17).
Para controlar a estufa, as ações são direcionadas para minimizar os impactos rápidos dos distúrbios, ou seja, estar à frente das mudanças esperadas pelo controle inteligente. Para isso, são utilizadas ações de controle como feedback e feedforward (Cap. 8). O melhor controle, no entanto, pode ser alcançado ao usar um modelo completo de estufa e combiná-lo com as previsões meteorológicas (Körner e Van Straten, 2008) alcançando um ótimo controle climático de estufa baseado em modelos, conforme estabelecido por Van Ooteghem (2007).
11.6 Modelação Aquapônica Multi-loop
Original publication · Publicado pela primeira vez no FarmHub Learn · Aquaponics Food Production Systems
Os desenhos aquánicos tradicionais compreendem unidades aquacultura e hidropônicas que envolvem a recirculação de água entre ambos os subsistemas (Körner et al. 2017; Graber e Junge 2009). Em tais sistemas aquapônicos de um ciclo, é necessário fazer trocas entre as condições de ambos os subsistemas em termos de pH, temperatura e concentrações de nutrientes, uma vez que peixes e plantas compartilham um ecossistema (Goddek et al. 2015). Em contrapartida, os sistemas aquánicos de ciclo duplo dissociados separam as unidades RAS e hidropônicas umas das outras, criando ecossistemas isolados com vantagens inerentes tanto para plantas como para peixes. Recentemente, tem havido um maior interesse em fechar o ciclo em termos de nutrientes, bem como aumentar a eficiência de entrada-saída. Por esse motivo, remineralização (Goddek 2017; Emerenciano et al. 2017; Goddek et al. 2018; Yogev et al. 2016) e loops de dessalinização (Goddek e Keesman 2018) foram incorporados ao projeto geral do sistema. Tais sistemas são chamados de sistema aquapônico multi-loop dissociado (Goddek et al. 2016).
O dimensionamento dos respectivos subsistemas é fundamental para se dispor de um sistema de verificação e equilíbrio funcional. Para o dimensionamento de sistemas de um loop, geralmente é utilizada uma regra simples, determinando a área de cultivo hidropônica com base na alimentação diária da RAS (Knaus e Palm 2017; Licamele 2009). O maior grau de complexidade dos sistemas multi-loop não permite mais essa abordagem, pois ela vem com riscos inerentes para fazer pressupostos falsos para cada subsistema. Há um corpo crescente de literatura que examina os balanços de massa para sistemas aquapônicos (Körner et al. 2017; Goddek et al. 2016; Reyes Lastiri et al. 2016; Karimanzira et al. 2016). Embora algumas pesquisas tenham sido realizadas no desenvolvimento de modelos numéricos para sistemas aquapônicos de um e multiloop, não existe nenhum estudo único que integre um modelo aquapônico multi-loop com um modelo determinístico de estufa em grande escala complementado. Isso é particularmente relevante para o dimensionamento do sistema, uma vez que o crescimento das plantas e a absorção de nutrientes dependem da localização da transpiração das culturas como principal impulsionador. Em termos concretos, isso significa que o clima dentro de uma estufa - que é altamente dependente das condições climáticas externas - tem um alto impacto no crescimento das plantas devido a fatores ambientais como umidade relativa (HR), irradiação luminosa, temperatura, níveis de dióxido de carbono (COSub2/Sub), etc. que foram incorporados na modelação de microclima de estufa (Körner et al. 2007; Janka et al. 2018).
11.7 Ferramentas de Modelação
Original publication · Publicado pela primeira vez no FarmHub Learn · Aquaponics Food Production Systems
Na aquapônica, fluxogramas ou diagramas de estoque e fluxo (SFD) e diagramas de loop causal (CLDs) são comumente usados para ilustrar a funcionalidade do sistema aquapônico. A seguir, fluxograma e CLDs serão descritos.
11.7.1 Fluxogramas
Para obter uma compreensão sistêmica da aquapônica, os fluxogramas com os componentes mais importantes da aquapônica são uma boa ferramenta para mostrar como o material flui no sistema. Isso pode ajudar, por exemplo, a encontrar componentes ausentes e fluxos desequilibrados e influenciar principalmente os determinantes dos subprocessos. A Figura 11.18 mostra um fluxograma simples em aquapônica. No fluxograma, alimentos e água para peixes são adicionados ao tanque de peixes, onde a alimentação é tomada pelos peixes para crescimento, a água é enriquecida com os resíduos de peixe e a água enriquecida com nutrientes é adicionada ao sistema hidropônico para produzir biomassa vegetal. A partir do fluxograma, um CLD mostrado na Fig. 11.19 pode ser facilmente construído.
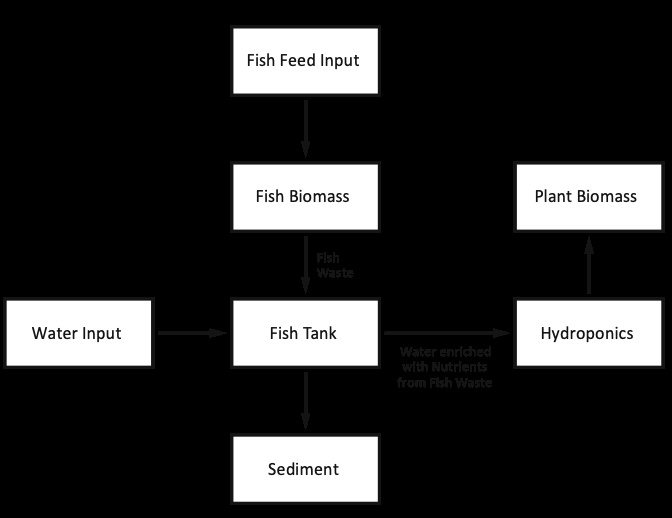
Fig. 11.18 Exemplo de um fluxograma em aquapônica (apenas RAS e troca HP)
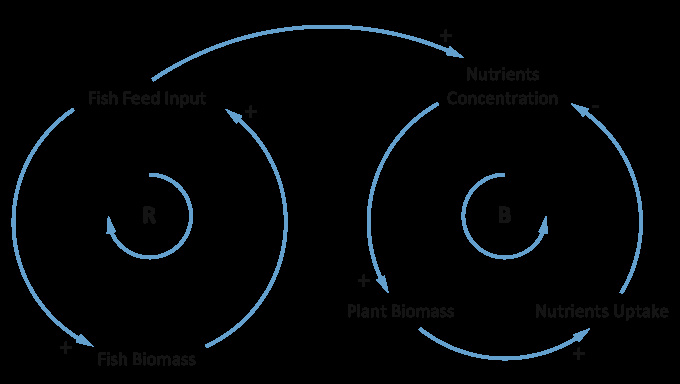
Fig. 11.19 Diagrama de loop causal (CLD) ilustrando exemplos de um reforço e um loop equilibrado dentro de sistemas aquapônicos. O loop de reforço (R) é aquele em que uma ação produz um resultado que influencia mais da mesma ação e, consequentemente, resultando em crescimento ou declínio, onde como um loop de equilíbrio (B) tenta trazer as coisas para um estado desejado e mantê-las lá (por exemplo, regulação da temperatura na casa)
11.7.2 Diagramas de loop causal
Diagramas de loop causal (CLDs) são uma ferramenta para mostrar a estrutura de feedback de um sistema (Sterman 2000). Esses diagramas podem criar uma base para a compreensão de sistemas complexos, visualizando a interconexão de diferentes variáveis dentro de um sistema. Ao desenhar um CLD, as variáveis são representadas como nós. Esses nós são conectados por bordas, que formam uma conexão entre duas variáveis de acordo. A Figura 11.19 mostra que tais arestas podem ser marcadas como positivas ou negativas. Isso depende da relação das variáveis umas com as outras. Quando ambas as variáveis mudam para a mesma direção, então pode-se falar de um elo causal positivo. Um nexo causal negativo causa assim uma mudança em direções opostas. Ao conectar dois nós de ambos os lados, um cria um ciclo fechado que pode ter duas características: (1) um loop reforçador que descreve uma relação causal, criando crescimento exponencial ou colapso dentro do loop ou (2) um loop _balanceamento em que as influências causais mantêm o sistema em um equilíbrio . A Figura 11.19 mostra um exemplo de ambos os tipos de loops.
Vamos ilustrar isso (Fig. 11.20) para o fluxograma da Fig. 11.18.
É óbvio que CLD e SFD são muito úteis para a compreensão do sistema, quando o modelo não requer precisão numérica. Se a precisão numérica for necessária, o processo deve ser estudado mais com um diagrama de ferramentas dinâmicas do sistema (SDTD) e modelado em software de simulação dinâmica do sistema. Por exemplo, o CLD na Fig. 11.20 pode ser aumentado com equações diferenciais para um SDTD (Fig. 11.21).
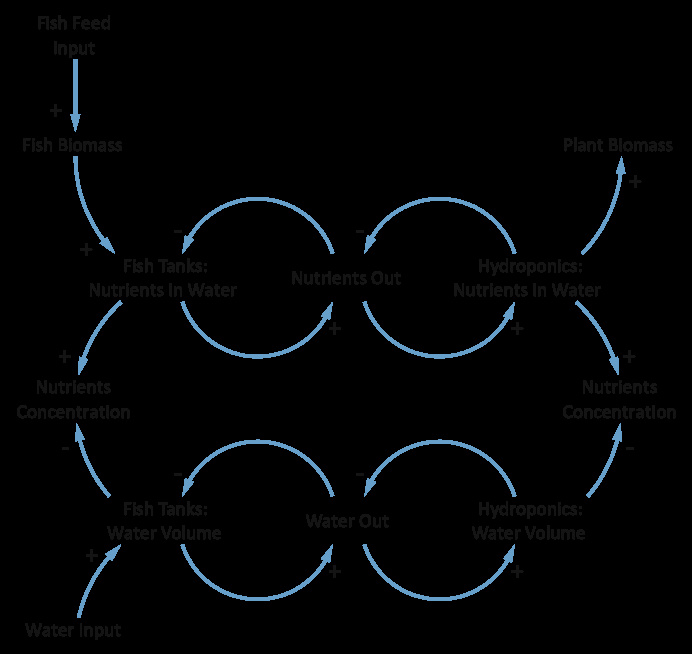
Fig. 11.20 Exemplo CLD para troca de RAS e HP
A partir do SDTD, podemos agora ver como as equações diferenciais para o equilíbrio de nutrientes no tanque se parecem. Sabemos que o fluxo de nutrientes para fora do tanque de peixes (mSubxFout/Sub) deve ser o fluxo de água (QSubFout/Sub) vezes a concentração no fluxo de saída (CSubxF/Sub):
$ M_ {xfout} == C_ {xf} Q_ {fout} $
Assumindo que um tanque agitado dá a concentração de nutrientes do tanque fink para:
$ C_ {xf} = M_ {xf} /V_F $
As equações diferenciais da parte RAS podem ser derivadas para:
$XV_f/dt=Q_ {fin} -Q_ {fout} $
$dm_ {xf} /dt=m_ {xfin} -M_ {xfout} $,
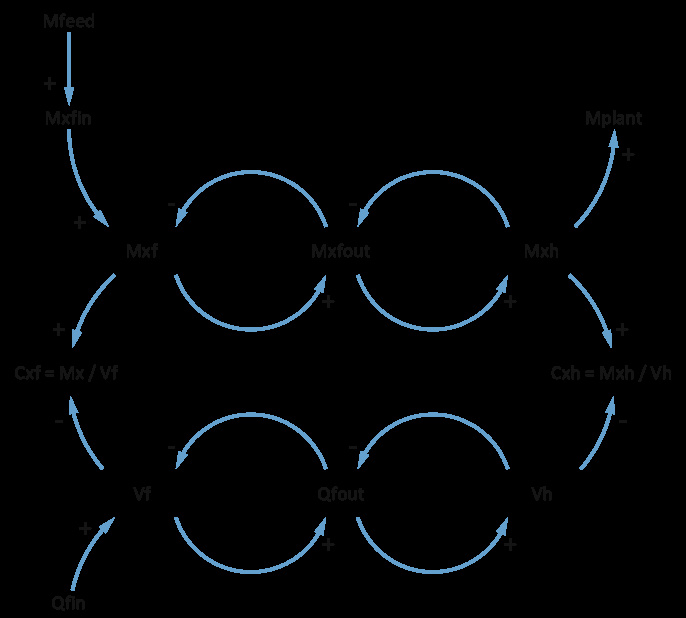
Fig. 11.21 Exemplo de SDTD para troca de RAS e HP
e para a concentração
$dc/dt= (Q_ {fin} C_ {xfin} -Q_ {fout} C_ {xf} /v_f) $
11.7.3 Software
Além de linguagens básicas de computador, como Fortran, C++ e Python, para computação rápida e implementação totalmente específica do usuário, todos os tipos de ferramentas avançadas de software estão disponíveis. Essas ferramentas avançadas de software oferecem uma variedade de ambientes, conceitos e opções. Podemos modelar variáveis de estado, equações diferenciais, conexões e loops. Além disso, podemos usar o modelo para simulações, análise de estabilidade, otimização e controle.
As principais razões para modelar um sistema são compreendê-lo e controlá-lo. Portanto, o modelo ajuda a prever a dinâmica ou o comportamento do sistema. As aplicações de software poderiam permitir-nos realizar três tarefas consequentes: (a) a própria modelação, (b) as simulações do (s) modelo (s) e (c) otimização do modelo e/ou simulação.
O software Mathematica é para análise funcional de problemas matematicamente descritos (Wolfram 1991). O conceito é baseado na abordagem LISP (McCarthy e Levin 1965.), uma linguagem de programação funcional muito eficaz. A sintaxe é razoavelmente simples, e este software é popular em matemática, física e biologia de sistemas. Especialmente, o módulo Ndsolve ajuda a resolver equações diferenciais comuns, traçar a solução e encontrar valores específicos.
Ferramentas muito semelhantes para resolver ODEs são oferecidas pelo Maple. Este software é muito poderoso; entre suas características pertencem solução de problemas de fronteira, soluções exatas e aproximações matemáticas. Copasi (simulador de vias complexas) é uma ferramenta de software para simulação e análise de redes bioquímicas através de equações diferenciais comuns.
SageMath é um sistema livre de software de matemática de código aberto. O software é baseado em Python e facilita a simulação de modelos ODE. Data2Dynamics software é uma coleção de métodos numéricos para modelagem dinâmica quantitativa e é um modelo abrangente e linguagem de descrição de dados. O software permite a análise de previsões de ruído, calibração e incerteza e possui bibliotecas de modelos biológicos.
Provavelmente a melhor linguagem de simulação é Simula (provavelmente não está mais em uso) e Simula 67, considerada no início como um pacote para Algol 60. Estas foram as primeiras linguagens totalmente orientadas a objetos, introduzindo classes, herança, subclasses, coletor de lixo e outros. No início do século XXI, os criadores Ole-Johan Dahl e Kristen Nygaard receberam a Medalha IEEE John von Neumann e o Prêmio A. M. Turing (Dahl e Nygaard 1966).
A idéia por trás de Simula era que os objetos têm vida; eles começam a existir, fazem o seu ser e cessam. Os objetos são definidos como classes gerais (código de modelo), e cada instância de tal objeto tem uma 'vida' na simulação. A língua era muito difícil de aprender. No entanto, ofereceu a possibilidade de modelar processos objeto a objeto e executar simulação de suas vidas. A simulação é executada com base em eventos discretos, e é possível simular objetos em co-rotina. Mais tarefas podem iniciar, executar, desanexar, retomar e concluir em períodos de tempo sobrepostos em processos quase paralelos. O hardware de hoje nos permite modelar e simular em threads totalmente paralelos. No entanto, muitos dos conceitos do Simula já foram usados para o desenvolvimento de outras linguagens, a saber, Java, C/C++/CC\ # e bibliotecas de objetos persistentes como DOL (Soukup e Machacek 2014). O sucessor atual do Simula é BETA, estendendo e apresentando as possibilidades de herança em conceitos de (sub) classes aninhadas (com hora local aninhada) e padrões (Madsen et al. 1993).
É sempre uma opção para usar qualquer uma das linguagens orientadas a objetos e bibliotecas específicas e programar todo o código necessário para um modelo específico. Por outro lado, ambientes de programação gráfica já existentes permitem projetar e vincular a estrutura do sistema modelado a partir de bibliotecas de objetos (gerador de sinais, soma, integrador, etc.), parametrizá-los e executar a simulação em tempo virtual.
Outro software popular para simulação é o MathWorks Simulink, descrevendo-se como uma ferramenta de design baseada em modelos. O ambiente permite combinar e parametrizar blocos predefinidos (de uma ampla gama de bibliotecas) e diagramas em subsistemas. A programação é feita usando blocos gráficos e suas conexões em partes funcionais com loops de feedback. O ambiente é amplamente utilizado para controle, automação e processamento de sinais. Outra possibilidade é integrar o próprio código da linguagem MathWorks Matlab ou usar várias caixas de ferramentas (Jablonsky et al. 2016). Um deles, SensSB, está focado na análise de sensibilidade e permite importar outros modelos usando a Systems Biology Markup Language. Para apenas a visualização de modelos existentes no Simulink, também é possível usar o visualizador de modelos muito rápidos DiffPlug. PottersWheel suporta a modelagem de sistemas dinâmicos dependentes do tempo, calibração de parâmetros, análise e previsão. Ferramenta interessante é o projeto experimental para verificação do modelo.
Para a modelagem e análise da dinâmica do sistema, uma estratégia semelhante é usada pela aplicação de software Stella Architect isee, onde o modelo é composto de blocos, que são conectados por relações. Stella permite modelar e simular diferentes tipos de aplicações, desde as necessidades médicas até a construção de edifícios até os aviões. Stella às vezes é comercializado como software IThink. O software Powersim foi projetado originalmente para fins econômicos. No entanto, desenvolveu-se em uma ferramenta mais sofisticada, incluindo simulações eletrônicas, de energia solar ou de tratamento medicamentoso. O ex-desenvolvedor do Powersim está atualmente produzindo um software semelhante para tarefas mais complexas Dynaplan Smia. Vensim é um sistema para modelar relações de big data de sistemas reais. O poder de Vensim é que ele permite rastreamento causal, análise de sensibilidade, calibração e simulação intensiva. No entanto, o software também é capaz de lidar com uma ampla gama de sistemas reais simples e complexos (Hassan et al. 2016). O software de dinâmica do sistema True-World facilita simulações dinâmicas complexas de múltiplos corpos em tempo discreto e contínuo. A modelagem basicamente começa a partir de balanças.
Abordagens completamente diferentes para modelagem e simulação são autômatos celulares ou abordagens de modelação baseadas em agentes, popularizadas por Stephen Wolfram (Wolfram 1991) como um novo tipo de ciência. A abordagem às vezes também é chamada de jogo da vida. A modelagem é implementada através de interações de indivíduos autônomos (Macal e Norte 2005). As simulações mostram comportamentos emergentes e, portanto, são muito populares na biologia de sistemas para a dinâmica populacional. Uma ferramenta simples para modelagem e simulação baseada em agentes básicos (e avançados, também) é o software NetLogo, onde descrições simples e parametrização criam modelos poderosos. O software permite a visualização do desenvolvimento do tempo e da indução de ruído (Stys et al. 2015). O aplicativo é escrito em Java, que às vezes limita a memória disponível. Provavelmente o maior esforço na modelagem multi-agente foi feito pelo desenvolvimento do software Wolfram, que é a continuação do popular Mathematica, com ferramentas estendidas para modelagem e simulação. Ele colocou a modelagem semelhante ao Simulink em um terno mais atraente e também cria possibilidades de modelagem baseada em agentes e muito mais ferramentas para outras disciplinas matemáticas (estatísticas multivariadas, mineração de dados, otimização global).
AnyLogic é um software muito interessante para problemas de fluxo — informação, dinheiro, tráfego, logística e mineração. A simulação resolve o problema do fluxo ideal no sistema projetado com esforço mínimo e eficiência máxima. Os conceitos utilizados são a dinâmica do sistema e a modelagem de eventos discretos e baseados em agentes. Ele também oferece híbridos entre diferentes conceitos de modelação. O software é útil, por exemplo, nas simulações de propagação epidêmica (Emrich et al. 2007).
Outra ferramenta de modelagem baseada em agente é Insight Maker, para simulação da população interagindo em espaço geográfico ou de rede. O software suporta construção de modelos gráficos, uso de vários paradigmas, script incorporado e conjunto de ferramentas de otimização (Fortmann-Roe 2014).
Para a modelagem propriamente dita, descrição das variáveis de estado, solução dos ODE, parametrização e análise de dependência de tempo, o primeiro grupo de software, de Mathematica a Matlab, poderia ser utilizado sem hesitação. Eles representam ferramentas poderosas para fins de modelagem. No caso de análises mais complexas, como relacionadas com big data, simulação, indução de ruído, otimização, sensibilidade e estocástica, são necessárias ferramentas mais avançadas, com abordagem orientada a objetos, envolvendo também maior indução na sintaxe das linguagens de programação.
11.8 Discussão e conclusões
Original publication · Publicado pela primeira vez no FarmHub Learn · Aquaponics Food Production Systems
Aquaponics são sistemas técnicos e biológicos complexos. Por exemplo, possíveis explicações para peixes que não crescem adequadamente podem ser pequenas rações alimentares, qualidade adversa da água, problemas técnicos que causam estresse, etc. Devido à biologia inerentemente lenta, investigações científicas sobre a validade dessas explicações seriam tediosas e exigiriam vários ensaios experimentais para obter todos os fatores importantes e suas interações, exigindo um monte de instalações, experiência, tempo de pesquisa e ativos financeiros. Por conseguinte, a questão da modelização de sistemas aquapônicos foi abordada neste capítulo. Na aquaponia, a modelização é necessária para diferentes objetivos: (i) perspetiva/compreensão, (ii) análise, (iii) estimativa e (iv) gestão e controlo. Para todos estes objectivos, são necessários modelos adequados. Por exemplo, para atingir os objetivos (ii) e (iii), pode ser utilizada uma abordagem empírica que utiliza modelos estatísticos para analisar dados de ensaios experimentais anteriores com o objetivo de extrair o máximo de informação possível sem realizar novos experimentos. Os modelos estatísticos podem revelar os fatores mais importantes que afetam a produção de peixes e culturas nos sistemas aquapônicos. Experiências futuras poderiam se concentrar nesses fatores, tornando a utilização de recursos de pesquisa caros mais eficaz.
A complexidade dos sistemas aquapônicos, devido ao seu caráter de feedback e às interações entre RAS e sistema hidropônico, tratamento de água e crescimento de peixes, implica que, para cumprir os objetivos (i) e (iv), ou seja, compreender ou otimizar uma planta (configuração, tamanho, peixe, ração, caudais, etc.) com respeito ao custo, estabilidade, robustez e qualidade da água, são necessários modelos teóricos não triviais da maioria dos componentes do sistema descritos neste capítulo. A vantagem destes modelos teóricos apresentados em relação aos modelos estatísticos é a sua maior capacidade de analisar o processo subjacente à aquaponia e a possibilidade de modelar o aspecto temporal (dinâmica). Os modelos estatísticos apenas confirmam ou refutam uma hipótese e em que medida as variáveis covariam, mas não dão evidência dos processos subjacentes. Por outro lado, modelos teóricos permitem simular os processos de acordo com uma hipótese, comparar simulados com dados observados, avaliar tanto a hipótese como o modelo e fazer adaptações. A validade dos modelos estatísticos pode não estar além do alcance operacional para o qual foram treinados, enquanto modelos teóricos podem ser definidos e utilizados para uma ampla gama de ambientes, desde que os modelos sejam validados para esses intervalos antes da aplicação. Por exemplo, o modelo de regressão múltipla usado para avaliar as relações entre o crescimento de peixes com Oreochromis niloticus como espécie de peixe e variáveis ambientais em uma instalação aquapônica na Alemanha não pode ser facilmente aplicado à Espanha com Cyprinus carpio, enquanto que um modelo teórico descrevendo o processos (por exemplo, comportamento dos peixes, aquicultura, ecologia da água doce), uma vez que as equações matemáticas podem ser ajustadas de forma relativamente fácil porque o peixe e o processo ecológico subjacente a esse modelo são basicamente os mesmos para os dois sítios.
No entanto, modelos teóricos também exigem que alguns parâmetros, como constantes de reação e velocidade de sedimentação de substâncias no tanque de assentamento sejam determinados. Isto é conseguido comumente com base no estudo empírico de uma instalação ou muito poucas instalações ou, na maioria dos casos, de estudos publicados anteriormente (fontes secundárias). Estudos baseados em fontes secundárias apresentam limitações impostas pela estrutura e quantidade de dados disponíveis, o que não existe quando os dados provêm de uma configuração experimental concebida ad hoc para o estudo. No entanto, estimar parâmetros do modelo usando dados experimentais de uma instalação aquapônica somente pode ter problemas em relação à generalização e replicação dos resultados devido às condições particulares presentes no estudo. A escassez de dados às vezes impõe fortes restrições aos modelos que limitam sua praticidade. O desenvolvimento de estudos para estimativa de parâmetros com dados primários que utilizem um número maior de instalações aquapônicas do que estudos anteriores ajuda a superar as limitações presentes e fornecer resultados melhores e confiáveis. Este, no entanto, não é um desafio fácil para os pesquisadores da aquapônica.
A simulação da aquapônica com os modelos matemáticos sob uma ampla gama de condições de manejo melhorará a compreensão da aquapônica, verificará diferentes configurações aquapônicas e indicará o caminho para as estratégias mais promissoras para melhorar as instalações aquapônicas. Novamente, isso pode levar a uma maneira mais eficiente de realizar experimentos.
Algumas ferramentas de modelagem também foram apresentadas neste capítulo. Tradicionalmente, diagramas de estoque e fluxo (SFD) têm sido usados para entender processos como ferramentas de suporte para análise quantitativa. Eles são usados para compreender o fluxo e os fluxos de quantidades, mas não têm a capacidade de ilustrar as informações associadas ao fluxo e aos fluxos. Diagrama de loop causal (CLD) pode ser usado para transferir o sistema SFD complexo para estruturas de feedback simplificadas compreensíveis. Juntos, os SFDs e os CLDs definem completamente o sistema de equação diferencial. Se apenas uma compreensão qualitativa simples do sistema for necessária, então CLD e SFD podem ser suficientes, mas se a resposta exigir uma precisão numérica, então o problema pode ser investigado mais com diagramas de ferramentas dinâmicas do sistema (SDTD) e posteriormente ser modelado em uma ferramenta de software para simulação numérica.