Source material
Chapitre 11 Modélisation des systèmes aquaponiques
Karel J. Keesman, Oliver Körner, Kai Wagner, Jan Urban, Divas Karimanzira, Thomas Rauschenbach et Simon Goddek
Abstract Les modèles mathématiques peuvent prendre des formes très différentes et des niveaux de complexité très différents. Un moyen systématique de postuler, de calibrer et de valider, tel qu'il est fourni par la théorie des systèmes, peut donc être très utile. Dans ce chapitre, la modélisation dynamique des systèmes aquaponiques (AP), du point de vue théorique des systèmes, est examinée et démontrée à chacun des sous-systèmes du système PA, tels que les réservoirs de poissons, le digesteur anaérobie et la serre hydroponique (HP). Il montre en outre les liens entre les sous-systèmes, de sorte qu'en principe un modèle complet de systèmes AP peut être construit et intégré dans la pratique quotidienne en ce qui concerne la gestion et le contrôle des systèmes AP. Le principal défi consiste à choisir une complexité de modèle appropriée qui répond aux données expérimentales pour l'estimation des paramètres et des états et qui nous permet de répondre à des questions liées à l'objectif de modélisation, telles que la simulation, la conception de l'expérience, la prévision et le contrôle.
Mots-clés Modélisation · Système aquacole recirculant · Digestion anaérobie · Serre hydroponique · Système aquaponique multi-boucles · Outils
Contenu
- 11.1 Introduction
- 11.2 Contexte
- 11.3 Modélisation RAS
- 11.4 Modélisation de la digestion anaérobie
- 11,5 HP Modélisation des serres
- 11.6 Modélisation Aquaponique Multi-Boucle
- 11.7 Outils de modélisation
- 11.8 Discussion et conclusions
- Références
—
K. J. Keesman · S. Goddek
Méthodes mathématiques et statistiques (Biometris), Université de Wageningen, Wageningen, Pays-Bas
O. Körner
Leibniz-Institut des cultures végétales et ornementales (IGZ), Grossbeeren, Allemagne
K. Wagner
Institut für physikalische Prozesstechnik, Université des sciences appliquées de Sarrebruck, Sarrebruck, Allemagne
J. Urban
Laboratoire de traitement du signal et de l'image, Institut des systèmes complexes, Bohême du Sud
Centre de Recherche sur l'Aquaculture et la Biodiversité des Hydrocénoses, Faculté des Pêches et
Protection des eaux, Université de Bohême du Sud à Ceske Budejovice, Nove Hrady, République tchèque
D. Karimanzira · T. Rauschenbach
Fraunhofer IOSB-AST, Ilmenau, Allemagne
© L'auteur (s) 2019 267
S. Goddek et coll. (éd.), Aquaponics Food Production Systems, https://doi.org/10.1007/978-3-030-15943-6_11
—
Références
Badiola M, Mendiola D, Bostock J (2012) Analyse des systèmes aquacoles recirculants (RAS) : principaux enjeux sur la gestion. Aquac Eng 51:26 —35. https://doi.org/10.1016/j.aquaeng.2012.07. 004
Batstone DJ, Keller J, Angelidaki I, Kalyuzhnyi SV, Pavlostathis SG, Rozzi A, Sanders WTM, Siegrist H, Vavilin VA (2002) Le modèle de digestion anaérobie IWA no 1 (ADM1). Eau Sci Technol 45:65 —73
Boote KJ, Jones JW (1987) Equations pour définir la photosynthèse de la canopée à partir d'une efficacité quantique donnée, d'une vitesse foliaire maximale, d'une extinction de la lumière, d'un indice de surface foliaire et d'une densité de flux photonique donnée. Dans : Biggins J (ed) Progrès de la recherche en photosynthèse. Martinus Nijhoff, Dordrecht, pp. 415-418
Bot GPA (1993) Modélisation physique du climat de serre. In : Hashimoto Y, Bot GPA, Day W, Tantau HJ, Nonami H (dir.) La serre informatisée. Presse académique, San Diego, pp. 51 à 74
Buck-Sorlin G, De Visser PHB, Henke M, Sarlikioti V, Ven der Heijden G, Marcelis LFM, Vos J (2011) Vers un modèle végétal fonctionnel—structurel de rose coupée : simulation de l'environnement lumineux, absorption lumineuse, photosynthèse et interférence avec la structure de la plante. Ann Bot 108:1121 —1134
Challa H, Bakker M (1999) Production potentielle dans l'environnement de serre. Dans : Stanhill G,
Enoch HZ (eds) Écosystèmes du monde 20 — Écosystèmes de serre. Elsevier, pp. 333-347
Colt JEK (2013) Impact de l'aération et de l'alcalinité sur la qualité de l'eau et la qualité du produit du tilapia transporté — étude de simulation. Aquac Eng : 46—58
Corominas L, Riegler L, Takács I (2010) Nouveau cadre pour la notation normalisée dans les eaux usées. J Int Assoc Pollut de l'eau Res 61 (4) :S841—S857
Dahl O-J, Nygaard K (1966) SIMULA : un langage de simulation basé sur Algolo. MCC commun 9
(9) :671—678. https://doi.org/10.1145/365813.365819 de Zwart HF (1996) Analyse des options d'économie d'énergie dans la culture en serre à l'aide d'un modèle de simulation. Université agricole de Wageningen, Wageningen, p. 236
Delaide B, Goddek S, Keesman, KJ, Jijakli MH (2018). Méthodologie pour quantifier les performances de digestion aérobie et anaérobie des boues pour le recyclage des nutriments en aquaponie. https://popups. uliege.be:443/1780-4507 22, 12
Drayer GE, Howard AM (2014) Modélisation et simulation d'un habitat aquatique pour la recherche sur le maintien de la vie biorégénérative. Acta Astronaute 93:S.138—S.147. https://doi.org/10.1016/j.actaastro.2013. 07.013
El-Mashad H (2003) Réacteur anaérobie thermophile solaire (STAR) pour la production d'énergie renouvelable Thèse de doctorat Université de Wageningen. ISBN : 9058089533-238
Emerenciano M, Carneiro P, Lapa M, Lapa K, Delaide B, Goddek S (2017) Mineralizacão de sólidos. Soutiens-gorge Aquac 21—26
Emrich S, Suslov S, Judex F (2007) Entièrement basé sur un agent. Modélisation de la propagation de l'épidémie en utilisant anylogic. Dans : Actes de l'EUROSIM
FAO (2016) L'état des pêches et de l'aquaculture dans le monde 2016. Contribuer à la sécurité alimentaire et à la nutrition pour tous. Organisation des Nations Unies pour l'alimentation et l'agriculture, Rome
Ficara E, Hassam S, Allegrini A, Leva A, Malpei F, Ferretti G (2012) Modèles de digestion anaérobie : une étude comparative. Dans : Actes de la 7e conférence internationale de Vienne sur la modélisation mathématique 2012, p 1052
Fortmann-Roe S (2014) Insight maker : un outil à usage général pour la modélisation et la simulation sur le Web. Simul Modèle Pract Théorie 47:28 —45
Frantz JM, Hand B, Buckingham L, Ghose S (2010) Producteur virtuel : logiciel pour calculer les coûts de chauffage de la production de serre aux États-Unis. HortTechnology 20:778 —785
Galí A, Benabdallah T, Astals S, Mata-Alvarez J (2009) Version modifiée du modèle ADM1 pour l'application des déchets agroalimentaires. Bioresour Technol 100 (11) :2783—2790
Goddek S (2017) Opportunités et défis des systèmes aquaponiques multi-boucles. Université de Wageningen. https://doi.org/10.18174/412236
Goddek S, Delaide BPL, Joyce A, Wuertz S, Jijakli MH, Gross A, Eding EH, Bläser I, Reuter M, Keizer LCP, Morgenstern R, Körner O, Verreth J, Keesman KJ (2018) Minéralisation des éléments nutritifs et réduction de la matière organique des boues à base RASB acteurs. Aquac Eng 83:10 —19. ISSN : 0144-8609
Goddek S, Keesman KJ (2018) La nécessité de la technologie de dessalement pour la conception et le dimensionnement de systèmes aquaponiques multi-boucles. Dessalement 428:76 —85. https://doi.org/10.1016/j.desal.2017. 11.024
Goddek S, Körner O (2019) Un modèle de simulation entièrement intégré de l'aquaponie multi-boucles : une étude de cas pour le dimensionnement des systèmes dans différents environnements. Syst Agric
Goddek S, Delaide B, Maskingh U, Ragnarsdottir K, Jijakli H, Thorarinsdottir R (2015) Défis de l'aquaponie durable et commerciale. Durabilité 7:4199 —4224. https ://doi.org/10.3390/su7044199
Goddek S, Espinal CA, Delaide B, Jijakli MH, Schmautz Z, Wuertz S, Keesman KJ (2016) Navigation vers des systèmes aquaponiques découplés : une approche de conception dynamique des systèmes. Eau (Suisse) 8:303. https://doi.org/10.3390/W8070303
Graber A, Junge R (2009) Systèmes aquaponiques : recyclage des nutriments provenant des eaux usées de poisson par production végétale. Dessalement 246:147 —156
Halamachi I, Simon Y (2005) Un nouveau modèle de simulation informatique pour la conception et la gestion de systèmes aquacoles recirculants. Aquac Eng 32 (3—4) :S443—S464. https://doi.org/10.1016/j. aquafra.2004.09.010
Hassan J et al (2016) L'accumulation transitoire de NO2 et de N2O pendant la dénitrification s'explique par l'hypothèse d'une diversification cellulaire par transcription stochastique des gènes de dénitrification. PLoS Comput Biol 11 (1) :e1004621
He E, Wurtsbaugh W (1993) Modèle empirique des taux d'évacuation gastrique des poissons et analyse de la digestion chez la truite brune piscivore. Poisson Trans Am Soc 122 (5) :S.717—S.730
Henze M, Willi G, Takashi M, Mark L (2002) Modèles de boues activées ASM1, ASM2, ASM2D ET ASM3. IWA Publishing dans sa série de rapports scientifiques et techniques, Royaume-Uni. ISBN : 1-900222-24-8
Heuvelink E (1996) Croissance et rendement de la tomate : analyse quantitative et synthèse. Département d'horticulture. Université agricole de Wageningen, Wageningen, Pays-Bas, p. 326
Jablonsky J, Papacek S, Hagemann M (2016) Différentes stratégies de régulation métabolique dans les cyanobactéries : du contrôle transcriptionnel au contrôle biochimique. Rep. Sci 6:33024
Janka E, Körner O, Rosenqvist E, Ottosen CO (2018) Simulation de l'efficacité de fonctionnement du PSII à partir de la fluorescence de la chlorophylle en réponse à la lumière et à la température dans le chrysanthème (Dendranthema grandiflora) à l'aide d'un modèle foliaire multicouche. Photosynthetica 56:633 —640
Karimanzira D, Keesman KJ, Kloas W, Baganz D, Rauschenbach T (2016) Modélisation dynamique du système aquaponique INAPRO. Aquac Eng 75:29 —45. https://doi.org/10.1016/j.aquaeng.2016.10.004
Keesman KJ (2011) Identification du système : une introduction. Springer, Londres
Knaus U, Palm HW (2017) Effets de la biologie des poissons sur les herbes cultivées aquaponiques de reflux et d'écoulement dans le nord de l'Allemagne (Mecklembourg-Poméranie occidentale). Aquaculture 466:51 —63. https://doi.org/ 10.1016/j.aquaculture.2016.09.025
Körner O, Hansen JB (2011) Un outil en ligne pour optimiser la production de cultures en serre. Acta Hortique 957:147 —154
Körner O, Van Straten G (2008) Aide à la décision en faveur de stratégies dynamiques de lutte contre le climat à effet de serre. Comput Electron Agric 60:18 —30
Körner O, Aaslyng JM, Andreassen AU, Holst N (2007) Modélisation du microclimat pour un contrôle dynamique du climat à effet de serre. HortScience 42:272 —279
Körner O, Warner D, Tzilivakis J, Eveleens-Clark B, Heuvelink E (2008) Aide à la décision visant à optimiser la consommation d'énergie dans les serres européennes. Acta Hortic 801:803 —810
Körner O, Gutzmann E, Kledal PR (2017) Un modèle dynamique simulant les effets symbiotiques dans les systèmes aquaponiques. Acta Hortic 1170:309 —316
Licamele JD (2009) Production de biomasse et dynamique des nutriments dans un système aquaponique. L'Université de l'Arizona
Liebig HP, Alscher G (1993) Combinaison de modèles de croissance pour un contrôle optimisé du COSub2/sub- et de la température de la laitue. Acta Hortique 328:155 —162
Lugert V, Thaller G, Tetens J, Schulz C, Krieter J (2014) Examen du calcul de la croissance des poissons : fonctions multiples dans la production de poissons et leur application spécifique. Rév Aquac 8 (1) :30—42
Lupatsch I, Kissil GW (1998) Prédire les déchets aquacoles provenant de la culture de dorade dorée (Sparus aurata) à l'aide d'une approche nutritionnelle. Aquat Living Resour 11 (4) :265—268. https://doi.org/10. 1016/S0990-7440 (98) 80010-7
Lupatsch I, Kissil GW, Sklan D (2003) Comparaison de l'efficacité énergétique et protéique chez trois espèces de poissons dorade (Sparus aurata), bar européen (Dicentrarchus labrax) et mérou blanc (Epinephelus aeneus) : dépense énergétique pour le dépôt de protéines et de lipides. Aquaculture:175 à 189
Macal CM, North MJ (2005) Tutoriel sur la modélisation et la simulation basées sur des agents. In : Conférence de simulation, Actes de l'hiver 2005. IEEE
Madsen LO, Møller-Pedersen B, Nygaard K (1993) Programmation orientée objet dans le langage de programmation BETA. Addison-Wesley. ISBN 0-201-62430-3
Marcelis LFM (1994) Croissance des fruits et répartition de la matière sèche dans le concombre. Département d'horticulture. Université agricole de Wageningen, Wageningen, p. 173
McCarthy J, Levin MI (1965) Manuel du programmeur LISP 1.5. MIT Press, Cambridge, MA
Orellana JUW (2014) Culture du martinet à queue jaune (Seriola lalandi) dans un système d'aquaculture en recirculation marine (RAS) avec de l'eau de mer artificielle. Aquac Eng : 20-28
Pagand P, Blancheton JP, Casellas C (2000) Modèle permettant de prédire les quantités d'azote inorganique dissous rejetées dans les effluents d'un système de recirculation du bar (Dicentrarchus labrax). Aquac Eng 22 (1—2) :S137—S153
Pavlostathis SG, Giraldo-gomez E (1991) Cinétique du traitement anaérobie : Un examen critique. Crit Rev Env Contrôle 21:411 —490
Poorter H, Anten NP, Marcelis LFM (2013) Mécanismes physiologiques dans les modèles de croissance des plantes : avons-nous besoin d'une approche biologique des systèmes supra-cellulaires ? Cellule de plantes Environ 36:1673 —1690
Rath T (1992) Einsatz wissensbasierter Systeme zur Modellierung und Darstellung von gartenbautechnischem Fachwissen am Beispiel des hybriden Expertensystems HORTEX. Université de Hanovre, Allemagne
Rath T (2011) Softwaresystem zur Planung von Heizanlagen von Gewächshäusern. Fachgebiet Biosystem- und Gartenbautechnik. Université Leibniz Hanovre, Allemagne
Reyes Lastiri D, Slinkert T, Cappon HJ, Baganz D, Staaks G, Keesman KJ, (2016) Modèle d'un système aquaponique pour minimiser les besoins en eau, en énergie et en azote. Eau Sci Technol. wst2016127. https://doi.org/10.2166/wst.2016.127
Richie M, Haley D, Oetker M (2004) Effet de la fréquence d'alimentation sur l'évacuation gastrique et le retour de l'appétit chez Tilapia Oreochromis niloticus (L.). Aquaculture 234 (1—4) :S657—S673. https://doi.org/10.1016/j.aquaculture.2003.12.012
Rusten BE (2006) Conception et exploitation des réacteurs de biofilm à lit mobile Kaldnes. Aquac Eng : 322—331
Sánchez-Romero A, Miranda-Baeza A, Rivas-Vega M (2016) Développement d'un modèle pour simuler la dynamique de l'azote dans un système intégré de culture de crevettes—macroalgues avec échange zéro eau. J World Aquacult Soc 47 (1) :129—138
Sinha NK, Kuszta B (1983) Modélisation et identification des systèmes dynamiques. Von-Nostrand Reinhold, New York
Soukup J, Macháček P (2014) Sérialisation et objets persistants. Springer. https://doi.org/10. 1007/978-3-642-39323-5
Sterman J (2000) Dynamique des affaires : pensée et modélisation des systèmes pour un monde complexe. McGraw Hill, Boston
Štys D, Stys D Jr, Pecenkova J, Stys KM, Chkalova M, Kouba P, Pautsina A, Durniev D, Nahlık T, Cısa P (2015) 5id Observateur du comportement des écoles de poissons dans les labyrinthes et utilisation de l'entropie sémantique et syntaxique pour la définition de la structure scolaire. Monde Acad Sci Eng Technol Int
J Comput Electr Autom Control Inf Eng 9 (1) :281—285 van Ooteghem RJC (2007) Conception de contrôle optimale pour une serre solaire. Université de Wageningen, Wageningen, p. 304
Vanthoor B (2011) Méthode de conception de serre basée sur un modèle. Université de Wageningen, Wageningen, p. 307
Waller U, Buhmann AK, Ernst A et al (2015) L'aquaculture multitrophique intégrée dans un système d'aquaculture à recirculation zéro échange pour la production de poissons marins et d'halophytes hydroponiques. Aquac Int 23:1473
Weatherley LR, Hill RG, Macmillan KJ (1993) Modélisation des procédés d'un système d'aquaculture intensive. Aquac Eng : 215—230
Wik TEI, Linden BT, Wramner PI (2009) Modélisation dynamique intégrée de l'aquaculture et du traitement des eaux usées pour les systèmes d'aquaculture en recirculation. Aquaculture 287 (3/4) :361—370
Willems JC, Polderman JW (1998) Introduction à la théorie des systèmes mathématiques : une approche comportementale. Springer. ISBN : 978-1-4757-2953-5
Wolfram S (1991) Mathematica : un système pour faire les mathématiques par ordinateur. Wolfram Research, Champagne
Yogev U, Barnes A, Gross A (2016) Analyse des éléments nutritifs et du bilan énergétique pour un modèle conceptuel d'un trois boucles hors grille, aquaponique. Eau 8:589. https://doi.org/10.3390/W8120589
Zeigler BP, Praehofer H, Kim TG (2000) Théorie de la modélisation et de la simulation, 2e édn. Elsevier, Londres
Accès Ce chapitre est sous licence aux termes de la licence Creative Commons Attribution 4.0 International, qui permet l'utilisation, le partage, l'adaptation, la distribution et la reproduction dans n'importe quel support ou format, à condition que vous donniez les crédits appropriés à l'auteur original et à la source, fournissez un lien vers la licence Creative Commons et indiquer si des changements ont été apportés.
Les images ou tout autre matériel tiers figurant dans ce chapitre sont inclus dans la licence Creative Commons du chapitre, sauf indication contraire dans une ligne de crédit relative au matériel. Si le matériel n'est pas inclus dans la licence Creative Commons du chapitre et que votre utilisation prévue n'est pas autorisée par la loi ou dépasse l'utilisation autorisée, vous devrez obtenir l'autorisation directement du détenteur du droit d'auteur.
Aquaponics Food Production Systems contributors.
Voir l’édition originale · Creative Commons Attribution 4.0
Cette édition de la bibliothèque est reformattée et consolidée à partir de la source originale.
11.1 Introduction
Original publication · Publié pour la première fois sur FarmHub Learn · Aquaponics Food Production Systems
En général, les modèles mathématiques peuvent prendre des formes très différentes selon le système étudié, qui peuvent aller des systèmes sociaux, économiques et environnementaux aux systèmes mécaniques et électriques. Typiquement, les mécanismes internes des systèmes sociaux, économiques ou environnementaux ne sont pas très bien connus ou compris et souvent seuls de petits ensembles de données sont disponibles, tandis que la connaissance préalable des systèmes mécaniques et électriques est à un niveau élevé, et des expériences peuvent facilement être réalisées. En dehors de cela, la forme du modèle dépend également fortement de l'objectif final de la procédure de modélisation. Par exemple, un modèle de conception ou de simulation de processus devrait contenir beaucoup plus de détails qu'un modèle utilisé pour étudier différents scénarios à long terme.
En particulier, pour un large éventail d'applications (par exemple Keesman 2011), des modèles sont développés pour :
-
Obtenir ou élargir la compréhension de différents phénomènes, par exemple, la récupération de relations physiques ou économiques.
-
Analyser le comportement des processus à l'aide d'outils de simulation, par exemple la formation des opérateurs ou les prévisions météorologiques.
-
Estimer les variables d'état qui ne peuvent pas être facilement mesurées en temps réel sur la base des mesures disponibles, par exemple des informations de processus en ligne.
-
Contrôle, par exemple, dans le contrôle interne du modèle ou le concept de contrôle prédictif basé sur un modèle ou pour gérer des processus.
Une étape critique dans la modélisation de tout système consiste à trouver un modèle mathématique qui décrit adéquatement la situation ou l'état réel. Tout d'abord, les limites du système et les variables système doivent être spécifiées. Ensuite, les relations entre ces variables doivent être spécifiées sur la base de connaissances antérieures, et des hypothèses sur les incertitudes du modèle doivent être faites. La combinaison de ces informations définit la structure du modèle. Cependant, le modèle peut contenir des coefficients inconnus ou incomplètement connus, les paramètres du modèle qui, en cas de comportement variable dans le temps, définissent un ensemble supplémentaire de variables système. Pour une introduction générale à la modélisation mathématique, nous nous référons, par exemple, à Sinha et Kuszta (1983), à Willems et Polderman (1998) et à Zeigler et al. (2000).
Dans ce chapitre, la modélisation d'un système de production aquaponique (alimentaire) (PA) sera décrite. La figure 11.1 montre un exemple typique d'un système PA, c'est-à-dire le système aquaponique à trois boucles découplées. À la suite de la modélisation des principes de base, à l'aide de lois de conservation et de relations constitutives, les modèles mathématiques de toutes sortes de systèmes AP sont généralement représentés comme un ensemble d'équations différentielles ordinaires ou partielles. Ces modèles mathématiques sont couramment utilisés pour la conception, l'estimation et le contrôle. Dans chacun de ces objectifs spécifiques de modélisation, nous distinguons l'analyse et la synthèse.
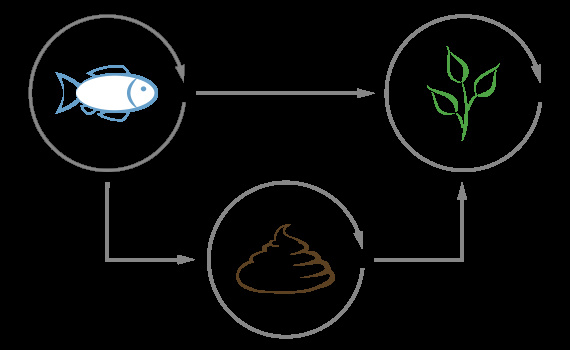
Fig. 11.1 Système aquaponique découplé à trois boucles avec sous-systèmes RAS, hydroponique et reminéralisation. (Goddek, 2017)
Les grandes lignes du chapitre sont les suivantes. Dans Sect. 11.1, des informations générales sur la modélisation des systèmes mathématiques sont présentées. Les sections 11.2, 11.3, 11.4 et 11.5 décrivent la modélisation d'un système aquacole en recirculation (RAS), la digestion anaérobie, hydroponique (HP) et un système AP multiboucle, respectivement. Dans Sect. 11.6, des outils de modélisation sont présentés et illustrés par quelques exemples. Le chapitre se termine par une section Discussion et conclusions.
-
11.2 Contexte
Original publication · Publié pour la première fois sur FarmHub Learn · Aquaponics Food Production Systems
De nombreuses définitions d'un système sont disponibles, allant de descriptions vagues à des formulations mathématiques strictes. Dans ce qui suit, un système est considéré comme un objet dans lequel différentes variables interagissent à toutes sortes d'échelles temporelles et spatiales et qui produit des signaux observables. Ces types de systèmes sont également appelés systèmes ouverts. Une représentation graphique d'un système ouvert général (S) avec des signaux d'entrée et de sortie à valeur vectorielle est représentée à la figure 11.2. Ainsi, plusieurs entrées ou sorties sont combinées en une seule flèche. Ainsi, les variables système peuvent être scalaires ou vecteurs. En outre, ils peuvent être des fonctions continues ou discrètes du temps. Il est important de souligner que les flèches de la figure 11.2 représentent des flux de signaux et donc pas nécessairement des flux physiques.
Il est également possible de connecter des systèmes à un réseau, comme dans un système AP, avec des chemins parallèles, de retour d'information et de feedforward. La figure 11.3 présente un exemple de ce réseau.
Pour l'analyse et la synthèse du contrôleur/de la gestion, il est souvent pratique de connecter le système (S) au contrôleur ou à la stratégie de gestion (C), comme dans la figure 11.4. Le plus souvent, l'entrée du contrôleur ou de la stratégie de gestion est le signal de direction externe du système contrôlé, et la sortie du système est le comportement observé du système.
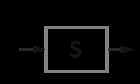
Fig. 11.2 Représentation générale du système ouvert
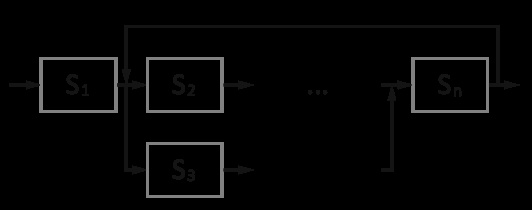
Fig. 11.3 Représentation du réseau à système ouvert
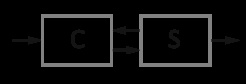
Fig. 11.4 Système contrôlé
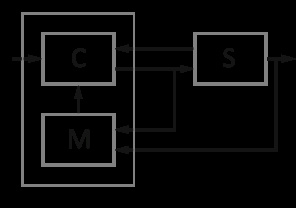
Fig. 11.5 Système contrôlé basé sur un modèle
Enfin, pour mettre l'accent sur l'incorporation d'un modèle mathématique (M) dans la structure du contrôleur ou la stratégie de gestion, la représentation du système contrôlé basée sur le modèle suivant est introduite (figure 11.5).
Pour l'instant, il suffit de présenter la représentation du diagramme de blocs. Dans les sections suivantes, la modélisation des systèmes PA sera élaborée plus en détail.
En théorie des systèmes, la structure de base d'un modèle mathématique (M) est représentée schématiquement comme dans la figure 11.6. Dans la Fig. 11.6, x est l'état dit du système, u l'entrée de contrôle, y la sortie, w l'entrée de perturbation et v le bruit de sortie. En général, chacune de ces variables a une valeur vectorielle.
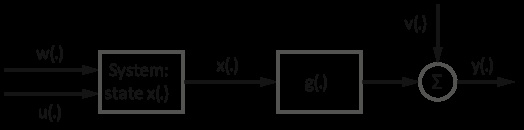
Fig. 11.6 Structure de base du modèle mathématique (M)
En temps continu, l'ensemble d'équations suivant décrit un modèle dynamique général (M), avec le paramètre vecteur p, sous la forme d'espace d'état :
$ \ frac {dx (t)} {dt} =f (t, x (t), u (t), w (t) ; p), \ \ \ x (0) =x_0$ (11.1)
$y (t) =g (t, x (t), u (t) ; p) +v (t), \ \ \ t \ dans \ Re^+$ (11.1)
où la première équation décrit la dynamique non linéaire et temporelle du système en termes de variables d'état (x) et la seconde exprime la relation algébrique entre u, x et y. Cette représentation de modèle d'espace d'état a été le point de départ de nombreuses implémentations logicielles pour la conception, le contrôle et l'estimation. Dans ce qui suit, cependant, seuls les modèles déterministes, donc sans les vecteurs stochastiques v et w, sont considérés. Illustrons cette théorie sur un système de bassins à poissons.
**Exemple : système de réservoir de poissons
Considérez le réservoir de poissons suivant, qui est un exemple typique du système général présenté à la figure 11.7.
Commençons par préciser notre connaissance préalable des mécanismes internes du système. Le bilan massique suivant peut être défini en fonction du volume du réservoir de stockage (V), également appelé état du système, entrées _u (t) _ et sorties _y (t) _ :
$ \ frac {dV (t)} {dt} =u (t) -y (t) $ (11.2)
Supposons qu'il existe un contrôleur de niveau (LC) qui maintient le débit de sortie proportionnel au volume dans le réservoir. Cela peut être appliqué en appliquant la loi sur le contrôle proportionnel ci - après,
$Y (t) =KV (t) $ (11,3)
avec K une constante réelle et positive. Par conséquent, après avoir substitué Eq. (11.3) en (11.2), nous obtenons l'équation différentielle suivante
$ \ frac {dV (t)} {dt} +KV (t) =n (t) $ (11.4)
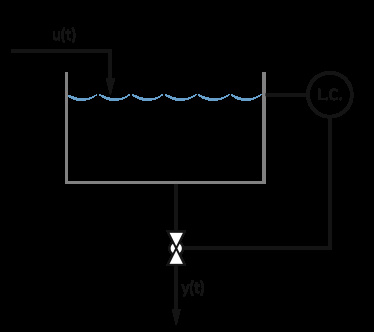
Fig. 11.7 Réservoir à poissons avec débit contrôlé par volume à l'aide d'un régulateur de niveau (LC)
Pour cette équation différentielle linéaire spécifique avec des coefficients constants, une solution analytique existe et est donnée par
$y (t) =y (0) e^ {-Kt} + \ int^t_0ke^ {-K (t-s)} u (s) ds$ (11.5)
en supposant que u (t) = 0 pour t \ 0. Il ressort clairement de cet exemple que l'application des premiers principes — la conservation de masse dans ce cas — conduit directement à une équation différentielle ordinaire. Dans un format d'espace d'état, le modèle peut être représenté comme
$ \ frac {dx (t)} {dt} =-Kx (t) +u (t) $ (11.6)
$ \ y (t) =Kx (t) $ (11.6)
Avec $x$ volume, $u$ flux entrée et $K$ gain contrôleur. Ainsi, en termes de l'Eq. (11.1), $f (t, x (t), u (t) ; p) \ equiv -Kx (t) + u (t) $ et $g (t, x (t), u (t) ; p) \ equiv Kx (t) $.
Pour deux bassins à poissons à volume contrôlé en série avec des volumes V<sub1/sub et Vsub2/sub, et un gain de contrôleur KSub1/sub et KSub2/sub, respectivement, deux bilans massiques peuvent être formulés, c'est-à-dire
$ \ frac {dv_1 (t)} {dt} =-K_1V_1 (t) +u (t) $ (11.7)
$ \ frac {dv_2 (t)} {dt} =K_1V_1 (t) -K_2V_2 (t) $ (11.7)
Sous forme de matrice vectorielle, et pour la sortie physique y (t), nous pouvons écrire :
$ \ frac {d} {dt} \ begin {bmatrix} V_1 (t) \ \ V_2 (t) \ end {bmatrix} = \ begin {bmatrix} -K_1 & 0 \ \ K_1 & -K_2 \ end {bmatrix} \ begin {bmatrix} V_1 (t) \ \ V_2 (t) \ end {bmatrix} + \ begin bmatrix} 1 \ \ 0 \ end {bmatrix} u (t) $ (11.8)
$y (t) =K_2V_2 (t) $ (11,8)
Et ainsi, avec $x_1=v_1, x_2=v_2:F (t, x (t), u (t) ; p) \ equiv \ begin {bmatrix} -K_1x_1 (t) +u (t) \ \ K_1x_1 (t) -K_2x_2 (t) \ end {bmatrix} $ et $g (t, x (t) t), u (t) ; p) \ equiv K_2x_2 (t) $.
Dans les sections suivantes, chacun des sous-systèmes du système AP (figure 11.1) sera décrit plus en détail.
11.3 Modélisation RAS
Original publication · Publié pour la première fois sur FarmHub Learn · Aquaponics Food Production Systems
La pisciculture mondiale a atteint 50 millions de tonnes en 2014 (FAO 2016). Compte tenu de la croissance de la population humaine, il y a une demande croissante de protéines de poisson. La croissance durable de l'aquaculture nécessite de nouvelles technologies (bio) telles que les systèmes aquacoles de recirculation (RAS). Les RAS ont une faible consommation d'eau (Orellana 2014) et permettent le recyclage des produits excréteurs (Waller et al. 2015). Le RAS offre des conditions de vie adéquates aux poissons grâce à un traitement de l'eau en plusieurs étapes, comme la séparation des particules, la nitrification (biofiltration), l'échange de gaz et le contrôle de la température. Les produits excréteurs dissous et particulaires peuvent être transférés dans un traitement secondaire, comme la production végétale (Waller et al. 2015) ou la production d'algues dans des systèmes aquaagriculture intégrée (IAAC). Les systèmes IAAC sont des solutions de rechange durables aux systèmes aquacoles conventionnels et, en particulier, constituent une expansion prometteuse de la RAS. Dans le RAS, il serait nécessaire de faire circuler l'eau de procédé, ce qui a des répercussions particulières sur la technologie de procédé tant dans le RAS que dans le système d'algues et de plantes. Pour combiner le RAS et le système d'algues et de plantes, une compréhension approfondie de l'interaction entre le poisson et le traitement de l'eau est indispensable et peut être dérivée de la modélisation dynamique. Le métabolisme chez les poissons suit une tendance quotidienne bien représentée par le taux d'évacuation gastrique (Richie et al., 2004). La séparation des particules, la biofiltration et l'échange gazeux sont soumis au même schéma. Aux fins de la conception, la caractérisation des composants de base d'un système de traitement RAS devrait être étudiée au moyen de modèles de simulation. Ces modèles de simulation sont très complexes. Les modèles numériques disponibles pour le RAS ne saisissent qu'une petite partie de la complexité et ne prennent en compte qu'une partie des composants avec des mécanismes correspondants. Par conséquent, dans ce chapitre, seule une petite partie d'un modèle RAS dynamique sera présentée, c'est-à-dire la biofiltration basée sur la nitrification. La conversion de l'ammoniac toxique en nitrate est un processus central dans le processus de traitement de l'eau dans le RAS. La modélisation dynamique du bilan massique de l'excrétion d'ammoniac des poissons et de la conversion de l'ammoniac en nitrate sera démontrée ainsi que le transfert de l'élément nutritif dans un système aquaponique. Avec cela, il est possible non seulement de concevoir un RAS, mais aussi d'intégrer la production de poisson dans un système IAAC basé sur des paramètres valides.
11.3.1 Modèle dynamique de biofiltration basée sur la nitrification dans le RAS
Le modèle est subdivisé en un modèle de poisson pour le bar européen, Dicentrarchus labrax, un modèle décrivant l'excrétion de l'ammoniac en fonction du temps, et un modèle de nitrification (figure 11.8). Le profil d'excrétion des poissons est introduit dans le modèle par le vecteur d'entrée u (Eq. 11.15), semblable à l'approche utilisée par Wik et al. (2009). La complexité du modèle de poisson reste faible pour pouvoir expliquer sa méthode de mise en œuvre. Néanmoins, une brève introduction à la modélisation des poissons est présentée à la section 11.3.2. Quatre aspects fondamentaux importants pour décrire le flux de nutriments dans la RAS (Badiola et al., 2012) sont les suivants :
- Le débit Q, qui est le débit total de l'eau de procédé par unité de temps à travers le RAS, détermine le transfert massique de toutes les matières dissoutes et particulaires, y compris l'ammoniac et le nitrate.
- L'excrétion de l'ammoniac entrant dans l'eau de procédé RAS est illustrée par le produit de la matrice B et du vecteur u (Eq. 11.15).
- La conversion de l'ammoniac en nitrate, qui a lieu dans la nitrification, est représentée dans le vecteur de nitrification n (Eq. 11.15).
- Le transfert d'éléments nutritifs du RAS vers un système HP connecté est représenté en vectoru (Eq. 11.15). D'autres aspects importants de la chaîne de procédé RAS, tels que l'élimination des solides, la concentration en oxygène dissous et la concentration en dioxyde de carbone, ne sont pas pris en considération ici. Des conseils pour modéliser ces éléments se trouvent dans les sections 3.1.1 et 3.2.2 de ce livre.
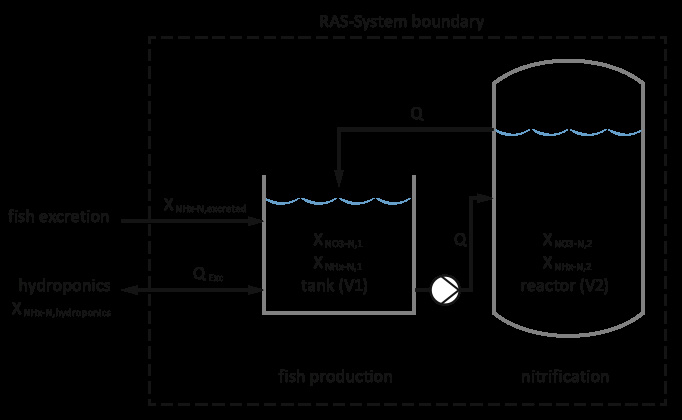
Fig. 11.8 Installation RAS avec réservoir à poisson, pompe, réacteur de nitrification et transfert d'eau vers le système hydroponique
11.3.2 Poisson
Divers modèles de la littérature scientifique prédisent la croissance et l'apport alimentaire de différentes espèces aquatiques. Les modèles décrivent la croissance comme un gain de poids par jour, comme un accroissement de croissance en pourcentage ou comme un taux de croissance spécifique basé sur un modèle de croissance exponentiel. Les modèles sont souvent valables pour des stades de vie spécifiques. La consommation d'aliments pour animaux, la biomasse et le sexe influencent la production du modèle ainsi que les conditions environnementales telles que la température, le niveau d'oxygène et la concentration en éléments nutritifs (Lugert et al., 2014). Des recherches minutieuses sont nécessaires pour identifier le bon modèle utilisé pour l'application spécifique. Le RAS commercial qui comprend plusieurs cohortes de poissons à différents stades de la vie exige que la modélisation intègre des cohortes dans le modèle (figure 8.6) (Halamachi et Simon, 2005). Le débit massique excréteur du bar européen (Dicentrarchus labrax) peut être estimé à l'aide d'algorithmes publiés par Lupatsch et Kissil (1998).
Dans ce cas, le débit massique net d'azote dans l'eau de procédé est estimé à partir de la composition des aliments (teneur en protéines), de la quantité d'aliment donné et de l'azote retenu dans les tissus corporels par la croissance (augmentation de poids) des poissons. Les pertes d'azote fécale ne sont pas incluses dans le modèle, mais le taux d'excrétion est corrigé en supposant une part de 0,25 et 0,75 de l'excrétion d'azote pour la perte fécale et de l'excrétion d'ammoniac, respectivement. L'apport d'azote par l'alimentation des poissons est estimé à partir de la teneur en protéines et de la teneur moyenne en azote relative des protéines, qui est supposée être de 0,16. La teneur en protéines du tissu du bar marin est rapportée à environ 0,17 g de protéines gsup-1/sup (Lupatsch et al., 2003). Pour un poisson qui prend du poids corporel en consommant une quantité donnée d'aliment, l'excrétion d'azote (xSubN, excrété/sub, g) peut être calculée à partir de l'équation (11.9). On suppose que l'aliment (XSubfeed/sub) contient 0,5 g de protéine gsup-1/sup poisson. On suppose en outre que le taux de conversion des aliments pour animaux est égal à 1, c'est-à-dire que 1 g de consommation d'aliments pour animaux entraîne une augmentation de 1 g de poids corporel (figure 11.9) :
$X_ {N, excrété} = X_ {feed} * 0,16 * 0,75 * (0,5 - 0,17) $ (11,9)
L'ammoniac dissous excrété par les branchies des poissons suit une tendance quotidienne semblable à celle du taux d'évacuation gastrique (GER). Le GER est décrit pour les poissons d'eau froide et d'eau chaude par He et Wurtsbaugh (1993) et Richie et al. (2004), respectivement. Le motif excréteur peut être bien simulé avec une fonction sinusoïdale. L'excrétion d'ammoniac peut être calculée à partir de l'équation (11.10) :
$X_ {NH_x-n, excrété} =X_ {N, excrété} [g] * (sin ( \ frac {2 \ pi} {1440}) +1) $ (11.10)
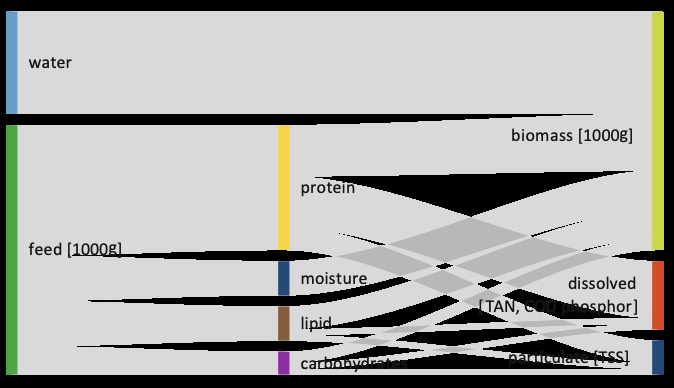
Fig. 11.9 Représentation des flux massiques (graphique Sankey) d'ingrédients et de produits excréteurs pour un poisson consommant 1000 g d'aliments pour animaux en supposant un FCR de 1
11.3.3 RAS
Une variété de modèles décrivant les SAR ayant différents niveaux de complexité peuvent être trouvés dans la littérature. Des modèles très complexes sont disponibles pour des aspects précis, comme l'interaction des gaz solubles et de l'alcalinité (Colt, 2013) ou la description de la communauté microbienne (Henze et al., 2002). Sánchez-Romero et coll. (2016), Pagand et coll. (2000), Wik et coll. (2009) et Weatherley et coll. (1993) ont publié des modèles plus pratiques pour le bilan massique du RAS. Tous les modèles fournissent des informations sur les débits massiques excréteurs et/ou les débits d'éléments nutritifs en fonction du temps et de l'emplacement dans la chaîne de procédé. De tels modèles fournissent une base pour la simulation du couplage de RAS et HP. La matière dissoute la plus importante dans la modélisation RAS est l'azote ammoniac total (TAN). Outre le TAN, la demande chimique (DCO) et biologique (DBO) en oxygène, il faut tenir compte de la concentration totale des solides en suspension (TSS) et de l'oxygène dissous. Cependant, les différentes notations dans la littérature scientifique rendent parfois difficile la lecture, la conversion et la mise en œuvre de l'information en modèles. Dans ce qui suit, les notations recommandées par Corominas et coll. (2010) seront utilisées. Le TAN sera réécrit comme XsubNHX-N/sub et l'azote nitrate sera exprimé en XsubNO3-N/sub.
# 11.3.4 Exemple de modèle
Le modèle tel qu'il est décrit ci-dessous n'est valable que pour le RAS présenté à la figure 11.8. D'autres chaînes de procédés possibles pour le RAS sont examinées dans sect. 11.3 du présent chapitre. Pour la représentation mathématique des systèmes physiques, les hypothèses suivantes ont été formulées :
a) On suppose que la densité de l'eau est constante.
b) On suppose que le réservoir et le réacteur sont bien mélangés.
c) On suppose que le volume du réservoir et du réacteur est constant.
d) Le débit d'eau de procédé est toujours supérieur à zéro.
L'hypothèse d'un réservoir et d'un réacteur bien mélangés conduit à une équation de bilan massique pour un réacteur à réservoir agité continu (CSTR) tel que décrit par Drayer et Howard (2014) dans Eq. (11.11). Il faut mentionner que les processus de diffusion peuvent généralement être négligés dans les calculs RAS en raison d'un débit d'eau généralement élevé. Dans le cas d'un RAS multi-char, les retenues suivantes sont :
Accumulation = Entrées - Sorties + Génération - Réduction
$v_i { \ dot x} i=Q {in} x_ {i, in} -Q_ {out} x_ {i, out} +x_ {i, gen} -x_ {i, red} $ (11.1)
$j= \ begin {cas} n, & i=1 \
i-1, & i \ ne1 \ end {cases} $ (11.1)Dans l'équation donnée ci-dessus $n$ représente le nombre de réservoirs dans le système, $ { \ dot x} i$ est le changement de concentration d'un substrat donné x dans un volume donné par $V {i.} $. Le débit d'eau de procédé dans le réservoir ou le réacteur est représenté par $Q {in} $. $v_i$ est le volume du composant dans lequel le débit d'eau de procédé $Q_ {in} $ est entré. Le débit d'eau de procédé $Q_ {in} $ provenait d'un composant ayant le volume $V_J$.
La conversion de XsubNHX-N/sub en XsubNO3-N/sub dans des biofiltres nitrifiants a lieu sur la surface A [msup2/sup] disponible sur les bio-porteurs du réacteur de nitrification (Rusten 2006). La surface bioactive disponible dans la nitrification est calculée en multipliant le volume du réacteur par la surface active spécifique au volume des bioporteurs Asubs/sub [msup2/sup ⋅ msup-3/sup]. La surface bioactive totale est calculée (Eq. 11.12) à partir du remplissage relatif fsubbc/sub du réacteur de nitrification, qui est habituellement de 0,6 (pour plus de détails, voir Rusten 2006).
A = vsubnitrification/sub ⋆ asubs/sub ⋆ fsubbc/sub (11.2)
La conversion microbienne totale journalière TAN μsubmax/sub g dsup-1/sup a été calculée en multipliant le taux de conversion spécifique du TAN (nitrification), le taux de subconversion NHX/sub [g msup-2/sup dsup-1/sup], par la surface active totale, A [msup2/sup], des bio-porteurs. Les valeurs de conversion du TAN dans différents types de biofiltres nitrifiants peuvent être trouvées dans la littérature. Pour les réacteurs de biofilm à lit mobile (MBBR), les valeurs sont rapportées par Rusten (2006). Ce taux est valable pour certaines conditions de procédé, et il est supposé que le biofilm bactérien est entièrement développé sur l'ensemble.
$μ_ {mm} = A^*NHX_ {taux de conversion} $ (11.13)
La masse totale de NHsubx/sub convertie en NOsub3/sub-N peut ensuite être calculée à l'aide d'une cinétique Monod (Eq. 11.14). Pour cela, la concentration de NHsubx-N/sous, XsubNHX-N,2/sub [g ⋅ 1sup-1/sup], dans le volume du réacteur de nitrification (MBBR) Vsub2/sub, est nécessaire.
$ \ frac {d} {dt} X_ {NH_x-n,2} =- \ mu_ {max} * ( \ frac {X_ {NH_x-n,2}} {K_S+x_ {NH_ {x-n,2}}) * \ frac1 {V_2} $ avec $K_S= \ frac { \ mu_ {max}} 2$ (4)
$ \ frac {d} {dt} X_ {n0_x-n,2} =+ \ mu_ {max} * ( \ frac {X_ {nh_x-n,2}} {k_s+x_ {NH_ {x-n,2}}) * \ frac1 {V_2} $ avec $K_S= \ frac { \ mu_ {max} 2$ (11.4)
Compte tenu des Eqs. (11.9, 11.10, 11.11, 11.12, 11.13 et 11.14), le modèle d'espace d'état suivant (combinant la nitrification du poisson) donne des résultats
[ \ frac {dx (t)} {dt} =A^*X+B^*U+N]
$X= \ begin {bmatrix} X_ {NH_ {x} -N,1} \ \ X_ {NH_ {x} -N,2} \ \ X_ {NO_ {3} -N,1} \ \ X_ {NO_ {3} -N,2} \ end {bmatrix} $ ex= \ begin {bmatrix} X_ {NH_x-n, \ text} \ \ 0 \ \ {Q_ {Exc}} ^ {*} X_ {NH_x-n, \ text {hydroponique}} \ \ 0 \ end {bmatrix} $ n= \ begin {bmatrix} 0 \ \ - \ frac { \ mu_ {max} * [X] _2} {K_S+ [X] 2} * \ frac1 {V_1 2} \ \ 0 \ \ + \ frac { \ mu {max} * [X] _2} {K _s+ [X] _2} * \ frac1 {V_2} \ end {bmatrix} $
$A= \ begin {bmatrix} - \ frac {Q} {V_1} - \ frac {Q_ {Exc}} {V_1} & \ frac {Q} {V_1} &0&0 \ \ \ frac {Q} {V_2} &- \ frac {Q} {V_2} &0&0 \ \ 0 &0&- \ frac {Q} {V_1} - \ frac {Q_ {Exc}} {V_1} & \ frac {Q} {V_1} \ \ 0&0& \ frac {Q} {V_2} & - \ frac {Q} {V_1} \ end {bmatrix} $
$ \ fois B = \ begin {bmatrix} \ frac1 {V_1} &0&0 \ \ 0& \ frac1 {V_2} &0&0 \ \ 0&0& \ frac1 {V_1} &0 \ \ 0&0&0& \ frac {1} {V_2} \ end {bmatrix} $
(11,5)
Exemple
Dans cet exemple, un RAS théorique avec V_Reactor = 1300 l et V_Tank = 6000 l est simulé.
Toutes les simulations ont eu un apport journalier de 2000 g/jour avec 500 g de protéines/kg d'aliment (Eq. 11,8). On a supposé que l'excrétion quotidienne du TAN était une courbe sinusoïdale (Eq. 11.9). La surface active des bio-porteurs Asubs/sub est de 300 [msup2/sup msup-3/sup], et le remplissage relatif du réacteur fsubbc/sub est de 0,6. Le taux de conversion spécifique du TAN, NHXsubconversion-rate /sub, est de 1,2 [g msup-2 -/supd], et le biofilm est censé être entièrement développé (Eqs. 11.11 et 11.12). La représentation de l'espace d'état (Eq. 11.14) a été implémentée dans MATLAB Simulink. L'exemple montre l'importance du débit massique pour les concentrations d'éléments nutritifs dans les systèmes couplés (Fig. 11.10 et 11.11).
11.4 Modélisation de la digestion anaérobie
Original publication · Publié pour la première fois sur FarmHub Learn · Aquaponics Food Production Systems
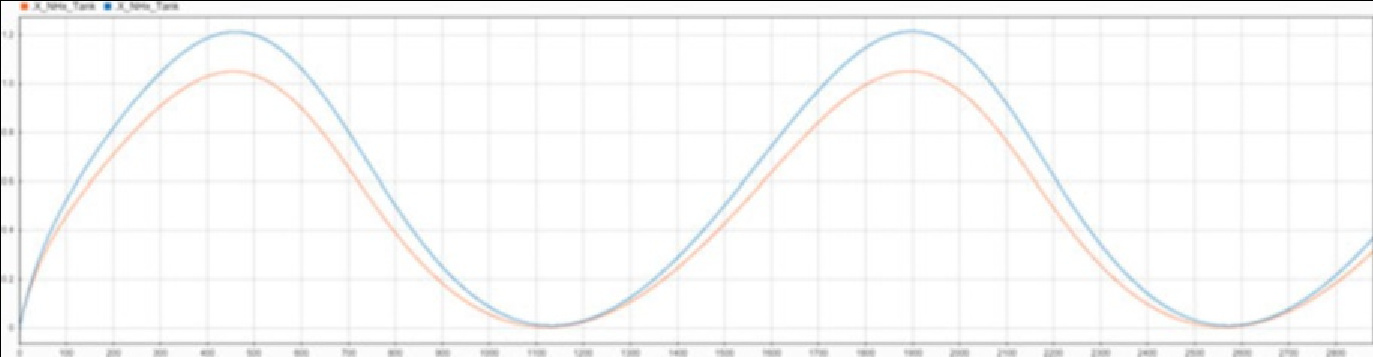
Fig. 11.10 Simulation du TAN (XsubNHX-N,1/sub) en [mg/l] sur 2 jours = 2880 min avec Q = 300 l/min (bleu) et Q = 200 l/min (orange)
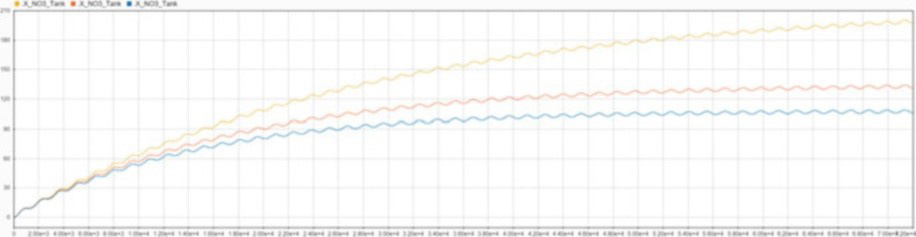
Fig. 11.11 Simulation du nitrate N (xsubNO3-N,1/sub) en [mg/l] sur 50 jours = 72 000 min avec Qsubexc/sub = 300 l/jour (jaune), Qsubexc/sub = 480 l/jour (orange) et Qsubexc/sub = 600 l/jour (bleu)
La digestion anaérobie (MA) de matière organique est un processus qui implique les étapes séquentielles de l'hydrolyse, de l'acidogenèse, de l'acétogenèse et de la méthanogenèse (Batstone et al., 2002). La digestion anaérobie d'un mélange de protéines, de glucides et de lipides est visualisée à la figure 11.11. Le plus souvent, l'hydrolyse est considérée comme l'étape limitant la vitesse dans la digestion anaérobie de la matière organique complexe (Pavlostathis et GiraldoGomez 1991). Ainsi, l'augmentation du taux de réaction d'hydrolyse conduira probablement à un taux de réaction de digestion anaérobie plus élevé. Toutefois, l'augmentation des taux de réaction nécessite une meilleure compréhension du processus connexe. Une meilleure compréhension peut être obtenue par l'expérimentation et/ou la modélisation mathématique. Comme de nombreux facteurs influencent, par exemple, le processus d'hydrolyse, comme la concentration d'ammoniac, la température, la composition du substrat, la taille des particules, le pH, les intermédiaires, le degré d'hydrolyse, c'est-à-dire le potentiel de la teneur en hydrolyse et le temps de séjour, il est presque impossible d'évaluer la valeur totale effet des facteurs sur le taux de réaction d'hydrolyse par expérimentation. La modélisation mathématique pourrait donc être une alternative, mais en raison de toutes les incertitudes relatives à la formulation des modèles, aux coefficients de vitesse et aux conditions initiales, aucune réponse unique ne peut être attendue. Toutefois, un cadre de modélisation mathématique permettrait des analyses de sensibilité et d'incertitude pour faciliter le processus de modélisation. Comme mentionné précédemment, l'hydrolyse n'est qu'une des étapes de la digestion anaérobie. Par conséquent, la compréhension et l'optimisation du processus complet de digestion anaérobie nécessitent des connexions de l'hydrolyse aux autres processus qui se déroulent au cours de la digestion anaérobie et des interactions entre toutes ces étapes.
L'ADM1 (modèle de digestion anaérobie \ #1), bien connu et largement utilisé, est un modèle structuré comprenant des étapes de désintégration et d'hydrolyse, d'acidogenèse, d'acétogenèse et de méthanogenèse. La désintégration et l'hydrolyse sont deux étapes extracellulaires. À l'étape de la désintégration, les substrats composites de particules sont convertis en matière inerte, en glucides particulaires, en protéines et en lipides. Par la suite, l'étape d'hydrolyse enzymatique décompose les glucides particulaires, les protéines et les lipides en monosaccharides, acides aminés et acides gras à longue chaîne (LCFA) respectivement (Batstone et al., 2002) (voir fig. 11.12).
ADM1 est un modèle mathématique qui décrit les processus biologiques et physicochimiques de la digestion anaérobie comme un ensemble d'équations différentielles et algébriques (DAE). Le modèle contient 26 variables d'état dynamique en termes de concentrations, 19 processus cinétiques biochimiques, 3 processus cinétiques de transfert gaz-liquide et 8 variables algébriques implicites pour chaque unité de procédé. Comme alternative, Galí et coll. (2009) ont décrit le processus anaérobie comme un ensemble d'équations différentielles avec 32 variables d'état dynamique en termes de concentrations et 6 processus cinétiques acido-basiques supplémentaires par unité de procédé. Pour un aperçu de la modélisation des processus de digestion anaérobie, nous nous référons à Ficara et al. (2012). Cependant, dans ce qui suit et pour obtenir quelques premières informations sur le processus AD, nous présenterons un modèle simple d'équilibre nutritionnel de la MA dans un réacteur séquençage par lots (SBR).
11.4.1 Minéralisation des éléments nutritifs
La minéralisation des éléments nutritifs peut être calculée à l'aide de l'équation suivante (Delaide et al. 2018) :
$NR=100 \ % \ fois ( \ frac {DN_ {out} -DN {in}} {TN_ {in} -DN_ {in}}) $ (11.15a)
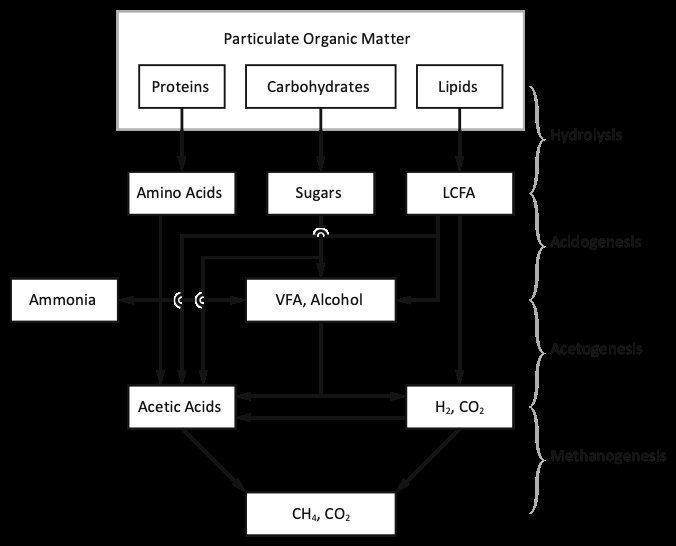
Fig. 11.12 Schéma simplifié pour la digestion anaérobie des particules organiques complexes (basé sur El-Mashad 2003)
où NR est la récupération des éléments nutritifs à la fin de l'expérience en pourcentage, DNsubout/sub est la masse totale de nutriments dissous dans l'écoulement sortant, DNsubin/sub est la masse totale de nutriments dissous dans l'entrée et TNsubin/sub est la masse totale de nutriments dissous et non dissous dans l'afflux (voir aussi fig. 11.13).
11.4.2 Réduction organique
La performance de réduction organique du réacteur peut être calculée à l'aide de l'équation suivante :
$η_ {OM} =1- \ frac { \ Delta OM+T_ {OM \ out}} {T_ {OM \ in}} $ (11.15b)
où ΔOM est la matière organique (c'est-à-dire COD, TS, TSS, etc.) à l'intérieur du réacteur à la fin de l'expérience moins celle au début de l'expérience, TsuBom out/sub est le débit total d'OM et TsuBom in/sub est l'afflux total d'OM (voir aussi fig. 11.14).
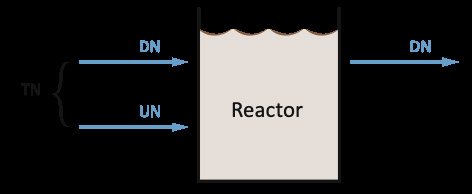
Fig. 11.13 Schéma général du réacteur pour déterminer le potentiel de minéralisation, où DN sont les nutriments dissous dans l'eau, UN les nutriments non dissous dans les boues (c.-à-d. TN-DN) et TN les nutriments totaux
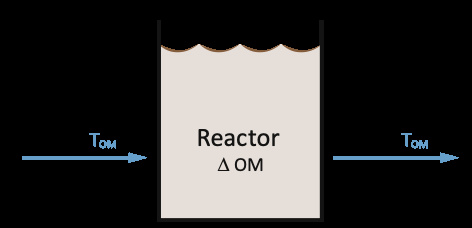
Fig. 11.14 Schéma général du réacteur pour déterminer le potentiel de réduction de la matière organique, où TsubOM/sub est la matière organique totale et ΔOM le changement de matière organique à l'intérieur du réacteur
11,5 HP Modélisation des serres
Original publication · Publié pour la première fois sur FarmHub Learn · Aquaponics Food Production Systems
L'utilisation de l'eau des cultures et l'absorption des éléments nutritifs sont un sous-système central de l'aquaponie. La partie HP est complexe, car l'absorption pure de l'eau et des nutriments dissous ne suit pas simplement une relation linéaire plutôt simple comme, par exemple, la croissance des poissons. Pour créer un modèle complet, un simulateur de serre complet est nécessaire. Il s'agit de systèmes sous-modèles de la physique des serres, y compris les contrôleurs climatiques et la biologie des cultures, couvrant les processus interactifs avec des facteurs de stress biologiques et physiques.
Cependant, du point de vue des HP, le climat de serre est le principal moteur de l'ensemble du système aquaponique, y compris, à côté des bilans nutritifs, les boucles de rétroaction de la chaleur produite par les poissons et le COsub2/sub supplémentaire fourni aux plantes, tel que rapporté par Körner et al. (2017) (figure 11.15).
Dans ce modèle, la pisciculture produit de la chaleur par des processus métaboliques. La quantité de chaleur produite par le poisson est calculée directement à partir de la consommation d'oxygène qui est fonction de la température et d'une constante pour la production de chaleur pour une unité d'oxygène consommée (c.-à-d. 13608 J gsup-1/sup poisson). La chaleur due à la dégradation des matières organiques (QsubBIO/sub), par exemple les matières fécales et les aliments pour animaux, contribue également au bilan thermique. L'alimentation en énergie du système d'eau peut alors être calculée par la production de chaleur à travers le poisson calculée à partir d'un taux moyen de consommation d'oxygène (FSubo2, TWB/sub). La production de chaleur additionnelle peut alors être calculée par décomposition biologique des matières fécales (figure 11.16).
La production de cosub2/sous à partir du sous-système aquatique (dsubcosub2/sub/sub, g hsup-1/sup), c'est-à-dire la livraison dans l'environnement aérien (d, g hsup-1/sup), peut être calculée pour la température de l'eau donnée (tsubH2O/sub, K) provenant de l'apport d'oxygène au système (dsubosub2/sub/sub, g hsup-1/sup) à la température de g hsup-1/sup) à la température de l'eau (TSubH2 O, b/sub, K) et la valeur QSub10/sub de la respiration des poissons (Qsub10, R/sub). Les relations suivantes sont utilisées :
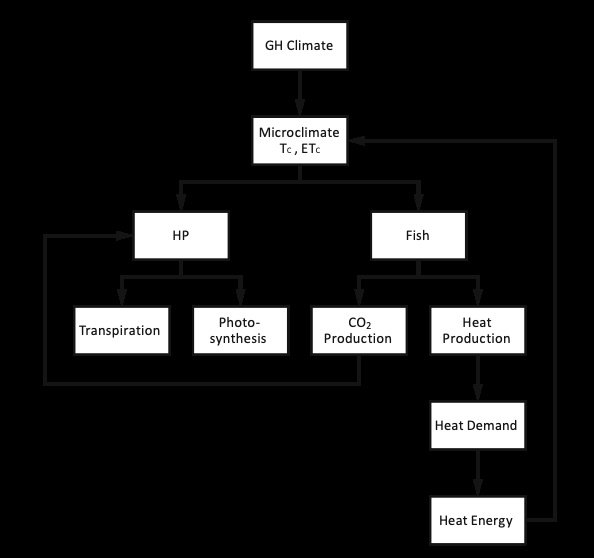
Fig. 11.15 Comportement symbiotique supplémentaire d'un système aquaponique
$d_ {O_2} = f_ {fish} \ f_ {O_2} W_ {O_2} $
$d_ {CO_2} = \ frac {[CO_2]} {[O_2]} \ \ d_ {O_2} \ Q_ {10, R} (T_ {H2O, b}) /10$ (11.16)
avec la quantité d'aliment pour le poisson (fsubfish/sub, g hsup-1/sup), le taux de consommation d'oxygène à la température de base (fsubo2/sub, kg [osub2/sub] kgsup-1/sup [feed]), la fraction de la perte de nourriture wsubo2/sub (sup-/sup) et le bilan massique de Osub2/sub/cosub2/sub2/sub (sup-/sub (sup-/sup).
Pour calculer la base de l'aquaponie, c'est-à-dire le flux de processus (indiqué par des flèches, →) macroclimat de serre → microclimat → évapotranspiration → absorption de nutriments, divers simulateurs de serre qui ont été développés dans le passé peuvent être utilisés et combinés avec l'aquaculture à un système aquaponique . Tous les modèles de serre comprennent un modèle de croissance des cultures. La qualité du modèle, cependant, peut varier considérablement d'un modèle de régression empirique simple, par exemple Boote et Jones (1987), en passant par des modèles déterministes, par exemple Heuvelink (1996), aux modèles de plantes structurales fonctionnelles (FSPM), par exemple Buck-Sorlin et al. (2011). Comme les modèles actuels de croissance et de développement des cultures sont inexacts et ont un pouvoir prédictif limité (Poorter et al., 2013), des modèles sont parfois utilisés pour la gestion des cultures, mais surtout pour les questions de planification dans les simulateurs de serre, par exemple Vanthoor (2011) et Körner et Hansen (2011). La précision des prévisions est compromise par de nombreuses sources d'incertitude, telles que la modélisation
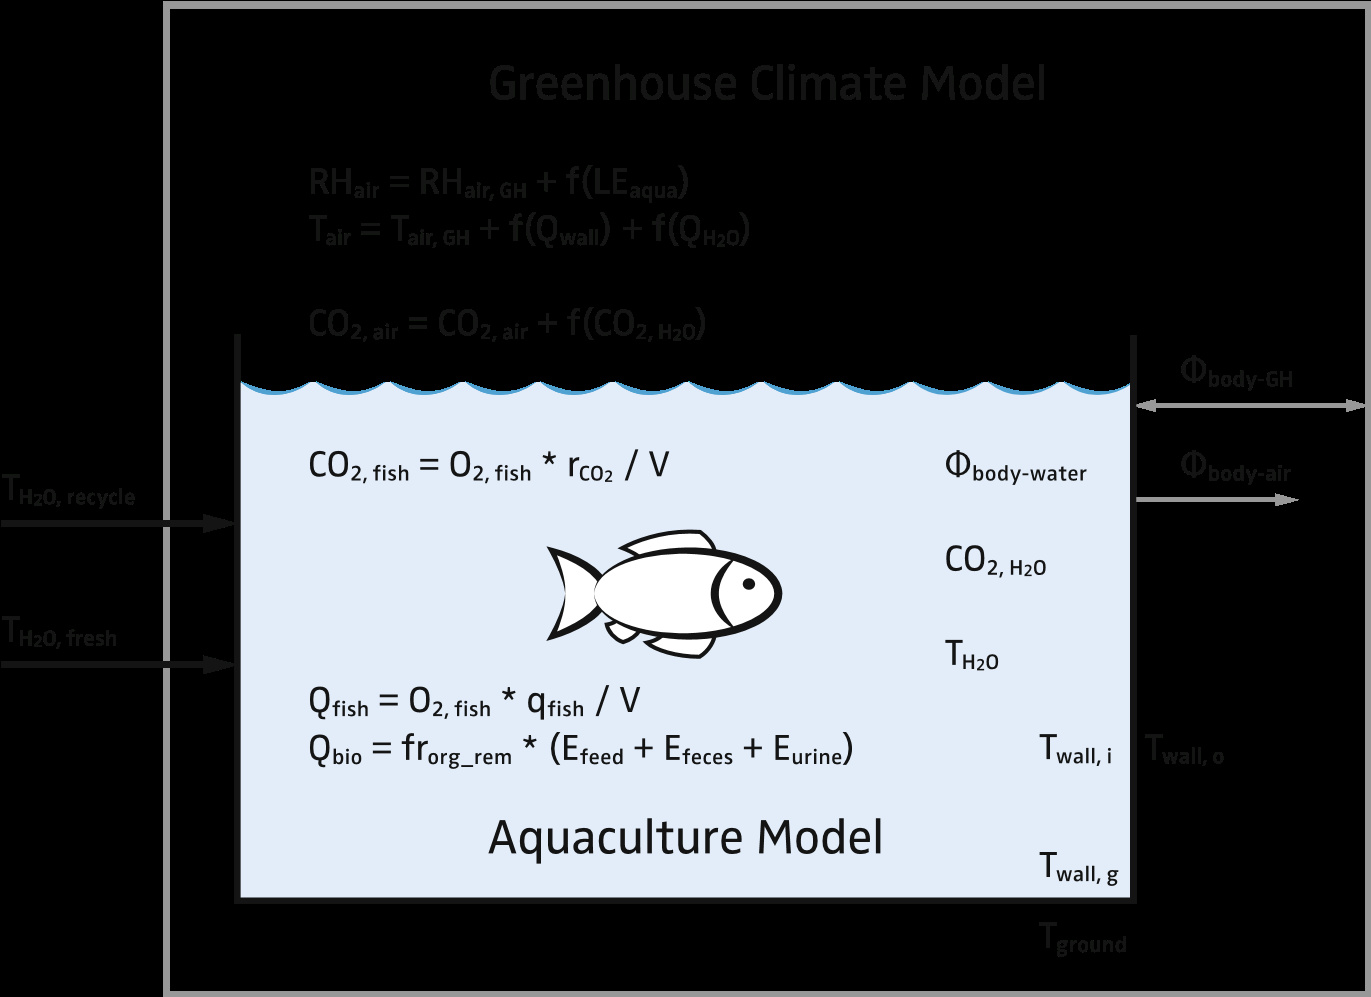
Fig. 11.16 Système d'aquaculture mis en place en serre avec humidité, température et concentrations de CO2 de l'air (Rhsubair/sub tsubair/sub, cosub2, air/sub), chaleur provenant de (Q) environnement de poisson (poisson), dégradation biologique (bio) et flux de chaleur ($$), tiré de Körner et al. (2017)
les erreurs, la variabilité entre les plantes, la variabilité entre les serres et les conditions climatiques extérieures incertaines. En ce qui concerne les prévisions, la précision varie également fortement selon la situation. Cependant, l'alimentation en ligne de l'information des capteurs dans le modèle de la plante peut rendre les prévisions du modèle de plante considérablement plus fiables et utiles au producteur.
Des simulateurs de serre ont été mis au point dans et pour plusieurs endroits, par exemple : Virtual Grower (Frantz et al. 2010), KASPRO (De Zwart 1996), Greenergy Energy Audit Tool (Körner et al. 2008), The Virtual Greenhouse (Körner et Hansen 2011), The Adaptive Greenhouse (Vanthoor 2011), Hortex (Rath 1992, 2011) et le modèle de serre aquaponique intégré (Goddek et Körner 2019). Au niveau de la recherche, certains modèles (c.-à-d. des modèles de simulation combinés à certaines technologies de serre) ont été mis au point qui pourraient être utilisés pour optimiser les investissements et les modifications structurelles de l'unité de production et du processus de production. Cependant, la plupart des systèmes comportent des environnements logiciels fermés qui ne peuvent être utilisés que par les développeurs, et beaucoup d'entre eux n'existent que dans un mode de recherche et n'ont pas de développement et d'acceptation de la part de l'industrie. Cependant, il n'existe pas encore de base commune pour le partage de modèles et l'élaboration de modèles collaboratifs. Par conséquent, la plupart des modélisateurs et des équipes de modélisation travaillent isolément en développant leurs propres modèles et codes. L'une des lacunes de cette procédure réside dans le fait que les modèles de simulation de serre sont développés en parallèle dans des environnements de recherche disparates, qui échouent dans la croissance et le développement coopératifs.
Tous les simulateurs de modèles de serre HP sont une compilation de sous-modèles qui dépendent de l'objectif d'intégrer l'interaction entre les plantes et les équipements de serre. La différenciation générale en deux parties dans les modèles de serre ainsi que dans le contrôle et la planification est la pousse et l'environnement racinaire. Des modèles assez complexes et différenciés ont été appliqués pour le climat de serre (Bot, 1993 ; de Zwart, 1996), et la croissance des cultures en serre a été modélisée de façon intensive dans les années 1990 pour les principales cultures de serre comme les tomates (Heuvelink, 1996), le concombre (Marcelis, 1994) et la laitue (Liebig et Alscher 1993). Toutefois, pour calculer l'absorption d'eau et de nutriments des cultures, il faut connaître le microclimat, c'est-à-dire le climat proche des organes végétaux et sur ceux-ci (Challa et Bakker, 1999). Il s'agit d'un problème permanent dans la modélisation en serre, car les variables microclimatiques, comme la température centrale des feuilles, sont très variables et dépendent de nombreux paramètres et variables. Une version d'un modèle de température foliaire utilisé dans un couvert de culture pour la température de culture (TsubC/sub) intégré sur des couches verticales (z) par Körner et al. (2007) intégrant des flux nets irradiatifs absorbés (Rsubn, a/sub, WMSUP2/SUP), des résistances de couche limite et des stomates (rsubb/sub et rsubs/sub, respectivement, smsup-1/ sup) et le déficit de pression de vapeur à la surface foliaire (VPDSubs/sub, Pa) dans la canopée est illustré ici, c.-à-d.
$Tc (Z) -T_A = \ frac { \ frac {1} { \ RHO_AC_P} (r_b (Z) +r_s (Z)) R_ {n, a} (z) - \ frac1 { \ gamma} VPD_s (z)} {1+ \ frac { \ delta} { \ gamma} + \ frac {r_s z}} {r_b (z)} + \ frac1 { \ rho_AC_P/4 \ sigma Ta^3} (r_b (z) +r_s (z))} $ (11.17)
avec température de l'air à effet de serre (Tsuba/sub, K), densité de l'air de pression de vapeur (ρsuba/sub, g msup-2/sup), constante de Stefan-Boltzmann (σ, WMSUP-2/SUP KSUP), capacité thermique spécifique de l'air (csubp/sub, J gsup-1/sup KSUP), constante psychrométrique (γ, Pa SUP-1/SUP) et la pente entre les vapeurs saturées pression et la température de l'air à effet de serre (δ, Pa KSUP-1/SUP).
La température foliaire est la partie centrale du modèle microclimatique, elle a des boucles de rétroaction vers plusieurs variables d'entrée et en particulier la résistance des stomates (souvent aussi utilisée comme sa conductance réciproque), et le calcul nécessite plusieurs étapes de simulation pour l'équilibre. Pour HP, dans le cadre du système aquaponique, cependant, la modélisation des flux d'eau et d'éléments nutritifs est la plus importante. Tous les bilans d'eau et d'éléments nutritifs dans un système fermé à boucle multiple sont contrôlés en fonction du taux d'évapotranspiration de la culture ETsubC/sub (chap. 8). Généralement, ETsubc/sub est calculé comme chaleur latente de l'évaporation, c'est-à-dire en termes d'énergie (λE, WMSUP2/SUP), et peut être en fonction de la température des feuilles exprimée dans différentes couches de canopée
$ \ lambda E (z) = ( \ frac { \ frac { \ delta} { \ gamma} R_ {n, a} (z) + \ frac { \ rho _ac_p} { \ gamma} ( \ frac1 {r_b (z)} + \ frac1 { \ rho _ac_p/4 \ sigma Ta^3} VPD_s (z)} {1+ \ frac { \ delta} { \ gamma} + \ frac {r_s (z)} {r_b (z)} + \ frac {1} { \ rho _ac_p/4 \ sigma Ta^3} (r_s (z) +r_b (z))} $ (11.18)
Pour calculer ETsubc/sub (L msup-2/sup), λE doit être multiplié par la constante LsubW/sub (chaleur de vaporisation de l'eau ; 2454 ⋅ 103 J kgsup-1/sup) et le poids spécifique de l'eau (9,789 kN ⋅ msup-3/sup à 20 ˚C).
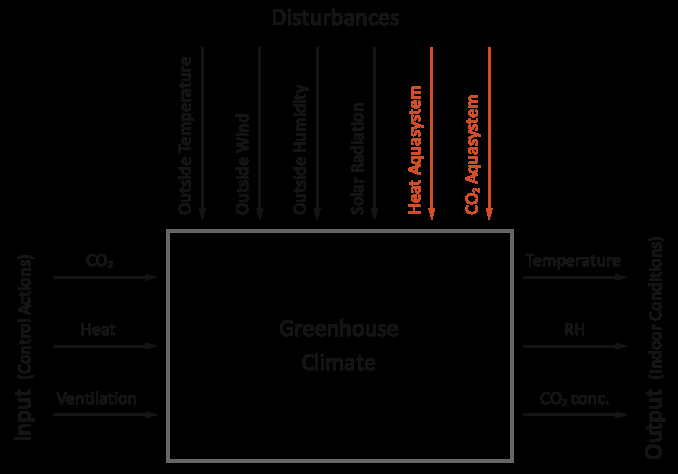
Fig. 11.17 Système d'entrée-sortie d'une serre
Cependant, l'équation (11.18) ne calcule que le flux d'eau à travers la culture, tandis que la façon la plus simple d'estimer l'absorption d'éléments nutritifs est l'hypothèse que les éléments nutritifs sont absorbés ou absorbés sous forme de dissous dans l'eau d'irrigation et en supposant qu'il n'existe aucune résistance chimique, biologique ou physique spécifique à un élément. En réalité, l'absorption des nutriments est une question très compliquée. Par conséquent, pour maintenir l'équilibre, tous les éléments nutritifs absorbés par la culture tels qu'ils sont contenus dans la solution nutritive doivent être ajoutés au système hydroponique (voir Chap. 8). Cependant, l'Eq. (11.18) ne calcule que l'Ec potentiel, tandis que des niveaux de potentiel trop élevés peuvent entraîner une transpiration plus élevée que les plantes peuvent supporter, et alors la perte potentielle d'eau peut dépasser l'absorption d'eau. Pour cela, la simple hypothèse de l'absorption des éléments nutritifs n'est pas satisfaisante. Comme décrit dans Chap. 10, les différents nutriments peuvent avoir des états différents et des états changeants avec, par exemple, le pH, tandis que la disponibilité de la plante dépend fortement du pH et de la relation entre les nutriments et l'un l'autre. En outre, le microbiome dans la zone racinaire joue un rôle important, qui n'est pas encore mis en œuvre dans les modèles. Certains modèles, cependant, font la différence entre les voies phloème et xylème. La grande quantité d'éléments nutritifs, cependant, n'est pas modélisée en détail pour l'équilibre aquaponique et le dimensionnement des systèmes, tandis que la façon la plus simple d'estimer l'absorption des éléments nutritifs est l'hypothèse que les nutriments sont absorbés ou absorbés sous forme de dissous dans l'eau d'irrigation et d'appliquer l'approche de calcul de l'ETC expliquée ci-dessus .
À des fins de contrôle, la serre est généralement considérée comme une boîte noire, où les conditions climatiques extérieures déterminent les entrées de perturbation, l'alimentation en COSub2/sous, le chauffage et la ventilation sont les entrées de contrôle, et le macro- et le microclimat de serre définissent la sortie du système (figure 11.17).
Pour contrôler la serre, les mesures visent à minimiser les impacts rapides des perturbations, c'est-à-dire à être en avance sur les changements attendus grâce à un contrôle intelligent. Pour cela, des actions de contrôle telles que la rétroaction et le feedforward sont utilisées (Chap. 8). Cependant, le meilleur contrôle peut être obtenu en utilisant un modèle complet de serre et en le combinant avec les prévisions météorologiques (Körner et Van Straten, 2008) pour obtenir un contrôle climatique optimal basé sur un modèle, comme l'a élaboré Van Ooteghem (2007).
11.6 Modélisation aquaponique multi-boucles
Original publication · Publié pour la première fois sur FarmHub Learn · Aquaponics Food Production Systems
Les conceptions aquaponiques traditionnelles comprennent des unités aquacoles et hydroponiques impliquant la recirculation de l'eau entre les deux sous-systèmes (Körner et al., 2017 ; Graber et Junge, 2009). Dans de tels systèmes aquaponiques à boucle unique, il est nécessaire de faire des compromis entre les conditions des deux sous-systèmes en termes de pH, de température et de concentration en nutriments, car les poissons et les plantes partagent un écosystème (Goddek et al., 2015). En revanche, les systèmes aquaponiques découplés à double boucle séparent les unités RAS et hydroponiques les unes des autres, créant ainsi des écosystèmes détachés présentant des avantages inhérents tant pour les plantes que pour les poissons. Récemment, il y a eu un intérêt accru pour la fermeture de la boucle en termes de nutriments et pour l'augmentation de l'efficacité des entrées-sorties. C'est pourquoi la reminéralisation (Goddek 2017 ; Emerenciano et al. 2017 ; Goddek et al. 2018 ; Yogev et al. 2016) et les boucles de dessalement (Goddek et Keesman 2018) ont été intégrées à la conception globale du système. Ces systèmes sont appelés système aquaponique multiboucle découplé (Goddek et al. 2016).
Le dimensionnement des sous-systèmes respectifs est fondamental pour avoir un système de contrôle et d'équilibre fonctionnel. Pour le dimensionnement des systèmes à boucle unique, une règle empirique simple est généralement utilisée, déterminant la superficie de culture hydroponique en fonction de l'apport journalier dans le RAS (Knaus et Palm 2017 ; Licamele 2009). Le degré plus élevé de complexité des systèmes à boucle multiple ne permet plus cette approche, car elle comporte des risques inhérents à la formulation de fausses hypothèses pour chaque sous-système. Il existe de plus en plus de littérature qui examine les bilans massiques pour les systèmes aquaponiques (Körner et al., 2017 ; Goddek et al., 2016 ; Reyes Lastiri et al., 2016 ; Karimanzira et al., 2016). Bien que certaines recherches aient été menées pour mettre au point des modèles numériques pour les systèmes aquaponiques à une et à plusieurs boucles, il n'existe pas d'étude unique qui intègre un modèle aquaponique à plusieurs boucles avec un modèle déterministe à effet de serre à grande échelle complété. Ceci est particulièrement pertinent pour le dimensionnement du système, puisque la croissance des plantes et l'absorption des nutriments dépendent de l'emplacement, la transpiration des cultures étant un facteur majeur. Concrètement, cela signifie que le climat à l'intérieur d'une serre — qui dépend fortement des conditions météorologiques extérieures — a un impact important sur la croissance des plantes en raison de facteurs environnementaux tels que l'humidité relative (RH), l'irradiation lumineuse, la température, les niveaux de dioxyde de carbone (COSub2/Sub), etc. incorporé dans la modélisation du microclimat en serre (Körner et al., 2007 ; Janka et al., 2018).
11.7 Outils de modélisation
Original publication · Publié pour la première fois sur FarmHub Learn · Aquaponics Food Production Systems
En aquaponie, des diagrammes de flux ou des diagrammes de stock et de flux (SFD) et des diagrammes de boucle causale (CLD) sont couramment utilisés pour illustrer la fonctionnalité du système aquaponique. Dans ce qui suit, l'organigramme et les CLD seront décrits.
11.7.1 Organigrammes
Pour obtenir une compréhension systémique de l'aquaponie, les organigrammes avec les composants les plus importants de l'aquaponie sont un bon outil pour montrer comment les matériaux circulent dans le système. Cela peut aider, par exemple, à trouver des composants manquants et des flux déséquilibrés et à influencer principalement les déterminants des sous-processus. La figure 11.18 montre un organigramme simple en aquaponie. Dans l'organigramme, la nourriture et l'eau du poisson sont ajoutées à l'aquarium, où l'alimentation est prise par les poissons pour la croissance, l'eau est enrichie avec les déchets de poisson et l'eau enrichie en nutriments est ajoutée au système hydroponique pour produire de la biomasse végétale. À partir de l'organigramme, un CLD illustré à la figure 11.19 peut être facilement construit.
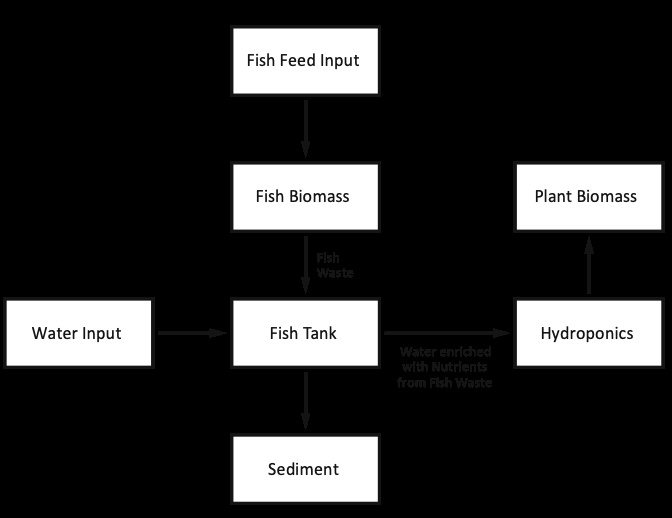
Fig. 11.18 Exemple d'un organigramme en aquaponie (seulement l'échange RAS et HP)
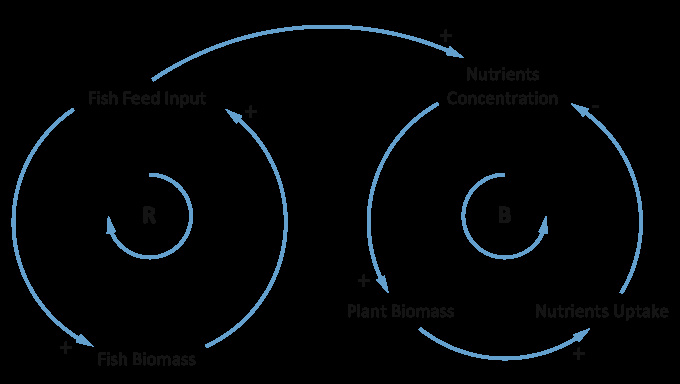
Fig. 11.19 Diagramme de causalité (CLD) illustrant des exemples d'un renforcement et d'une boucle équilibrée dans les systèmes aquaponiques. La boucle de renfort (R) est celle dans laquelle une action produit un résultat qui influe davantage sur la même action et qui entraîne par conséquent une croissance ou un déclin, où comme une boucle d'équilibrage (B) tente d'amener les choses à l'état désiré et de les y maintenir (p. ex. régulation de la température dans la maison)
11.7.2 Diagrammes de boucle causale
Les diagrammes de boucle causale (CLD) sont un outil pour montrer la structure de rétroaction d'un système (Sterman 2000). Ces diagrammes peuvent créer une base pour comprendre des systèmes complexes en visualisant l'interconnexion de différentes variables au sein d'un système. Lorsque vous dessinez un CLD, les variables sont illustrées en tant que nœuds. Ces nœuds sont connectés par des arêtes, qui forment une connexion entre deux variables en conséquence. La figure 11.19 montre que ces arêtes peuvent être marquées comme positives ou négatives. Cela dépend de la relation entre les variables les unes aux autres. Lorsque les deux variables changent dans la même direction, on peut parler d'un lien causal positif. Un lien de causalité négatif provoque donc un changement dans des directions opposées. Lors de la connexion de deux nœuds des deux côtés, l'un crée un cycle fermé qui peut avoir deux caractéristiques : (1) une boucle _renforcement qui décrit une relation causale, créant une croissance exponentielle ou un effondrement dans la boucle ou (2) une boucle équilibrage dans laquelle les influences causales maintiennent le système dans un équilibre . La figure 11.19 montre un exemple des deux types de boucles.
Illustrons ceci (Fig. 11.20) pour l'organigramme de la Fig. 11.18.
Il est évident que CLD et SFD sont très utiles pour la compréhension du système, lorsque le modèle ne nécessite pas de précision numérique. Si une précision numérique est requise, le procédé doit être étudié plus avant à l'aide d'un diagramme d'outils dynamiques (SDTD) et modélisé dans un logiciel de simulation dynamique de système. Par exemple, le CLD de la figure 11.20 peut être augmenté par des équations différentielles à une SDTD (figure 11.21).
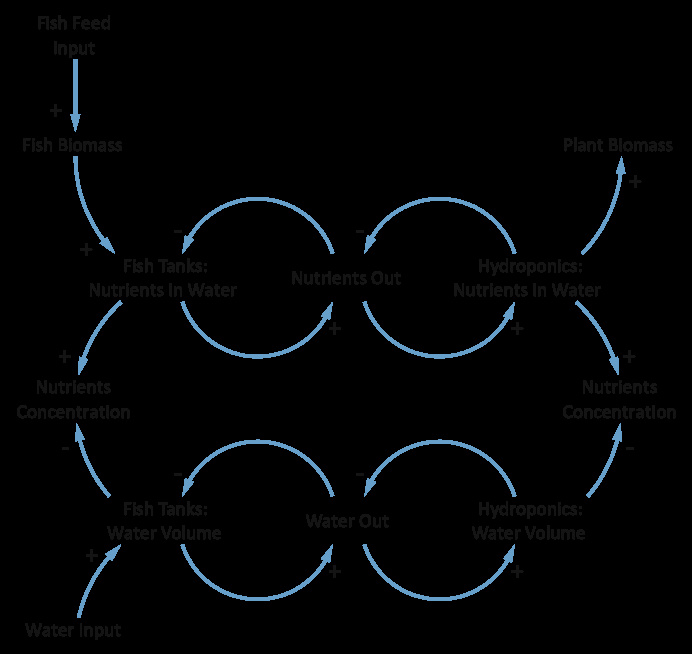
Fig. 11.20 Exemple CLD pour l'échange RAS et HP
À partir de la SDTD, nous pouvons maintenant voir à quoi ressemblent les équations différentielles pour l'équilibre nutritionnel dans le réservoir. Nous savons que le débit d'éléments nutritifs sortant de l'aquarium (msubXfout/sub) doit être le débit d'eau (qsubfout/sub) multiplié par la concentration dans le cours d'eau sortant (csubXf/sub) :
$M_ {xfout} == C_ {xf} Q_ {fout} $
En supposant qu'une cuve agitée donne la concentration en éléments nutritifs de la cuve à fink :
$C_ {xf} = M_ {xf} /V_F$
Les équations différentielles de la partie RAS peuvent être dérivées de :
$xv_f/dt=q_ {fin} -Q_ {fout} $
$dm_ {xf} /dt=m_ {xfin} -M_ {xfout} $,
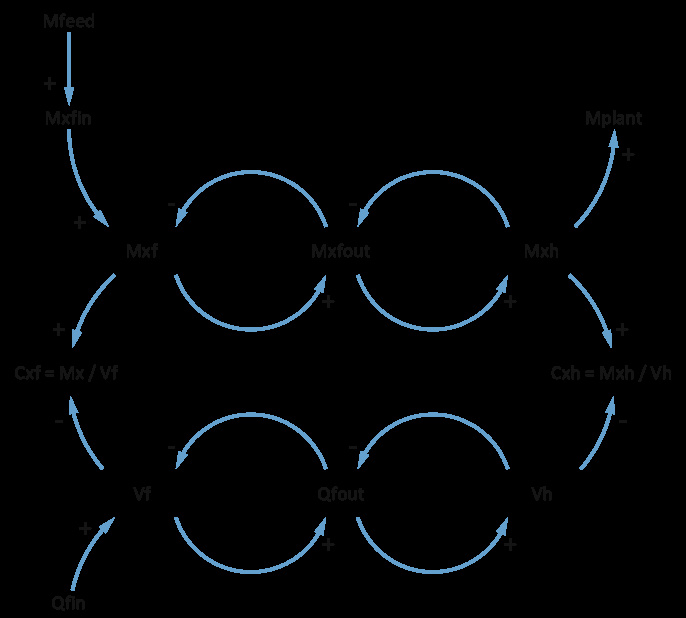
Fig. 11.21 Exemple de SDTD pour l'échange RAS et HP
et pour la concentration
$dc/dt= (Q_ {fin} C_ {xfin} -Q_ {fout} C_ {xf} /V_F) $
11.7.3 Logiciels
En plus des langages informatiques de base, tels que Fortran, C++ et Python, pour un calcul rapide et une implémentation entièrement spécifique à l'utilisateur, toutes sortes d'outils logiciels avancés sont disponibles. Ces outils logiciels avancés offrent une variété d'environnements, de concepts et d'options. Nous pouvons modéliser des variables d'état, des équations différentielles, des connexions et des boucles. En outre, nous pouvons utiliser le modèle pour les simulations, l'analyse de stabilité, l'optimisation et le contrôle.
Les principales raisons de la modélisation d'un système sont de le comprendre et de le contrôler. Par conséquent, le modèle aide à prédire la dynamique ou le comportement du système. Les applications logicielles pourraient nous permettre d'effectuer trois tâches en conséquence : a) la modélisation elle-même, b) les simulations du ou des modèles et c) l'optimisation du modèle et/ou de la simulation.
Le logiciel Mathematica est destiné à l'analyse fonctionnelle des problèmes mathématiquement décrits (Wolfram 1991). Le concept est basé sur l'approche LISP (McCarthy et Levin 1965.), un langage de programmation fonctionnel très efficace. La syntaxe est assez simple, et ce logiciel est populaire en mathématiques, physique et biologie des systèmes. En particulier, le module Ndsolve aide à résoudre des équations différentielles ordinaires, tracer la solution et trouver des valeurs spécifiques.
Des outils très similaires pour résoudre les ODE sont proposés par Maple. Ce logiciel est très puissant ; entre ses caractéristiques appartiennent solution de problèmes de limites, des solutions exactes et des approximations mathématiques. Copasi (simulateur de voies complexes) est un outil logiciel pour la simulation et l'analyse de réseaux biochimiques via des équations différentielles ordinaires.
SageMath est un logiciel libre libre de mathématiques. Le logiciel est basé sur Python et facilite la simulation de modèles ODE. Le logiciel Data2Dynamics est une collection de méthodes numériques pour la modélisation dynamique quantitative et est un langage complet de modélisation et de description des données. Le logiciel permet l'analyse des prévisions de bruit, d'étalonnage et d'incertitude et dispose de bibliothèques de modèles biologiques.
Probablement le meilleur langage de simulation est Simula (probablement plus utilisé) et Simula 67, considéré au début comme un paquet pour Algol 60. Ce sont les premiers langages entièrement orientés objet, introduisant les classes, l'héritage, les sous-classes, garbage collector et autres. Au début du XXIe siècle, les créateurs Ole-Johan Dahl et Kristen Nygaard ont reçu la médaille IEEE John von Neumann et le prix A. M. Turing (Dahl et Nygaard 1966).
L'idée derrière Simula était que les objets ont la vie ; ils commencent à exister, font leur être et cessent. Les objets sont définis comme des classes générales (code modèle), et chaque instance d'un tel objet a une « vie » dans la simulation. La langue était assez difficile à apprendre. Cependant, il offrait la possibilité de modéliser les processus objet par objet et d'exécuter la simulation de leur vie. La simulation s'exécute sur la base d'événements discrets, et il est possible de simuler des objets en co-routine. Plus de tâches peuvent démarrer, exécuter, détacher, reprendre et terminer dans des périodes de temps superposées dans des processus quasi parallèles. Le matériel d'aujourd'hui nous permet de modéliser et de simuler des threads entièrement parallèles. Cependant, de nombreux concepts Simula étaient déjà utilisés pour le développement d'autres langages, à savoir Java, C/C++/C \ # et les bibliothèques d'objets persistants comme DOL (Soukup et Machacek 2014). Le successeur actuel de Simula est BETA, étendant et présentant les possibilités d'héritage dans les concepts de (sous-) classes imbriquées (avec l'heure locale imbriquée) et les modèles (Madsen et al., 1993).
C'est toujours une option pour utiliser l'un des langages orientés objet et des bibliothèques spécifiques et programmer tout le code nécessaire pour un modèle spécifique. D'autre part, les environnements de programmation graphique déjà existants permettent de concevoir et de relier la structure du système modélisé à partir de bibliothèques d'objets (générateur de signaux, somme, intégrateur, etc.), de les paramétriser et d'exécuter la simulation en temps virtuel.
Un autre logiciel populaire pour la simulation est MathWorks Simulink, qui se décrit comme un outil de conception basé sur un modèle. L'environnement permet de combiner et de paramétrer des blocs prédéfinis (à partir d'un large éventail de bibliothèques) et des diagrammes en sous-systèmes. La programmation se fait en utilisant des blocs graphiques et leurs connexions dans des parties fonctionnelles avec des boucles de rétroaction. L'environnement est largement utilisé pour le contrôle, l'automatisation et le traitement du signal. Une autre possibilité est d'intégrer son propre code du langage MathWorks Matlab ou d'utiliser diverses boîtes à outils (Jablonsky et al. 2016). L'un d'eux, senssB, est axé sur l'analyse de sensibilité et permet d'importer d'autres modèles en utilisant le langage de balisage de la biologie des systèmes. Pour seulement la visualisation des modèles existants dans Simulink, il est également possible d'utiliser le visualiseur de modèles très rapide DiffPlug. PottersWheel prend en charge la modélisation des systèmes dynamiques dépendants du temps, l'étalonnage des paramètres, l'analyse et la prévision. Un outil intéressant est la conception expérimentale pour la vérification du modèle.
Pour la modélisation et l'analyse de la dynamique du système, une stratégie similaire est utilisée par l'application logicielle Stella Architect isee, où le modèle est composé de blocs reliés par des relations. Stella permet la modélisation et la simulation de types d'applications très différents, allant des besoins médicaux à la construction de bâtiments aux avions. Stella est parfois commercialisé comme logiciel iThink. Le logiciel Powersim a été conçu à l'origine à des fins économiques. Cependant, il est devenu un outil plus sophistiqué, y compris des simulations électroniques, solaires ou de traitement médicamenteux. L'ancien développeur de Powersim produit actuellement un logiciel similaire pour des tâches plus complexes Dynaplan Smia. Vensim est un système de modélisation des relations Big Data de systèmes réels. Le pouvoir de Vensim est qu'il permet le suivi causal, l'analyse de sensibilité, l'étalonnage et la simulation intensive. Cependant, le logiciel est également capable de traiter un large éventail de systèmes réels simples et complexes (Hassan et al. 2016). Le logiciel de dynamique système True-World facilite des simulations dynamiques complexes à corps multiples en temps discret et continu. La modélisation commence essentiellement à partir des soldes.
Les approches complètement différentes de la modélisation et de la simulation sont les automates cellulaires ou les approches de modélisation basées sur des agents, popularisées par Stephen Wolfram (Wolfram, 1991) comme un nouveau type de science. L'approche est parfois aussi appelée le jeu de la vie. La modélisation est mise en œuvre par le biais d'interactions d'individus autonomes (Macal et North 2005). Les simulations montrent un comportement émergent et sont donc très populaires en biologie des systèmes pour la dynamique des populations. Le logiciel NetLogo est un outil simple pour la modélisation et la simulation basées sur des agents de base (et avancées, également), où des descriptions simples et des paramétrages créent des modèles puissants. Le logiciel permet de visualiser le développement du temps et l'induction du bruit (Stys et al. 2015). L'application est écrite en Java, ce qui limite parfois la mémoire disponible. Probablement l'effort le plus important dans la modélisation multi-agents a été réalisé par le développement du logiciel Wolfram, qui est la continuation du populaire Mathematica, avec des outils étendus pour la modélisation et la simulation. Il a mis la modélisation similaire à Simulink dans une combinaison plus attrayante et crée également des possibilités de modélisation basée sur des agents et beaucoup plus d'outils pour d'autres disciplines mathématiques (statistiques multivariées, exploration de données, optimisation globale).
anyLogic est un logiciel très intéressant pour les problèmes de flux — information, argent, trafic, logistique et minier. La simulation résout le problème de débit optimal dans le système conçu avec un minimum d'effort et une efficacité maximale. Les concepts utilisés sont la dynamique du système et la modélisation basée sur des agents et des événements discrets. Il offre également des hybrides entre différents concepts de modélisation. Le logiciel est utile, par exemple, dans les simulations de propagation épidémique (Emrich et al., 2007).
Un autre outil de modélisation basé sur des agents est Insight Maker, pour la simulation de l'interaction des populations dans l'espace géographique ou réseau. Le logiciel prend en charge la construction de modèles graphiques, l'utilisation de plusieurs paradigmes, l'utilisation de scripts intégrés et l'optimisation des outils (Fortmann-Roe 2014).
Pour la modélisation elle-même, la description des variables d'état, la solution des ODE, la paramétrisation et l'analyse des dépendances temporelles, le premier groupe de logiciels, de Mathematica à Matlab, pourrait être utilisé sans hésitation. Ils représentent des outils puissants pour la modélisation. Dans le cas d'analyses plus complexes, telles que le Big Data, la simulation, l'induction du bruit, l'optimisation, la sensibilité et la stochastique, des outils plus avancés sont nécessaires, avec une approche orientée objet, impliquant également une induction plus élevée dans la syntaxe des langages de programmation.
11.8 Discussion et conclusions
Original publication · Publié pour la première fois sur FarmHub Learn · Aquaponics Food Production Systems
L'aquaponie est des systèmes techniques et biologiques complexes. Par exemple, les explications possibles pour les poissons qui ne poussent pas correctement peuvent être de petites rations alimentaires, une mauvaise qualité de l'eau, des problèmes techniques causant le stress, etc. En raison de la lenteur intrinsèquement de la biologie, les recherches scientifiques sur la validité de ces explications seraient fastidieuses et nécessiteraient plusieurs essais expérimentaux pour obtenir tous les facteurs importants et leurs interactions, exigeant beaucoup d'installations, d'expertise, de temps de recherche et d'actifs financiers. Par conséquent, la question de la modélisation des systèmes aquaponiques a été abordée dans le présent chapitre. En aquaponie, la modélisation est nécessaire pour différents objectifs : (i) perspection/compréhension, (ii) analyse, (iii) estimation et (iv) gestion et contrôle. Pour tous ces objectifs, des modèles appropriés sont nécessaires. Par exemple, pour atteindre les objectifs (ii) et (iii), on peut utiliser une approche empirique qui utilise des modèles statistiques pour analyser les données issues d'essais expérimentaux antérieurs dans le but d'extraire autant d'informations que possible sans procéder à de nouvelles expériences. Les modèles statistiques peuvent révéler les facteurs les plus importants qui influent sur la production de poissons et de cultures dans les systèmes aquaponiques. Les expériences futures pourraient se concentrer sur ces facteurs, rendant ainsi plus efficace l'utilisation de ressources de recherche coûteuses.
La complexité des systèmes aquaponiques, en raison de leur caractère de rétroaction et des interactions entre le système RAS et le système hydroponique, le traitement de l'eau et la croissance des poissons, implique que, pour atteindre les objectifs (i) et (iv), c'est-à-dire comprendre ou optimiser une plante (configuration, taille, poisson, alimentation, débit, etc.) en ce qui concerne au coût, à la stabilité, à la robustesse et à la qualité de l'eau, des modèles théoriques non triviaux de la plupart des composants du système décrits dans le présent chapitre sont requis. L'avantage de ces modèles théoriques présentés par rapport aux modèles statistiques est leur plus grande capacité à analyser le processus sous-jacent à l'aquaponie et la possibilité de modéliser l'aspect temporel (dynamique). Les modèles statistiques confirment ou réfutent simplement une hypothèse et dans quelle mesure les variables covarient, mais ne donnent aucune preuve des processus sous-jacents. D'autre part, les modèles théoriques permettent de simuler les processus selon une hypothèse, de comparer les simulations avec les données observées, d'évaluer à la fois l'hypothèse et le modèle et de faire des adaptations. La validité des modèles statistiques peut ne pas dépasser la plage opérationnelle pour laquelle ils ont été formés, alors que les modèles théoriques peuvent être définis et utilisés pour un large éventail d'environnements, à condition que les modèles soient validés pour ces gammes avant leur application. Par exemple, le modèle de régression multiple utilisé pour évaluer les relations entre la croissance des poissons avec Oreochromis niloticus comme espèce de poisson et les variables environnementales dans une installation aquaponique en Allemagne ne peut pas être facilement appliqué à l'Espagne avec Cyprinus carpio, alors qu'un modèle théorique décrivant les (p. ex. comportement du poisson, aquaculture, écologie de l'eau douce) en tant qu'équations mathématiques peuvent être ajustées relativement facilement parce que le poisson et le processus écologique sous-jacent à ce modèle sont essentiellement les mêmes pour les deux sites.
Néanmoins, les modèles théoriques exigent également la détermination de certains paramètres tels que les constantes de réaction et la vitesse de décantation de la substance dans la cuve de décantation. Ceci est généralement réalisé à partir d'études empiriques d'une installation ou de très peu d'installations ou, dans la plupart des cas, à partir d'études publiées antérieurement (sources secondaires). Les études fondées sur des sources secondaires ont des limites imposées par la structure et la quantité données des données disponibles, qui n'existent pas lorsque les données proviennent d'un milieu expérimental conçu spécialement pour l'étude. Cependant, l'estimation des paramètres du modèle à l'aide de données expérimentales provenant d'une seule installation aquaponique peut poser des problèmes quant à la généralisation et à la réplication des résultats en raison des conditions particulières présentes dans l'étude. La rareté des données impose parfois de fortes restrictions aux modèles qui en limitent l'aspect pratique. Le développement d'études pour l'estimation des paramètres à l'aide de données primaires utilisant un plus grand nombre d'installations aquaponiques que les études antérieures permet de surmonter les limites actuelles et d'obtenir des résultats meilleurs et fiables. Cependant, ce n'est pas un défi facile pour les chercheurs en aquaponie.
La simulation de l'aquaponie avec les modèles mathématiques dans un large éventail de conditions de gestion permettra d'améliorer la compréhension de l'aquaponie, de vérifier différentes configurations aquaponiques et de montrer la voie aux stratégies les plus prometteuses pour améliorer les installations aquaponiques. Encore une fois, cela peut conduire à un moyen plus efficace de mener des expériences.
Certains outils de modélisation ont également été présentés dans ce chapitre. Traditionnellement, les diagrammes de stock et de flux (SFD) ont été utilisés pour comprendre les processus comme outils de soutien à l'analyse quantitative. Ils sont utilisés pour comprendre le flux et les flux des quantités, mais n'ont pas la capacité d'illustrer l'information associée au flux et aux flux. Le diagramme de boucle causale (CLD) peut être utilisé pour transférer un système SFD complexe dans des structures de rétroaction simplifiées compréhensibles. Ensemble, les SFD et les CLD définissent pleinement le système d'équations différentielles. Si seulement une simple compréhension qualitative du système est nécessaire, alors CLD et SFD peuvent suffire, mais si la réponse nécessite une précision numérique, le problème peut être étudié plus avant avec les diagrammes d'outils dynamiques du système (SDTD) et ensuite être modélisé dans un outil logiciel de simulation numérique.