Source material
Chapitre 3 La recirculation des technologies aquacoles
Carlos A. Espinal et Daniel Matulić
Résumé La technologie de recirculation de l'aquaculture, qui comprend l'aquaponie, est en cours de développement depuis 40 ans à partir d'une combinaison de technologies dérivées des secteurs du traitement des eaux usées et de l'aquaculture. Jusqu'à récemment, les exploitations de systèmes aquacoles en recirculation (RAS) étaient relativement petites par rapport à d'autres types de production aquacole moderne. Au cours des deux dernières décennies, le développement de cette technologie a considérablement augmenté, avec une acceptation et une échelle accrues sur le marché. Le présent chapitre donne un bref aperçu de l'histoire, des processus de contrôle de la qualité de l'eau, des nouveaux développements et des défis continus du SAR.
Mots-clés Systèmes aquacoles à recirculation (RAS) · Traitement des eaux usées · Biofiltre · Dénitrification · Technologie membranaire
Contenu
- 3.1 Introduction
- 3.2 Examen du contrôle de la qualité de l'eau dans le RAS
- 3.3 Développements dans le RAS
- 3.4 Questions relatives au bien-être des animaux
- 3.5 Défis d'évolutivité dans le RAS
- 3.6 RAS et Aquaponie
- Références
—
A. Espinal
Landing Aquaculture, Oirschot, Pays-Bas
Matulić
Département de la pêche, de l'apiculture, de la gestion du gibier et de la zoologie spéciale, Faculté d'agriculture, Université de Zagreb, Zagreb, Croatie
© L'auteur (s) 2019 35
S. Goddek et coll. (éd.), Aquaponics Food Production Systems, https://doi.org/10.1007/978-3-030-15943-6_3
—
Références
Altinok I, Grizzle JM (2004) Excrétion de l'ammoniac et de l'urée par des espèces de poissons phylogénétiquement diversifiées dans de faibles salinités. Aquaculture 238:499 —507. https://doi.org/10.1016/j.aquaculture.2004. 06.020
Ashley PJ (2007) Bien-être des poissons : enjeux actuels en aquaculture. Appl Anim Behav Sci 104 (2—4) :199—235. https://doi.org/10.1016/j.applanim.2006.09.001
Ashley KI, Mavinic DS, Hall KJ (2008) Performance d'oxygénation d'un aérateur hypolimnétique Speece Cone à l'échelle de laboratoire : évaluation préliminaire. Can J Civ Eng 35:663 —675. https://doi.org/ 10.1139/L08-011
Attramadal K, Salvesen I, Xue R, Øie G, Størseth TR, Vadstein O, Olsen Y (2012a) La recirculation comme stratégie de contrôle microbien possible dans la production de larves marines. Aquac Eng 46:27 —39. https://doi.org/10.1016/j.aquaeng.2011.10.003
Attramadal K, Øie G, Størseth TR, Morten OA, Vadstein O, Olsen Y (2012b) Effets d'une ozonation modérée ou d'une irradiation UV de haute intensité sur l'environnement microbien dans la RAS pour les larves marines. Aquaculture 330— 333:121 —129. https://doi.org/10.1016/j.aquaculture.2011.11. 042
Attramadal KJK, Truong TMH, Bakke I, Skjermo J, Olsen Y, Vadstein O (2014) RAS et la maturation microbienne comme outils de sélection K des communautés microbiennes améliorent la survie des larves de morue. Aquaculture 432:483-490. https://doi.org/10.1016/j.aquaculture.2014.05.052
Attramadal K, Minniti G, Øie G, Kjørsvik E, Østensen M-A, Bakke I, Vadstein O (2016) La maturation microbienne de l'eau d'admission à différentes capacités de charge affecte le contrôle microbien dans les bassins d'élevage des larves de poissons marins. Aquaculture 457:68 —72. https://doi.org/10.1016/j.aquaculture. 2016.02.015
Avnimelech Y (1999) Rapport carbone/azote comme élément de contrôle dans les systèmes aquacoles. Aquaculture 176 (3—4) :227—235. https://doi.org/10.1016/S0044-8486(99)00085-X
Badiola M, Mendiola D, Bostock J (2012) Analyse des systèmes aquacoles recirculants (RAS) : principaux enjeux sur la gestion et les défis futurs. Aquac Fr 51:26 —35
Badiola M, Basurko OC, Gabiña G, Mendiola D (2014) Audits énergétiques dans les systèmes aquacoles recirculants (RAS) : un moyen de garantir la durabilité. Document de conférence AE2014. https ://doi.org/10.13140/2.1.1218.5604
Barreto RE, Volpato GL (2004) Attention à l'utilisation de la fréquence ventilatoire comme indicateur du stress chez les poissons. Processus Behav 66:43 —51. https://doi.org/10.1016/j.beproc.2004.01.001
Bart AN, Clark J, Young J, Zohar Y (2001) Mesures du bruit ambiant sous-marin dans les systèmes aquacoles : une enquête. Aquac Eng 25:99 —110. https://doi.org/10.1016/S0144-8609(01)00074-7
Barton B (2002) Stress chez les poissons : une diversité de réponses avec une référence particulière aux changements dans les corticostéroïdes circulants. Integr Comp Biol 42:517 —525
Becke C, Steinhagen D, Schumann M, Brinker A (2016) Conséquences physiologiques pour la truite arc-en-ciel (Oncorhynchus mykiss) d'une exposition à court terme à une charge solide accrue en suspension. Aquac Eng. https://doi.org/10.1016/j.aquaeng.2016.11.001
Blancheton JP, Attramadal KJK, Michaud L, Roque d'Orbcastel E, Vadstein O (2013) Aperçu de la population bactérienne dans les systèmes aquacoles et de ses implications. Aquac Eng 53:30 —39. https ://doi.org/10.1016/j.aquaeng.2012.11.009
Bock E, Sundermeyer-Klinger H, Stackerbrandt E (1983) Nouvelle bactérie nitrinteoxydante lithoatotrophique facultative. Arch Microbiol 136:281-284. https://doi.org/10.1007/BF00425217
Bovendeur J, Eding EH, Henken AM (1987) Conception et performance d'un système de recirculation de l'eau pour la culture à haute densité du poisson-chat africain Clarias-Gariepinus (Burchell 1822). Aquaculture 63:329 —353. https://doi.org/10.1016/0044-8486(87)90083-4
Browdy CL, Ray AJ, Leffler JW, Avnimelech Y (2012) Systèmes d'aquaculture bioflocs. Dans : Tidwell JH (ed) Systèmes de production aquacole. Wiley (Oxford)
Bruhn JB, Nielsen KF, Hjelm M, Hansen M, Bresciani J, Schulz S, Gram L (2005) Écologie, activité inhibitrice et morphogenèse d'une bactérie antagoniste marine appartenant au clade Roseobacter. Appl Environ Microbiol 71:7263-7270. https://doi.org/10.1128/AEM.71. 11.7263-7270.2005
Calabrese S, Nilsen TO, Kolarevic J, Ebbesson LOE, Pedrosa C, Fivelstad S, Hosfeld C, Stefansson SO, Terjesen BF, Takle H, Martins CIM, Sveier H, Mathisen F, Imsland AK, Handeland SO (2017) Limites de densité de stockage pour le saumon atlantique post-saumons (Mo salar_ L.) en mettant l'accent sur la performance de la production et bien-être. Aquaculture 468 (1) :363—370. https://doi.org/10.1016/j. aquaculture.2016.10.041
Camargo JA, Alonso A (2006) Effets écologiques et toxicologiques de la pollution par l'azote inorganique dans les écosystèmes aquatiques : une évaluation globale. Environ Int 32:831 —849. https://doi.org/10.1016/j. envint.2006.05.002
Chen S, Coffin DE, Malone RF (1994) Contrôle des solides en suspension dans les systèmes aquacoles en recirculation. Dans : Timmons MB, Losordo MC (éd.) Systèmes de réutilisation de l'eau en aquaculture : conception et gestion techniques. Elsevier, Amsterdam, pp. 61—100
Christianson L, Lepine C, Tsukuda S, Saito K, Summerfelt S (2015) Efficacité de l'élimination des nitrates des biofiltres de dénitrification autotrophe à base de soufre fluidisé pour les systèmes aquacoles en recirculation. Aquac Eng:10-18. https://doi.org/10.1016/j.aquaeng.2015.07.002
Colt J (1991) Systèmes de production aquacole. J Anim Sci 69:4183 —4192. https://doi.org/10.2527/ 1991.69104183x
Colt J (2006) Exigences relatives à la qualité de l'eau pour les systèmes de réutilisation. Aquac Eng 34 (3) :143—156. https://doi. org/10.1016/j.aquaeng.2005.08.011
Colt J, Bouck G (1984) Conception de colonnes emballées pour le dégazage. Aquac Eng 3:251 —273. https ://doi.org/10.1016/0144-8609 (84) 90007-4
Colt JE, Watten BJ (1988) Applications de l'oxygène pur dans la pisciculture. Aquac Eng 7:397 —441. https://doi.org/10.1016/0144-8609(88)90003-9
Conte FS (2004) Stress et bien-être des poissons d'élevage. Appl Anim Behav Sci 86:205 —223. https ://doi.org/10.1016/j.applanim.2004.02.003
Couturier M, Trofimencoff T, Buil JU, Conroy J (2009) Élimination des solides dans une ferme de saumonolts en recirculation. Aquac Eng 41:71 —77. https://doi.org/10.1016/j.aquaeng.2009.05.001
Cripps SJ, Bergheim A (2000) Gestion et élimination des solides pour les systèmes de production d'aquaculture terrestre intensive. Aquac Eng 22:33 —56. https://doi.org/10.1016/S0144-8609(00)000315
Crossley PL (2004) Sous-irrigation dans l'agriculture des zones humides. Valeurs de bourdonnement agriques 21 (2/3) :191—205. https://doi.org/10.1023/B:AHUM.0000029395.84972.5e. Consulté le 18 déc. 2017
Dabrowska H, Dabrowski K, Meyerburgdorff K, Hanke W, Gunther KD (1991) L'effet de fortes doses de vitamine C et de magnésium sur les réponses au stress chez la carpe commune, Cyprinus-Carpio. Comp Biochem Physiol A 99:681 —685. https://doi.org/10.1016/0300-9629(91)90150-B
Daims H, Lebedeva EV, Pjevac P, Han P, Herbold C, Albertsen M, Jehmlich N, Palatinszky M, Vierheilig J, Bulaev A, Kirkegaard RH, von Bergen M, Rattei T, Bendinger B, Nielsen PH, Wagner M (2015) Nitrification complète par _Nitrification - bactéries. Nature 528:504 —509. https ://doi.org/10.1038/nature16461
Davidson J, Summerfelt S (2004) Profils de rinçage, de mélange et de vitesse de l'eau dans de grands réservoirs circulaires de type Cornell à double drain (10 et 150 m3). Aquac Eng 32:245 —271. https://doi. org/10.1016/j.aquaeng.2004.03.009
Davidson J, Bebak J, Mazik P (2009) Les effets du bruit de production aquacole sur la croissance, le facteur de condition, la conversion des aliments et la survie de la truite arc-en-ciel, Oncorhynchus mykiss. Aquaculture 288 (3—4) :337—343. https://doi.org/10.1016/j.aquaculture.2008.11.037
Davidson J, Good C, Welsh C, Summerfelt S (2014) Comparaison des effets des nitrates élevés et faibles sur la santé, la performance et le bien-être des truites arc-en-ciel juvéniles Oncorhynchus mykiss dans les systèmes aquicoles recirculant dans l'eau. Aquac Eng 59:30 —40. https://doi.org/10.1016/j. aquafra.2014.01.003
Davidson J, Good C, Williams C, Summerfelt S (2017) Évaluation des effets chroniques du nitrate sur la santé et le rendement du saumon atlantique post-smolt Salmo salar dans les systèmes d'aquaculture en recirculation d'eau douce. Aquac Fr 79:1 —8
Dawkins MS (1998) Évolution et bien-être animal. Q Rev Biol 73:305-328. https://doi.org/10. 1086/420307
De Carvalho RAPLF, Lemos DEL, Tacon AGJ (2013) Performance des réservoirs à simple et double drain en termes de profil de vitesse de l'eau et de rinçage des solides pour des études in vivo de digestibilité chez les crevettes juvéniles. Aquac Eng 57:9 —17. https://doi.org/10.1016/j.aquaeng.2013.05.004
De Ionno PN, Wines GL, Jones PL, Collins RO (2007) Évaluation bioéconomique d'un système de grossissement de poissons recirculant à l'échelle commerciale — une perspective australienne. Aquaculture 259 (1) :315—327. https://doi.org/10.1016/j.aquaculture.2006.05.047
Defoirdt T, Boon N, Sorgeloos P, Verstraete W, Bossier P (2007) Alternatives aux antibiotiques pour lutter contre les infections bactériennes : vibriose luminescente en aquaculture à titre d'exemple. Tendances Biotechnol 25:472 —479. https://doi.org/10.1016/j.tibtech.2007.08.001
Defoirdt T, Boon N, Sorgeloos P, Verstraete W, Bossier P (2008) Détection du quorum et extinction du quorum chez Vibrio harveyi : leçons tirées du travail in vivo. ISME J 2:19 -26. https://doi. org/10.1038/ismej.2007.92
Díaz V, Ibáñez R, Gómez P, Urtiaga AM, Ortiz I (2012) Cinétique des composés azotés dans un système commercial d'aquaculture en recirculation marine. Aquac Eng 50:20 —27. https://doi.org/10. 1016/j.aquafra.2012.03.004
Dolan E, Murphy N, O'Hehir M (2013) Facteurs influençant la sélection optimale du filtre à tambour micro-écran pour les systèmes d'aquaculture en recirculation. Aquac Eng 56:42 —50. https://doi.org/10.1016/ j.aquaeng.2013.04.005
Drennan DG, Hosler KC, Francis M, Weaver D, Aneshansley E, Beckman G, Johnson CH, Cristina CM (2006) Évaluation et évaluation normalisées des biofiltres. II. Point de vue du fabricant et de l'utilisateur. Aquac Eng 34:403 —416. https://doi.org/10.1016/j.aquaeng.2005.07.001
Duncan IJ (2005) Évaluation scientifique du bien-être des animaux : animaux d'élevage. Rev Sci Tech 24:483 —492
Ebeling JM, Timmons MB (2012) Systèmes aquacoles recirculants. Dans : Tidwell JH (ed) Systèmes de production aquacole. Wiley (Oxford)
Ebeling JM, Timmons MB, Bisogni JJ (2006) Analyse technique de la stoechiométrie de l'élimination photoautotrophique, autotrophique et hétérotrophe de l'azote ammoniaque dans les systèmes aquacoles. Aquaculture 257:346 —358. https://doi.org/10.1016/j.aquaculture.2006.03.019
EIFAC/CIEM (1980) Conférence mondiale sur les systèmes de flux et de recirculation, Stavanger (Norvège) 1980 et Conférence mondiale sur l'aquaculture de 1981, Venise (Italie)
Ellis T, Scott AP, Bromage N, North B, Porter M (2001) Qu'est-ce que la densité d'ensemencement ? Truite Nouvelles 32:35 —37
Emparanza EJM (2009) Problèmes affectant la nitrification dans le RAS commercial avec des biofiltres à lit fixe pour les salmonidés au Chili. Aquac Eng 41:91 —96. https://doi.org/10.1016/j.aquaeng. 2009.06.010
Eshchar M, Mozes N, Fediuk M (2003) Taux d'élimination du dioxyde de carbone par des dispositifs d'aération dans des bassins à poissons marins. Isr J Aquac-Bamidgeh 55:79 —85
FAO (2001) Agriculture-aquaculture intégrée : a primer 407. ISBN 9251045992
FAO (2004) Service de gestion et de conservation de l'aquaculture (FIMA) 2004—2018. Programme d'information sur les espèces aquatiques cultivées. Carassius carassius. Programme d'information sur les espèces aquatiques cultivées. Weimin M. consulté le 5 janv. 2018
Fast AW, Tan EC, Stevens DF, Olson JC, Qin J, Barclay DK (1999) Efficacité de transfert d'oxygène de l'aérateur à roue à palettes à trois salinités. Aquac Eng 19:99 —103. https://doi.org/10.1016/S01448609(98)00044-2
FAWC (2014) Comité du bien-être des animaux d'élevage. Bien-être des poissons d'élevage. Disponible sur www.defra. gov.uk/fawc. consulté le 18 janv. 2018
Fernandes P, Pedersen L-F, Pedersen PB (2015) Effets du microécran sur la qualité de l'eau dans les systèmes d'aquaculture recirculant répliqués. Aquac Eng 65:17 —26. https://doi.org/10.1016/j.aquaeng. 2014.10.007
Fox BK, Tamaru CS, Hollyer J et al. (2012) Étude préliminaire de la qualité de l'eau microbienne liée à la salubrité des aliments dans les systèmes de production de poissons et de légumes aquaponiques en recirculation. Faculté d'Agriculture Tropicale et des Ressources Humaines, Université d'Hawaï à Manoa. Sécurité alimentaire et technologie
Gehlert G, Griese M, Schlachter M, Schulz C (2018) Analyse et optimisation de la ventilation dynamique des installations dans les systèmes aquacoles recirculants. Aquac Eng 80:1 —10. https://doi.org/10.1016/j. aquaeng.2017.11.003
Gendel Y, Lahav O (2013) Une nouvelle approche pour l'élimination de l'ammoniac des systèmes aquacoles recirculés en eau douce, comprenant l'échange d'ions et la régénération électrochimique. Aquac Eng 52:27 —38. https://doi.org/10.1016/j.aquaeng.2012.07.005
Gomez RC (2011) Systèmes de pisciculture intégrés. Disponible à l'adresse suivante : http://www.fao.org/fileadmin/ templates/FCIT/Meetings/World_Water_Day_2011/5-integrated_aquaculture.pdf. Consulté le 12 févr. 2018.
Gonçalves AA, Gagnon GA (2011) Application de l'ozone dans le système d'aquaculture en recirculation : un aperçu. Ozone Sci Eng 33:345 —367. https://doi.org/10.1080/01919512.2011.604595
Good C, Davidson J, Welsh C, Snekvik K, Summerfelt S (2011) Les effets de l'ozonation sur la performance, la santé et le bien-être de la truite arc-en-ciel Oncorhynchus mykiss dans les systèmes d'aquaculture à recirculation de l'eau à faible échange. Aquac Eng 44:97 —102. https://doi.org/10.1016/j.aquaeng. 2011.04.003
Good C, Davidson J, Earley RL, Lee E, Summerfelt S (2014) L'impact du taux d'échange et des processus de traitement de l'eau sur les hormones d'origine hydrique dans les systèmes d'aquaculture de recirculation contenant du saumon atlantique en maturation sexuelle Salmo salar. J Aquac Res Développement 5:260. https://doi.org/10.4172/2155-9546.1000260
Good C, Davidson J, Earley RL, Styga J, Summerfelt S (2017) Les effets de l'ozonation sur certaines hormones stéroïdes d'origine hydrique dans les systèmes aquacoles de réicirculation contenant du saumon atlantique sexuellement mature Salmo salar. Aquac Eng 79:9 -16. https://doi.org/10.1016/j.aquaeng.2017.08. 004
Good C, Davidson J, Terjesen BF, Talke H, Kolarevic J, Baeverfjord G, Summerfelt S (2018) Les effets de l'exposition à long terme à 20 mg/l de dioxyde de carbone sur la santé et le rendement des saumons atlantiques Salmo salar post-saumoneaux dans les systèmes d'aquaculture de recirculation de l'eau. Aquac Eng 81:1 —9. https://doi.org/10.1016/j.aquaeng.2018.01.003
Gorle JMR, Terjesen BF, Mota VC, Summerfelt S (2018) Vitesse de l'eau dans les réservoirs commerciaux de culture RAS pour la production de saumoneaux de saumon atlantique. Aquac Fr 81:89 —100
Gornati R, Papis E, Rimoldi S, Terova G, Saroglia M, Bernardini G (2004) La densité d'élevage influence l'expression des gènes liés au stress chez le bar (Dicentrarchus labrax L.). Gene 341:111 —118. https://doi.org/10.1016/j.gene.2004.06.020
Graber A, Antenen N, Junge R (2014) Le système aquaponique multifonctionnel de ZHAW utilisé comme laboratoire de recherche et de formation. Dans : Maček Jerala M, Maček MA (eds) Conférence VIVUS : transmission des innovations, des connaissances et de l'expérience pratique dans la pratique quotidienne, Strahinj, Slovénie
Grady CPL, Lim HC (1980) Traitement biologique des eaux usées : théorie et applications. Marcel Dekker, New York
Grimsrud KM, Nielsen HM, Olesen I (2013) La volonté des ménages de payer pour améliorer le bien-être des poissons dans les programmes de reproduction du saumon atlantique d'élevage. Aquaculture 372— 375:19 —27. https ://doi.org/10.1016/j.aquaculture.2012.10.009
Gutierrez-Wing MT, Malone RF (2006) Filtres biologiques en aquaculture : tendances et orientations de recherche pour les applications en eau douce et en mer. Aquac Eng 34:163 —171. https://doi.org/10. 1016/j.aquafra.2005.08.003
Guttman L, Rijn J (2008) Identification des conditions sous-jacentes à la production de géosmine et de 2-méthylisobornéol dans un système de recirculation. Aquaculture 279:85 —91. https://doi.org/10.1016/ j.aquaculture.2008.03.047
Hamac D, Huang CC, Mort G, Swinehart JH (2003) Effet de l'acide humique sur l'absorption du mercure (II), du cadmium (II) et du zinc (II) par les œufs de saumon quinnat (Oncorhynchus tshawytscha). Arch Environ Contam-Toxicol 44:83 —88. https://doi.org/10.1007/s00244-002-1261-9
Hulata G, Simon Y (2011) Aperçu de l'aquaculture désertique en Israël. In : Crespi V, Lovatelli, A (éd.) Aquaculture dans les terres désertiques et arides : contraintes et opportunités de développement. Atelier technique de la FAO. Hermosillo, Mexique. Procédure no 20 de la FAO en matière de pêche et d'aquaculture. Rome, FAO. 6-9 juillet 2010, pp. 85—112
Huntingford FA, Adams C, Braithwaite VA, Kadri S, Pottinger TG, Sandøe P, Turnbull JF (2006) Questions actuelles en matière de bien-être des poissons. J Poisson Biol 68:332 —372. https://doi.org/10.1111/j.0022-1112. 2006.001046.x
Jorgensen EH, Christiansen JS, Jobling M (1993) Effets de la densité d'ensemencement sur l'apport alimentaire, le rendement de croissance et la consommation d'oxygène chez l'omble chevalier (Salvelinus alpinus). Aquaculture 110:191 —204. https://doi.org/10.1016/0044-8486(93)90272-Z
Kesarcodi-Watson A, Kaspar H, Lategan MJ, Gibson L (2008) Les probiotiques en aquaculture : le besoin, les principes et les mécanismes d'action et les processus de dépistage. Aquaculture 274:1 —14. https ://doi.org/10.1016/j.aquaculture.2007.11.019
Klas S, Mozes N, Lahav O (2006) Mise au point d'une méthode de dénitrification à boues simples pour l'élimination des nitrates des effluents RAS : résultats à l'échelle du laboratoire par rapport à la prévision du modèle. Aquaculture 259:342 —353. https://doi.org/10.1016/j.aquaculture.2006.05.049
Krom MD, van Rijn J (1989) Processus de qualité de l'eau dans les systèmes piscicoles : processus, problèmes et solutions possibles. In : de Pauw N, Jaspers E, Ackerfors H, Wilkins N (éd.) Aquaculture-A biotechnologie in progress, vol. 2. Société européenne de l'aquaculture, Bredene, pp1091-1111
Kucuk H, Midilli A, Özdemir A, Çakmak E, Dinner I (2010) Analyse des performances exercées d'un système aquacole recirculant. Energy Convers Manag 51 (5) :1033—1043. https://doi.org/10. 1016/j.enconman.2009.12.007
Lahav O, Ben Asher R, Gendel Y (2015) Applications potentielles de l'oxydation électrochimique indirecte de l'ammoniac dans le fonctionnement des systèmes aquacoles de recirculation de l'eau douce et de l'eau salée. Aquac Eng 65:55 —64. https://doi.org/10.1016/j.aquaeng.2014.10.009
Lee J (2014) Séparation des particules organiques fines par un hydrocyclone à basse pression (LPH). Aquac Eng 63:32 —38. https://doi.org/10.1016/j.aquaeng.2014.07.002
Lekang OI (2013) Ingénierie aquacole, 2e éd. Wiley, Ames
Leonard N, Blancheton JP, Guiraud JP (2000) Populations de bactéries hétérotrophes dans un système expérimental d'aquaculture en recirculation. Aquac Eng 22:109 —120. https://doi.org/10.1016/ S0144-8609 (00) 00035-2
Leonard N, Guiraud JP, Gasset E, Cailleres JP, Blancheton JP (2002) Bactéries et nutriments — azote et carbone — dans un système de recirculation pour la production de bar. Aquac Eng 26:111 —127. https://doi.org/10.1016/S0144-8609(02)00008-0
Lewis WM, Wehr LW (1976) Système d'élevage des poissons comprenant des cages, une circulation de l'eau et une évacuation des eaux usées. Prog Fish Cult 38 (2) :78—81. https://doi.org/10.1577/1548-8659(1976)38[78 : AFSICW] 2.0.CO ; 2
Lewis WM, Yopp JH, Schramm HL Jr, Brandebourg AM (1978) Utilisation de l'hydroponique pour maintenir la qualité de l'eau recirculée dans un système piscicole. Trans Am Fish Soc 107 (1) :92—99. https ://doi.org/10.1577/1548-8659 (1978) 107 \ 92:UOHTMQ \ 2.0.CO ; 2
Li X, Przybyla C, Triplet S, Liu Y, Blancheton JP (2015) Effets à long terme d'une élévation modérée du potentiel d'oxydation et de réduction sur le bar européen (Dicentrarchus labrax) dans les systèmes d'aquaculture en recirculation. Aquac Eng 64:15 —19. https://doi.org/10.1016/j.aquaeng.2014.11.006
Liu Y, Rosten T, Henriksen K, Hognes E, Summerfelt S, Vinci B (2016) Performance économique comparée et empreinte carbone de deux modèles agricoles pour la production de saumon atlantique (Salmo salar) : système de confinement fermé terrestre en eau douce et enclos à filet ouvert en eau de mer. Aquac Fr 71:1 —12
Livingstone DR (2003) Stress oxydatif chez les organismes aquatiques par rapport à la pollution et à l'aquaculture. Rev Med Vet-Toulouse 154:427 —430
Loyless JC, Malone RE (1998) Évaluation des capacités des pompes de levage d'air pour la distribution d'eau, l'aération et la dégazéification en vue d'une application aux systèmes d'aquaculture en recirculation. Aquac Eng 18 (2) :117—133. https://doi.org/10.1016/S0144-8609(98)00025-9
Malone RF, Pfeiffer TJ (2006) Classification des biofiltres nitrifiants à film fixe utilisés dans les systèmes aquacoles de recirculation. Aquac Eng 34:389 —402. https://doi.org/10.1016/j.aquaeng.2005.08.007
Manan H, Moh JHZ, Kasan NA et al (2017) Identification de la composition microscopique biofloc comme la biorestauration naturelle dans l'échange d'eau zéro de crevettes blanches du Pacifique, Penaeus vannamei, cultivées dans un système d'écloserie rapproché. Appl Water Sci 7:2437 —2446. https://doi.org/10.1007/ s13201-016-0421-4
Mancinelli RL (1996) La nature de l'azote : un aperçu. Life Support Biosph Sci 3 (1—2) :17—24
Martins CIM, Eeding EH, Schneider O, Rasmussen R, Olesen B, Plesner L, Verreth JAJ (2005) Systèmes aquacoles de recirculation en Europe. CONSENSUS. Oostende, Belgique, Groupe de travail Consensus. Eur Aquacult Soc 31
Martins CIM, Ochola D, Ende SSW, Eding EH, Verreth JAJ (2010a) Est présent un retard de croissance dans le Nil Tilapia Oreochromis niloticus cultivé dans des systèmes aquacoles recirculant à faible échange d'eau. Aquaculture 298:43 —50. https://doi.org/10.1016/j.aquaculture.2009.09.030
Martins CIM, Eding EH, Verdegem MCJ, Heinsbroek LTN, Schneider O, Blancheton JP, Roque d'Orbcastel E, Verreth JAJ (2010b) Nouveaux développements dans les systèmes aquacoles de recirculation en Europe : une perspective sur la durabilité environnementale. Aquac Eng 43 (3) :83—93. https://doi.org/ 10.1016/j.aquafra.2010.09.002
Martins CIM, Eding EH, Verreth JAJ (2011) Souligner les poissons dans les systèmes aquacoles recirculants (RAS) : le stress provoqué chez un groupe de poissons affecte-t-il la motivation d'alimentation des autres poissons partageant le même RAS ? Aquac Res 42:1378 —1384. https://doi.org/10.1111/j.1365-2109.2010. 02728.x
Martins CIM, Galhardo L, Noble C et al. (2012) Indicateurs comportementaux du bien-être chez les poissons d'élevage. Poisson Physiol Biochem 38:17. https://doi.org/10.1007/s10695-011-9518-8
Masalo I (2008) Caractérisation hydrodynamique des réservoirs aquacoles et critères de conception pour améliorer les propriétés autonettoyantes. Thèse de doctorat. Universitat Politechnica de Catalunya BARCELONATECH, Espagne
Meinelt T, Paul A, Phan TM, Zwirnmann E, Krüger A, Wienke A, Steinberg CEW (2007) Réduction de la croissance végétative de la moisissure aqueuse Saprolegnia parasitica (Coker) par des substances humiques de différentes qualités. Aquat Toxicol 83:93 —103. https://doi.org/10.1016/j.aquatox. 2007.03.013
Meinelt T, Kroupova H, Stüber A, Rennert B, Wienke A, Steinberg CEW (2010) Les substances humiques aquatiques dissoutes peuvent-elles réduire la toxicité de l'ammoniac et du nitrite dans les systèmes aquacoles en recirculation ? Aquaculture 306:378-383. https://doi.org/10.1016/j.aquaculture.2010.06.007
Merchie G, Lavens P, Verreth J, Ollevier F, Nelis H, Deleenheer A, Storch V, Sorgeloos P (1997) Effet de l'acide ascorbique supplémentaire dans les aliments vivants enrichis pour les larves de Clarias gariepinus au début de l'alimentation. Aquaculture 151:245 —258. https://doi.org/10.1016/S0044-8486(96)01505-0
Michaud L, Blancheton JP, Bruni V, Piedrahita R (2006) Effet du carbone organique particulaire sur les populations bactériennes hétérotrophes et efficacité de nitrification dans les filtres biologiques. Aquac Eng 34:224 —233. https://doi.org/10.1016/j.aquaeng.2005.07.005
Michaud L, Lo Giudice A, Troussellier M, Smedile F, Bruni V, Blancheton JP (2009) Caractérisation phylogénétique des communautés bactériennes hétérotrophes vivant dans un système d'aquaculture en recirculation marine. J Appl Microbiol 107:1935 —1946. https://doi.org/10.1111/j.1365-2672. 2009.04378.x
Michaud L, Lo Giudice A, Interdonato F, Triplet S, Ying L, Blancheton JP (2014) C/N déplacement structurel induit des communautés bactériennes à l'intérieur de biofiltres aquacoles en laboratoire. Aquac Eng 58:77 —87. https://doi.org/10.1016/j.aquaeng.2013.11.002
Montero D, Izquierdo MS, Tort L, Robaina L, Vergara JM (1999) La forte densité de peuplement produit un stress d'encombrement altérant certains paramètres physiologiques et biochimiques chez la dorade dorée, Sparus aurata, juvéniles. Poisson Physiol Biochem 20:53 —60. https://doi.org/10.1023/ A:1007719928905
Moran D (2010) Dégazage du dioxyde de carbone dans l'eau douce et saline. I : performance de dégazage d'une colonne en cascade. Aquac Eng 43:29 —36. https://doi.org/10.1016/j.aquaeng.2010.05.001
Munguia-Fragozo P, Alatorre-Jacome O, Rico-Garcia E et al. (2015) Perspective des systèmes aquaponiques : technologies « Omic » pour l'analyse des communautés microbiennes. Biomed Res Int 2015, ID d'article 480386, 10 pages. https://doi.org/10.1155/2015/480386
Murray RG, Watson SW (1965) Structure de Nitrocystis oceanus et comparaison avec Nitrosomonas et Nitrobacter. J Bactériol 89 (6) :1594—1609
Murray F, Bostock J, Fletcher M (2014) Examen des technologies SAR et de leur application commerciale. Rapport final. Disponible à l'adresse http://www.hie.co.uk
Naegel LCA (1977) Production combinée de poissons et de plantes dans l'eau recirculation. Aquaculture 10 (1) :17—24. https://doi.org/10.1016/0044-8486(77)90029-1
Noga E (2010) Maladie du poisson : diagnostic et traitement, 2e édn. Wiley, Ames
Oca J, Masalo I (2012) Schéma d'écoulement dans les réservoirs circulaires d'aquaculture : influence du débit, de la profondeur de l'eau et des caractéristiques d'entrée et de sortie d'eau. Aquac Fr 52:65 —72
Olesen I, Alfnes F, Bensze Røra M, Kolstad K (2010) Inciter les consommateurs à payer pour le saumon biologique et marqué par le bien-être dans une expérience de choix non hypothétique. Livest Sci 127 (2—3) :218—226. https://doi.org/10.1016/j.livsci.2009.10.001
Palm HW, Knaus U, Appelbaum S, Goddek S, Strauch SM, Vermeulen T, Haїssam JM, Kotzen B (2018) Vers l'aquaponie commerciale : une revue des systèmes, des conceptions, des échelles et de la nomenclature. Aquac Int 26:813. https://doi.org/10.1007/s10499-018-0249-z
Papoutsoglou SE, Karakatsouli N, Batzina A, Papoutsoglou ES, Tsopelakos A (2008) Effet du stimulus musical de Mozart sur la physiologie de la dorade dorée (Sparus aurata L.) sous différentes intensités lumineuses dans un système d'eau en recirculation. J Fish Biol 73:980 —1004. https://doi.org/10.1111/ j.1095-8649.2008.02001.x
Park J, Kim PK, Lim T, Daniels HV (2013) Ozonation dans les systèmes de recirculation de l'eau de mer pour la dorade noire Acanthopagrus schlegelii (Bleeker) : effets sur les solides, les bactéries, la clarté de l'eau et la couleur. Aquac Eng 55:1 —8. https://doi.org/10.1016/j.aquaeng.2013.01.002
Park J, Kim PK, Park S, Daniels HV (2015) Effets de deux doses d'ozone différentes sur les oxydants résiduels totaux, les composés azotés et le taux de nitrification dans les systèmes de recirculation de l'eau de mer pour la dorade noire Acanthopagrus schlegelii (Bleeker). Aquac Eng 67:1 —7. https://doi.org/10.1016/j.aquaeng.2015.05.003
Pedersen PB, von Ahnen M, Fernandes P, Naas C, Pedersen L-F, Dalsgaard J (2017) Surface des particules et activité bactérienne dans les systèmes aquacoles en recirculation. Aquac Eng 78A:18—23. https://doi.org/10.1016/j.aquaeng.2017.04.005
Peuranen S, Vuorinen PJ, Vuorinen M, Hollender A (1994) Les effets du fer, des acides humiques et du faible pH sur les branchies et la physiologie de la truite brune (Salmo trutta). Ann Zool Fenn 31:389 —396
Pittmann T, Steinmetz H (2013) Développement d'un procédé de production de bioplastique dans les stations municipales de traitement des eaux usées. Document de conférence
Prosser JI (1989) Nitrification autotrophique chez les bactéries. Adv Microb Physiol 30:125 —181
Randall DJ, Tsui TKN (2002) Toxicité de l'ammoniac chez les poissons. Sondage maritime Bull 45:17 —23
Reiser S, Schroeder JP, Wuertz S, Kloas W, Hanel R (2010) Modifications histologiques et physiologiques chez le flétan juvénile (Psetta maxima, L.) exposé à des concentrations sublétales d'oxydants produits par l'ozone dans l'eau de mer ozonée. Aquaculture 307:157 —164. https://doi.org/10. 1016/j.aquaculture.2010.07.007
Reiser S, Wuertz S, Schroeder JP, Kloas W, Hanel R (2011) Risques d'ozonation de l'eau de mer en aquaculture de recirculation — effets du stress oxydatif sur le bien-être animal du flétan juvénile (Psetta maxima, L.). Aquat Toxicol 105:508-517 https://doi.org/10.1016/j.aquatox.2011.08. 004
Richardson LB, Burton DT, Block RM, Stavola AM (1983) Exposition létale et sublétale et effets sur la récupération des oxydants produits par l'ozone sur la perchaude adulte (Morone americana Gmelin). Eau Res 17:205 —213. https://doi.org/10.1016/0043-1354(83)90101-X
Ritola O, Lyytikainen T, Pylkko P, Molsa H, Lindstrom-Seppa P (2000) Activités du système de défense dépendant de la glutathion et de l'enzyme monooxygénase chez l'omble chevalier Salvelinus alpinus (L.) exposé à l'ozone. Aquaculture 185:219-233. https://doi.org/10.1016/S0044-8486(99)00355-5
Ritola O, Livingstone DR, Peters LD, Lindstrom-Seppa P (2002) Les processus antioxydants sont affectés chez les juvéniles truites arc-en-ciel (Oncorhynchus mykiss) exposées à l'ozone et à l'eau sursaturée en oxygène. Aquaculture 210:1 —9. https://doi.org/10.1016/S0044-8486(01)00823-7
Rojas-Tirado P, Bovbjerg Pedersen P, Pedersen L-F (2017) Dynamique de l'activité bactérienne dans la phase aqueuse lors du démarrage des systèmes aquacoles recirculants. Aquac Eng 78A:24-31. https://doi. org/10.1016/j.aquaeng.2016.09.004
Rosenthal H (1980) Systèmes de recirculation en Europe occidentale. Colloque mondial sur l'aquaculture dans les effluents chauffés et le système de recirculation, Stavanger, Institut für Kuesten- und Binnefischerei, Bundesforschungsanstalt Hamburg, BRD
Rosenthal H, Black EA (1993) Systèmes de recirculation en aquaculture. In : Wang J-K (ed) Techniques pour l'aquaculture moderne. ASAE, Saint-Joseph, pp. 284-294
Rurangwa E, Verdegem MCJ (2015) Les micro-organismes dans les systèmes d'aquaculture en recirculation et leur gestion. Rév Aquac 7:117 —130. https://doi.org/10.1111/raq.12057
Rusten B, Eikebrokk B, Ulgenes Y, Lygren E (2006) Conception et exploitation des réacteurs de biofilm à lit mobile Kaldnes. Aquac Eng 34:322 —331. https://doi.org/10.1016/j.aquaeng.2005.04.002
Schmautz Z, Graber A, Jaenicke S, Goesmann A, Junge R, Smits THM (2017) Diversité microbienne dans différents compartiments d'un système aquaponique. Arch Microbiol 199:613. https://doi.org/10. 1007/s00203-016-1334-1
Schreier HJ, Mirzoyan N, Saito K (2010) Diversité microbienne des filtres biologiques dans les systèmes d'aquaculture en recirculation. Curr Opin Biotechnol 21:318 —325. https://doi.org/10.1016/j.copbio.2010. 03.011
Schroeder JP, Croot PL, Von Dewitz B, Waller U, Hanel R (2011) Potentiel et limites de l'ozone pour l'élimination de l'ammoniac, du nitrite et des substances jaunes dans les systèmes d'aquaculture en recirculation marine. Aquac Eng 45:35 —41. https://doi.org/10.1016/j.aquaeng.2011.06.001
Sharrer MJ, Summerfelt ST, Bullock GL, Gleason LE, Taeuber J (2005) Inactivation de bactéries par irradiation ultraviolette dans un système de culture de salmonidés en recirculation. Aquac Eng 33:135 —149 https://doi.org/10.1016/j.aquaeng.2004.12.001
Singh S, Marsh LS (1996) Modélisation de l'environnement thermique d'une installation aquacole en recirculation. Aquaculture 139:11 —18. https://doi.org/10.1016/0044-8486(95)01164-1
Sirsat S, Neal J (2013) Profil microbien de la laitue cultivée sans sol par rapport à celle cultivée dans le sol et méthodes d'intervention pour lutter contre les agents pathogènes substituts et détériorer les microorganismes sur la laitue. Aliments 2 (4) :488—498. https://doi.org/10.3390/foods2040488
Somerville C, Cohen M, Pantanella E, Stankus A, Lovatelli A (2014) Production alimentaire aquaponique à petite échelle : élevage intégré des poissons et des plantes. Dans : Document technique FAO sur les pêches et l'aquaculture Organisation des Nations Unies pour l'alimentation et l'agriculture, Rome, Italie, p. 262
Stevenson FJ (1994) Humus Chemistry : genèse, composition, réactions, 2e édn. Wiley, New York, p. 496. https://doi.org/10.1021/ed072pA93.6
Suhr KI, Pedersen LF, Nielsen JL (2014) Dénitrification de boues simples en bout de tuyau dans des systèmes d'aquaculture en recirculation à l'échelle pilote. Aquac Eng 62:28 —35. https://doi.org/10.1016/j.aquaeng.2014.06.002
Summerfelt ST (2003) Ozonation et irradiation UV — Introduction et exemples d'applications actuelles. Aquac Eng 28:21 —36. https://doi.org/10.1016/S0144-8609(02)00069-9
Summerfelt ST (2006) Conception et gestion de biofiltres classiques à sable fluidisé. Aquac Eng 34:275 —302. https://doi.org/10.1016/j.aquaeng.2005.08.010
Summerfelt ST, Hochheimer JN (1997) Examen des procédés et applications de l'ozone en tant qu'agent oxydant en aquaculture. Progress Fish-Culturist 59:94 —105. https://doi.org/10.1577/ 1548-8640 (1997) 059 \ 0094:ROOPAA \ 2.3.CO ; 2
Summerfelt S, Davidson JW, Waldrop TB, Tsukuda S, Bebak-Williams J (2004) Un système de réutilisation partielle pour l'aquaculture en eau froide. Aquac Eng. 157-181. https://doi.org/10.1016/j.cell.2013.02. 048
Summerfelt ST, Sharrer MJ, Tsukuda SM, Gearheart M (2009) Exigences relatives au procédé de désinfection à plein débit de l'eau recirculante à l'aide de l'ozonation et de l'irradiation UV. Aquac Eng 40:17 —27. https://doi.org/10.1016/j.aquaeng.2008.10.002
Summerfelt ST, Zulke A, Kolarevic J, Megard Reiten BK, Selset R, Guiterrez X, Terjesen BF (2015) Les effets de l'alcalinité sur l'élimination de l'ammoniac, le décapage du dioxyde de carbone et le pH dans les systèmes d'aquaculture à recirculation de l'eau à échelle semi-commerciale fonctionnant avec des bioréacteurs à lit mobiles. Aquac Eng 65:46 —54. https://doi.org/10.1016/j.aquaeng.2014.11.002
Summerfelt ST, Mathisen F, Buran Holan A, Terjesen BF (2016) Étude de grands chars circulaires et octogonaux exploités dans des sites commerciaux norvégiens de saumoneaux et de post-saumoneaux. Aquac Eng 74:105 —110. https://doi.org/10.1016/j.aquaeng.2016.07.004
Tal Y, Watts JEM, Schreier HJ (2006) Bactéries anaérobies oxydantes à l'ammonium (Anammox) et activité associée dans les biofiltres à film fixe d'un système d'aquaculture en recirculation marine. Appl Environ Microbiol 72:2896 —2904. https://doi.org/10.1128/AEM.72.4.2896-2904.2006
Tal Y, Schreier HJ, Sowers KR, Stubblefield JD, Place AR, Zohar Y (2009) Aquaculture marine terrestre écologiquement durable. Aquaculture 286:28 —35. https://doi.org/10.1016/j. aquaculture.2008.08.043
Tango MS, Gagnon GA (2003) Impact de l'ozonation sur la qualité de l'eau dans les systèmes de recirculation marine. Aquac Eng 29:125 —137. https://doi.org/10.1016/S0144-8609(03)00061-X
Terhune JM, Friars GW, Bailey JK, O'Flynn FM (1990) Les niveaux de bruit peuvent influer sur les taux de saumons de l'Atlantique dans les bassins. J Fish Biol 37:185 —197. https://doi.org/10.1111/j.1095-8649. 1990.tb05939.x
Timmons MB, Ebeling JM (2010) Reculating aquaculture, 2e éd. Cayuga Aqua Ventures, Ithaque
Timmons MB, Losordo MC (1994) Systèmes de réutilisation de l'eau en aquaculture — conception et gestion techniques. Elsevier, Amsterdam
Tomita-Yokotani K, Anir S, Katayama N, Hashimoto H, Yamashita M (2009) Agriculture spatiale pour l'habitation sur mars et la civilisation durable sur terre. Technologie spatiale récente Adv : 68—69. https://doi.org/10.1109/RAST.2009.5158276
Tort L, Rotllant J, Liarte C, Acerete L, Hernandez A, Ceulemans S, Coutteau P, Padros F (2004) Effets de la diminution de la température sur les taux d'alimentation, les indicateurs immunitaires et les changements histopathologiques de la dorade dorade dorée Sparus aurata nourris d'un régime expérimental. Aquaculture 229:55 —65. https://doi.org/10.1016/S0044-8486(03)00403-4
Turnbull JF, Kadri S (2007) Protéger les nombreux aspects du bien-être des poissons d'élevage. Dis Aquat Org 75:173 —182. https://doi.org/10.3354/dao075173
Vadstein O, Mo TA, Bergh Ø (2004) Interactions microbiennes, prophylaxie et maladies. In : Moksness E, Kjørsvik E, Olsen Y (eds) Culture des poissons marins d'eau froide. Blackwell
Publishing, Bath, pp. 28—72. https://doi.org/10.1016/j.aquaeng.2005.04.004 van Rijn J (1996) The potential for integrated biologique treatment systems in recirculating fish culture—a review. Aquaculture 139 (3—4) :181—201. https://doi.org/10.1016/0044-8486(95)
01151-X van Rijn J (2013) Traitement des déchets dans les systèmes aquacoles en recirculation. Aquac Eng 53:49 —56. https://doi.org/10.1016/j.aquaeng.2012.11.010
van Rijn J, Nussinovitch A (1997) Modèle empirique de prévision de la dégradation des solides organiques dans les systèmes piscicoles basé sur des observations à court terme. Aquaculture 154 (2) :173—179. https ://doi.org/10.1016/S0044-8486 (97) 00048-3
van Rijn J, Rivera G (1990) Biofiltration aérobie et anaérobie dans une unité aquacole : accumulation de nitrites résultant de la nitrification et de la dénitrification. Aquac Fr 9:1 —18
van Rijn J, Tal Y, Schreier HJ (2006) Dénitrification dans les systèmes de recirculation : théorie et applications. Aquac Eng 34 (3) :364—376
Vazzana M, Cammarata M, Cooper EL, Parrinello N (2002) Le stress de confinement chez le bar (Dicentrarchus labrax) diminue la cytotoxicité des leucocytes péritonéaux. Aquaculture 210:231 —243. https://doi.org/10.1016/S0044-8486(01)00818-3
Veerapen JP, Lowry BJ, Couturier MF (2005) Méthodologie de conception pour le séparateur de tourbillons. Aquac Eng 33:21 —45. https://doi.org/10.1016/j.aquaeng.2004.11.001
Verreth JAJ, Eeding EH (1993) L'industrie agricole européenne du poisson-chat africain (Clarias gariepinus) faits et chiffres. J World Aquacult Soc 24:6 —13
Volpato GL, Goncalves-de-Freitas E, Fernandes-de-Castilho M (2007) Aperçu du concept de bien-être des poissons. Dis Aquat Org 75:165 —171. https://doi.org/10.3354/dao075165
Wagner EJ, Bosakowski T, Miller SA (1995) Évaluation de l'efficacité d'absorption du système d'oxygénation à basse tête. Aquac Eng 14:49 —57. https://doi.org/10.1016/0144-8609(94) P4426-C
Wold P-A, Holan AB, Øie G, Attramadal K, Bakke I, Vadstein O, Leiknes TO (2014) Effets de la filtration membranaire sur le nombre bactérien et la diversité microbienne dans le système d'aquaculture en recirculation marine (RAS) pour la production de morue franche (Gadus morhua L.). Aquaculture 422— 423:69 —77. https://doi.org/10.1016/j.aquaculture.2013.11.019
Wong KB, Piedrahita RH (2000) Caractérisation de la vitesse de décantation des solides aquacoles. Aquac Eng 21:233 —246. https://doi.org/10.1016/S0144-8609(99)00033-3
Wysocki LE, Davidson JW III, Smith ME, Frankel AS, Ellison TE, Mazik PM, Popper AN, Bebak J (2007) Les effets du bruit de production aquacole sur l'ouïe, la croissance et la résistance aux maladies de la truite arc-en-ciel, Oncorhynchus mykiss. Aquaculture 272:687 —697. https://doi.org/10.1016/j.aqua culture.2007.07.225
Yamin G, Borisover M, Cohen E, van Rijn J (2017a) Accumulation de matière organique dissoute de type humique et protéique dans des systèmes aquacoles à décharge zéro, telle que révélée par spectroscopie ESEE de fluorescence. Eau Res 108:412 —421. https://doi.org/10.1016/j.watres.2016.11.028
Yamin G, Falk R, Avtalion RR, Shoshana N, Ofek T, Smirnov R, Rubenstein G, van Rijn J (2017b) L'effet protecteur des substances riches en humicité sur l'infection atypique de salmonicida subsp. salmonicida chez la carpe commune (Cyprinus carpio L.). J Fish Dis 40 (12) :1783—1790. https://doi.org/10.1111/jfd.12645
Yamin G, Zilberg D, Levy G, van Rijn J (2017c) L'effet protecteur des substances riches en humus provenant de parasites monogéniens infectant le guppy (Poecilia reticulata). Aquaculture 479:487-489. https://doi.org/10.1016/j.aquaculture.2017.06.022
Yildiz HY, Robaina L, Pirhonen J, Mente E, Domínguez D, Parisi G (2017) Bien-être des poissons dans les systèmes aquaponiques : sa relation avec la qualité de l'eau en mettant l'accent sur les aliments et les féces.-une revue. Eau 9 (1) :13. https://doi.org/10.3390/w9010013
Yogev U, Sowers KR, Mozes N, Brut A (2016) Bilan azoté et carbone dans un nouveau système d'aquaculture à recirculation saline à échange proche de zéro. Aquaculture 467:118 —126
Zeng Q, Tian X, Wang L (2017) Adaptation génétique des populations microbiennes présentes dans les systèmes de production de poisson-chat à haute intensité avec traitement thérapeutique à l'oxytétracycline. Sci Rep 7:17491. https://doi.org/10.1038/s41598-017-17640-3
Zhu S, Chen S (2002) L'impact de la température sur le taux de nitrification dans les biofiltres à film fixe. Aquac Eng 26 (4) :221—237. https://doi.org/10.1016/S0144-8609(02)00022-5
Zou Y, Hu Z, Zhang J, Xie H, Guimbaud C, Fang Y (2016) Effets du pH sur les transformations d'azote dans les milieux aquaponiques. Bioresour Technol 210:81 —87. https://doi.org/10.1016/j. biortech.2015.12.079
Open Access Ce chapitre est sous licence aux termes de la licence Creative Commons Attribution 4.0 International, qui permet l'utilisation, le partage, l'adaptation, la distribution et la reproduction dans n'importe quel support ou format, à condition que vous donniez les crédits appropriés à l'auteur original et à la source, fournissez un lien vers le Creative Commons et indiquer si des changements ont été apportés.
Les images ou tout autre matériel tiers figurant dans ce chapitre sont inclus dans la licence Creative Commons du chapitre, sauf indication contraire dans une ligne de crédit relative au matériel. Si le matériel n'est pas inclus dans la licence Creative Commons du chapitre et que votre utilisation prévue n'est pas autorisée par la loi ou dépasse l'utilisation autorisée, vous devrez obtenir l'autorisation directement du détenteur du droit d'auteur.
Aquaponics Food Production Systems contributors.
Voir l’édition originale · Creative Commons Attribution 4.0
Cette édition de la bibliothèque est reformattée et consolidée à partir de la source originale.
3.1 Introduction
Original publication · Publié pour la première fois sur FarmHub Learn · Aquaponics Food Production Systems
Les systèmes d'aquaculture en recirculation (RAS) décrivent les systèmes de production intensive de poissons qui utilisent une série d'étapes de traitement de l'eau pour dépurer l'eau d'élevage du poisson et en faciliter la réutilisation. Le RAS comprendra généralement (1) des dispositifs pour éliminer les particules solides de l'eau qui sont composées de matières fécales de poisson, d'aliments non consommés et de flocs bactériens (Chen et al., 1994 ; Couturier et al., 2009), (2) des biofiltres nitrifiants pour oxyder l'ammoniac excrété par les poissons en nitrate (Gutierrez-Wing et Malone, 2006) et Malone, 2006) et (3) de dispositifs d'échange de gaz pour éliminer le dioxyde de carbone dissous expulsé par les poissons ainsi que l'apport d'oxygène requis par les poissons et les bactéries nitrifiantes (Colt et Watten, 1988 ; Moran, 2010 ; Summerfelt, 2003 ; Wagner et al., 1995). De plus, le RAS peut aussi utiliser l'irradiation UV pour la désinfection de l'eau (Sharrer et al., 2005 ; Summerfelt et al., 2009), l'ozonation et l'écrémage des protéines pour les solides fins et le contrôle microbien (Attramadal et al., 2012a ; Gonçalves et Gagnon, 2011 ; Summerfelt et Hochheimer, 1997) et des systèmes de dénitrification pour éliminer les nitrification (van Rijn et al. 2006).
La technologie moderne de recirculation de l'aquaculture se développe depuis plus de 40 ans, mais de nouvelles technologies offrent de plus en plus des moyens de changer les paradigmes des SAR traditionnels, y compris des améliorations sur des procédés classiques tels que la capture des solides, la biofiltration et l'échange de gaz. La RAS a également connu d'importants progrès en termes d'échelle, de capacités de production et d'acceptation du marché, les systèmes étant progressivement plus grands et plus robustes.
Le présent chapitre traite de la façon dont la technologie RAS s'est développée au cours des deux dernières décennies, depuis une période de consolidation technologique jusqu'à une nouvelle ère de mise en œuvre industrielle.
3.1.1 Historique du RAS
Les premières recherches scientifiques sur le RAS menées au Japon dans les années 1950 ont porté sur la conception de biofiltres pour la production de carpes, motivées par la nécessité d'utiliser de manière plus productive les ressources en eau limitées localement (Murray et al., 2014). En Europe et aux États-Unis, des scientifiques ont également tenté d'adapter les technologies mises au point pour le traitement des eaux usées domestiques afin de mieux réutiliser l'eau dans les systèmes de recirculation (par exemple, les procédés de boues activées pour le traitement des eaux usées, les filtres de ruissellement, les biofiltres immergés et en aval, ainsi que plusieurs systèmes de filtration). Ces premiers efforts comprenaient principalement des travaux sur les systèmes marins pour la production de poissons et de crustacés, mais ils ont été rapidement adoptés dans les régions arides où le secteur agricole est limité par l'approvisionnement en eau. En aquaculture, différentes solutions ont été conçues pour maximiser l'utilisation de l'eau, y compris des systèmes de recirculation très intensifs qui intègrent des systèmes de filtration de l'eau tels que des filtres à tambour, des filtres biologiques, des écrémeurs protéiques et des systèmes d'injection d'oxygène (Hulata et Simon 2011). Malgré une forte conviction des pionniers de l'industrie quant à la viabilité commerciale de leurs travaux, la plupart des premières études ont porté exclusivement sur l'oxydation des déchets toxiques d'azote inorganique provenant du métabolisme des protéines. La confiance dans la technologie a été renforcée par le bon fonctionnement des aquariums publics et domestiques, qui sont généralement dotés d'unités de traitement surdimensionnées pour assurer une eau cristalline. En outre, les densités d'ensemencement extrêmement faibles et les intrants d'alimentation associés signifiaient que cette suringénierie contribuait encore relativement peu aux coûts d'investissement et d'exploitation du système par rapport aux RAS intensifs. Par conséquent, les changements dans la dynamique des processus associés au changement d'échelle n'ont pas été pris en compte, ce qui a entraîné la sous-taille des unités de traitement du SAR afin de minimiser les coûts en capital. Par conséquent, les marges de sécurité étaient beaucoup trop étroites ou inexistantes (Murray et al., 2014). Comme beaucoup de scientifiques pionniers avaient des antécédents biologiques plutôt que techniques, les améliorations techniques étaient également limitées par des erreurs de communication entre les scientifiques, les concepteurs, le personnel de construction et les opérateurs. La mise au point d'une terminologie normalisée, d'unités de mesure et de formats de déclaration en 1980 (EIFAC/CIEM 1980) a contribué à remédier à la situation, bien que des différences régionales persistent. Ce n'est qu'au milieu des années 1980 que les paramètres cycliques de qualité de l'eau sont devenus reconnus comme étant importants dans la production des étangs, par exemple en mesurant périodiquement les concentrations de pH, d'oxygène, de TAN (azote ammoniaque total), de NO2 (nitrate), de DBO (demande biochimique en oxygène) et de DCO (demande chimique en oxygène).
Dans la dernière partie du siècle dernier, de nombreux articles ont été publiés sur le développement précoce de la RAS. Rosenthal (1980) a développé l'état des systèmes de recirculation en Europe occidentale, tandis que Bovendeur et al. (1987) ont mis au point un système de recirculation de l'eau pour la culture du poisson-chat africain en relation avec la production de déchets et la cinétique de l'élimination des déchets (une conception a été présentée pour un système de traitement de l'eau composé de un clarificateur primaire et un réacteur aérobie à film fixe qui ont donné des résultats satisfaisants pour la culture à haute densité de poisson-chat africain). Ces travaux s'inscrivaient dans le cadre du développement rapide des systèmes de pisciculture jusqu'au milieu des années 1990 en Europe du Nord et de l'Ouest (Rosenthal et Black, 1993), ainsi qu'en Amérique du Nord (Colt, 1991). De nouvelles classifications, comme la classification selon la façon dont l'eau circule dans un système aquacole, ont fourni des informations clés sur les processus de qualité de l'eau qui sont importants pour la production de poissons (Krom et van Rijn, 1989). Dans les travaux ultérieurs de van Rijn (1996), des concepts ont été introduits axés sur les processus biologiques sous-jacents aux systèmes de traitement. Les conclusions de ces travaux ont été que l'intégration de méthodes de réduction de l'accumulation de boues et de nitrates a permis de stabiliser la qualité de l'eau dans les unités de culture. Au cours de cette période, la production de RAS a considérablement augmenté en volume et en diversité des espèces (Rosenthal, 1980 ; Verreth et Eding, 1993 ; Martins et al., 2005). Aujourd'hui, plus de 10 espèces sont produites dans la RAS (Poisson-chat africain, anguille et truite comme principales espèces d'eau douce et turbot, bar marin et sole comme principales espèces marines) (Martins et al., 2010b), la RAS étant également devenue un élément crucial dans la production de larves et de juvéniles de diverses espèces.
Bien que les rendements maximaux durables de nombreuses espèces sauvages aquatiques aient été ou seront bientôt atteints, et que de nombreuses espèces sont déjà surexploitées, le RAS est considéré comme une technologie clé qui aidera le secteur aquacole à répondre aux besoins en espèces aquatiques au cours des prochaines décennies (Ebeling et Timmons, 2012).
3.1.2 Bref historique de l'aquaponie dans le contexte de la RAS
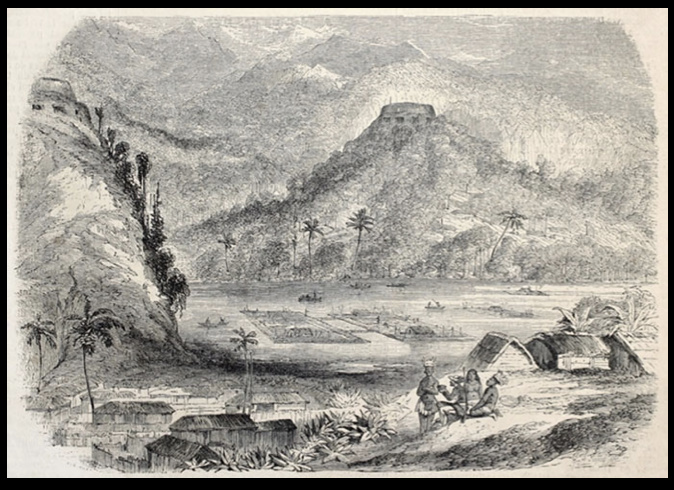
Fig. 3.1 Chinampas (jardins flottants) en Amérique centrale — construction d'îles artificielles en tant qu'antériorité de la technologie aquaponique. (De Marzolino/ Shutterstock.com)
Aquaponie est un terme qui a été « inventé » dans les années 1970, mais dans la pratique a des racines anciennes — bien qu'il y ait encore des discussions sur sa première occurrence. Les Aztèques ont cultivé des îles agricoles connues sous le nom de chinampas (les premières années 1150—1350CE), dans un système considéré par certains comme la première forme d'aquaponie à usage agricole (figure 3.1). Dans de tels systèmes, les plantes ont été élevées sur des îles stables, ou parfois mobiles et flottantes placées dans des lacs peu profonds où la boue riche en éléments nutritifs pouvait être draguée des canaux chinampa et placée sur les îles pour soutenir la croissance des plantes (Crossley, 2004).
Un exemple encore plus ancien de l'aquaponie a commencé de l'autre côté du monde dans le sud de la Chine et on pense qu'il s'est propagé en Asie du Sud-Est, où les colons chinois du Yunnan se sont installés autour de 5 ans après notre ère. Les agriculteurs ont cultivé et cultivé du riz dans des rizières en combinaison avec du poisson (FAO 2001). Ces systèmes d'élevage polyculturels existaient dans de nombreux pays d'Extrême-Orient pour élever des poissons comme le loach oriental (Misgurnus anguillicaudatus) (Tomita-Yokotani et al. 2009), l'anguille des marais (fam. Synbranchidae), carpe commune (Cyprinus carpio) et carpe crucienne (Carassius carassius) (FAO 2004). Essentiellement, cependant, il ne s'agissait pas de systèmes aquaponiques, mais il est préférable de les décrire comme des exemples précoces de systèmes aquacoles intégrés (Gomez, 2011). Au XXe siècle, les premières tentatives de création de systèmes de production de poisson pratiques, efficaces et intégrés aux côtés des légumes ont été faites dans les années 1970 avec le travail de Lewis et Naegel (Lewis et Wehr, 1976 ; Naegel, 1977 ; Lewis et al., 1978). D'autres systèmes ont été conçus par Waten et Busch en 1984 et par Rakocy en 1989 (Palm et al., 2018).
3.2 Examen du contrôle de la qualité de l'eau dans le SAR
Original publication · Publié pour la première fois sur FarmHub Learn · Aquaponics Food Production Systems
Les SAR sont des systèmes de production aquatique complexes qui impliquent une gamme d'interactions physiques, chimiques et biologiques (Timmons et Ebeling, 2010). Il est essentiel de comprendre ces interactions et les relations entre les poissons dans le système et l'équipement utilisé pour prédire tout changement dans la qualité de l'eau et le rendement du système. Il existe plus de 40 paramètres de qualité de l'eau qui peuvent être utilisés pour déterminer la qualité de l'eau en aquaculture (Timmons et Ebeling, 2010). Parmi ceux-ci, seuls quelques-uns (tels que décrits aux sect. [3.2.1](#321 -oxygène-dissous), [3.2.2](#322 -ammoniac), [3.2.3](#323 -biosolides), [3.2.4](#324 -dioxyde-carbone-cosub2sub), [3.2.5](#325 -total-gaz-pressure-tgp), [3.2.6](#326 -nitrate) et [3.2.7](#327 -alcalinité)) sont traditionnellement contrôlés dans la recirculation principale , étant donné que ces processus peuvent affecter rapidement la survie des poissons et sont susceptibles de changer avec l'ajout d'aliments au système. De nombreux autres paramètres de la qualité de l'eau ne sont normalement pas surveillés ou contrôlés parce que (1) l'analyse de la qualité de l'eau peut être coûteuse, (2) le polluant à analyser peut être dilué avec un échange quotidien d'eau, (3) les sources d'eau potentielles qui les contiennent sont exclues pour utilisation ou (4) parce que leur potentiel négatif effets n'ont pas été observés dans la pratique. Par conséquent, les paramètres suivants de la qualité de l'eau sont normalement surveillés dans le SRA.
3.2.1 Oxygène dissous (OD)
L'oxygène dissous (OD) est généralement le paramètre de qualité de l'eau le plus important dans les systèmes aquatiques intensifs, car de faibles concentrations d'OD peuvent rapidement entraîner un stress élevé chez les poissons, un dysfonctionnement du biofiltre nitrifiant et, en fait, des pertes importantes de poissons. Généralement, les densités d'ensemencement, l'ajout d'aliments, la température et la tolérance des espèces de poissons à l'hypoxie déterminent les besoins en oxygène d'un système. Comme l'oxygène peut être transféré dans l'eau à des concentrations supérieures à sa concentration de saturation dans des conditions atmosphériques (c'est ce qu'on appelle la sursaturation), il existe une gamme de dispositifs et de conceptions pour s'assurer que les poissons reçoivent suffisamment d'oxygène.
Dans le RAS, l'OD peut être contrôlé par aération, addition d'oxygène pur, ou une combinaison de ceux-ci. Étant donné que l'aération n'est capable que d'élever les concentrations d'OD jusqu'au point de saturation atmosphérique, la technique est généralement réservée aux systèmes peu chargés ou aux systèmes avec des espèces tolérantes telles que Tilapia ou le poisson-chat. Cependant, les aérateurs sont également un élément important du RAS commercial où l'utilisation d'oxygène technique coûteux est réduite en aérant de l'eau à faible teneur en oxygène dissous jusqu'au point de saturation avant de sursaturer l'eau avec de l'oxygène technique.
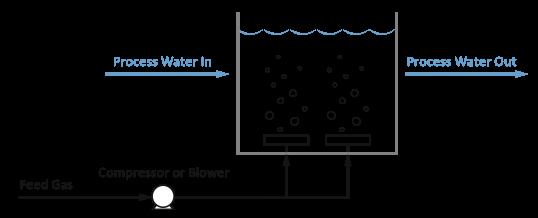
Fig. 3.2 Diagrammes de deux exemples de transfert gaz-liquide : aération diffuse et injecteurs et aspirateurs Venturi
Il existe plusieurs types d'aérateurs et d'oxygénateurs qui peuvent être utilisés dans le RAS et ceux-ci relèvent de deux grandes catégories : les systèmes gaz-liquide et liquide-gaz (Lekang, 2013). Les aérateurs gaz-liquide comprennent principalement des systèmes d'aération diffuse où le gaz (air ou oxygène) est transféré dans l'eau, créant des bulles qui échangent des gaz avec le milieu liquide (fig. 3.2). D'autres systèmes gaz-liquide comprennent le passage de gaz à travers des diffuseurs, des tuyaux perforés ou des plaques perforées pour créer des bulles à l'aide d'injecteurs Venturi qui créent des masses de petites bulles ou des dispositifs qui emprisonnent les bulles de gaz dans le courant d'eau comme le Speece Cone et l'oxygénateur à tube en U.
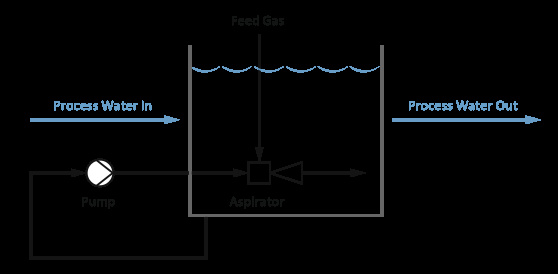
Fig. 3.3 Diagrammes de deux exemples de transfert liquide-gaz : l'aérateur à colonne emballé et les éclaboussures de surface dans un réservoir fermé. L'aérateur à colonne emballé permet à l'eau de couler dans un récipient fermé, généralement emballé avec des supports structurés, où l'air est forcé à l'aide d'un ventilateur ou d'une soufflante. Les éclaboussures de surface trouvées dans l'aquaculture en étang peuvent également être utilisées dans des atmosphères fermées enrichies en gaz — normalement en oxygène — pour le transfert de gaz
Les aérateurs liquide-gaz sont basés sur la diffusion de l'eau en petites gouttelettes pour augmenter la surface disponible pour le contact avec l'air, ou sur la création d'une atmosphère enrichie avec un mélange de gaz (figure 3.3). L'aérateur à colonne emballée (Colt et Bouck, 1984) et les oxygénateurs à faible tête (LHO) (Wagner et al., 1995) sont des exemples de systèmes liquide-gaz utilisés en recirculation aquacole. Cependant, d'autres systèmes liquide-gaz populaires dans les étangs et les fermes extérieures, comme les aérateurs de roues à aubes (Fast et al., 1999), sont également utilisés dans le RAS.
On dispose d'une documentation considérable sur la théorie de l'échange de gaz et les principes fondamentaux du transfert de gaz dans l'eau, et on encourage le lecteur non seulement à consulter les textes d'ingénierie de l'aquaculture et de l'aquaculture, mais aussi à consulter les matériaux d'ingénierie des procédés et de traitement des eaux usées pour mieux comprendre ces processus.
3.2.2 Ammoniac
Dans un milieu aqueux, l'ammoniac existe sous deux formes : une forme non ionisée (NHsub3/sub) toxique pour les poissons et une forme ionisée (NHsub4/Subsup+/SUP) qui présente une faible toxicité pour les poissons. Ces deux formes forment l'azote ammoniaque total (TAN), dans lequel le rapport entre les deux formes est contrôlé par le pH, la température et la salinité. L'ammoniac s'accumule dans l'eau d'élevage comme produit du métabolisme protéique des poissons (Altinok et Grizzle, 2004) et peut atteindre des concentrations toxiques s'il n'est pas traité. Sur les 35 différents types de poissons d'eau douce qui ont été étudiés, la toxicité aiguë moyenne de l'ammoniac est de 2,79 mg de NH3/L (Randall et Tsui, 2002).
L'ammoniac a été traditionnellement traité dans les systèmes de recirculation avec des biofiltres nitrifiants, des dispositifs conçus pour promouvoir les communautés microbiennes qui peuvent oxyder l'ammoniac en nitrate (NOSub3/sub). Bien que l'utilisation de biofiltres nitrifiants ne soit pas nouvelle, le RAS contemporain a vu une rationalisation des conceptions de biofiltres, avec seulement quelques modèles bien étudiés ayant une large acceptation. D'autres techniques hautement novatrices de traitement de l'ammoniac ont été mises au point au cours des dernières années, mais elles ne sont pas largement appliquées sur le plan commercial (exemples ci-dessous).
L'ammoniac est oxydé dans les biofiltres par les communautés de bactéries nitrifiantes. Les bactéries nitrifiantes sont des organismes chimithotrophes qui comprennent des espèces des genres Nitrosomonas, Nitrosococcus, Nitrospira, Nitrobacter et Nitrococcus (Prosser, 1989). Ces bactéries tirent leur énergie de l'oxydation des composés azotés inorganiques (Mancinelli 1996) et se développent lentement (la réplication se produit 40 fois plus lente que pour les bactéries hétérotrophes). Elles sont donc facilement surcompétitives par les bactéries hétérotrophes si le carbone organique, principalement présent dans les biosolides en suspension dans la culture eau, sont autorisés à s'accumuler (Grady et Lim 1980). Pendant le fonctionnement du RAS, une bonne gestion du système repose dans une large mesure sur la réduction des matières solides en suspension grâce à des techniques adéquates d'élimination des matières solides (figure 3.4).
Les biofiltres nitrifiants ou les biofiltres ont été classés grossièrement en deux catégories principales : la croissance en suspension et les systèmes de croissance attachés (Malone et Pfeiffer, 2006). Dans les systèmes de croissance en suspension, les communautés bactériennes nitrifiantes se développent librement dans l'eau, formant des flocs bactériens qui abritent également de riches écosystèmes où se trouvent des protozoaires, des ciliés, des nématodes et des algues (Manan et al., 2017). Avec un mélange et une aération appropriés, les algues, les bactéries, le zooplancton, les particules d'alimentation et les matières fécales restent en suspension dans la colonne d'eau et se flocculent naturellement ensemble, formant les particules qui donnent leur nom aux systèmes de culture biofloc (Browdy et al., 2012). Le principal inconvénient des systèmes de croissance en suspension est leur tendance à perdre leur biomasse bactérienne à mesure que l'eau de procédé s'écoule hors du réacteur, ce qui nécessite un moyen de capturer et de retourner dans le système. Dans les systèmes de croissance attachés, des formes solides (grains de sable, pierres, éléments en plastique) sont utilisées comme substrats pour retenir les bactéries à l'intérieur du réacteur et, par conséquent, n'ont pas besoin d'une étape de capture des solides post-traitement. Généralement, les systèmes de croissance attachés fournissent plus de surface pour la fixation bactérienne que les systèmes de croissance en suspension, et ne produisent pas de solides significatifs dans leur écoulement, ce qui est l'une des principales raisons pour lesquelles les biofiltres de croissance attachés ont été si couramment utilisés dans le RAS.
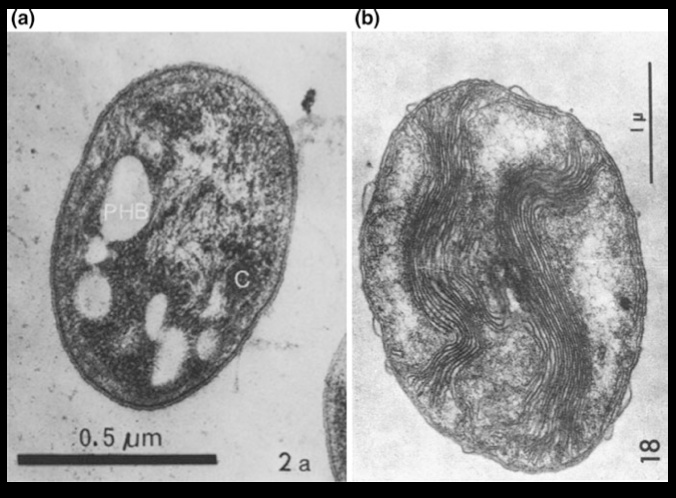
Fig. 3.4 Bactéries nitrifiantes Nitrosomonas (à gauche) et Nitrobacter (à droite). (Photo de gauche : Bock et al. 1983. Photo de droite : Murray et Watson 1965)
Des efforts ont été faits pour classer les biofiltres et documenter leur rendement afin d'aider les agriculteurs et les concepteurs à définir des systèmes plus fiables (Drennan et al. 2006 ; Gutierrez-Wing et Malone 2006). Ces dernières années, l'industrie aquacole a opté pour des conceptions de biofiltres qui ont été largement étudiées et peuvent donc offrir des performances prévisibles. Le bioréacteur à lit mobile (Rusten et al. 2006), le bioréacteur à filtre à sable fluidisé (Summerfelt 2006) et le bioréacteur à lit fixe (Emparanza 2009 ; Zhu et Chen 2002) sont des exemples de modèles de biofiltres à croissance attachés qui sont devenus des standards dans le système commercial moderne. Les filtres Trickling (Díaz et al. 2012), un autre design populaire, ont vu leur popularité réduite en raison de leurs exigences de pompage relativement élevées et de leurs tailles relativement grandes.
3.2.3 Biosolides
Les biosolides du RAS proviennent d'aliments pour poissons, de matières fécales et de biofilms (Timmons et Ebeling, 2010) et constituent l'un des paramètres de qualité de l'eau les plus critiques et les plus difficiles à contrôler. Comme les biosolides servent de substrat à la croissance bactérienne hétérotrophe, une augmentation de leur concentration pourrait éventuellement entraîner une augmentation de la consommation d'oxygène, une mauvaise performance des biofiltres (Michaud et al., 2006), une augmentation de la turbidité de l'eau et même un blocage mécanique de certaines parties du système (Becke et al., 2016 ; Chen et al. 1994 ; Couturier et al. 2009).
Dans le RAS, les biosolides sont généralement classés en fonction de leur taille et de leur capacité d'élimination par certaines techniques. De la fraction totale des solides produites dans un RAS, les solides décantables sont généralement plus grands que 100 μm et qui peuvent être éliminés par séparation par gravité. Les solides en suspension, dont la taille varie de 100 μm à 30 μm, sont ceux qui ne se déposent pas en suspension, mais qui peuvent être éliminés par des moyens mécaniques (c'est-à-dire par tamisage). Les solides fins, dont la taille est inférieure à 30 μm, sont généralement ceux qui ne peuvent pas être éliminés par tamisage et doivent être contrôlés par d'autres moyens tels que des procédés physico-chimiques, des procédés de filtration membranaire, de dilution ou de bioclarification (Chen et al., 1994 ; Lee, 2014 ; Summerfelt et Hochheimer, 1997 ; Timmons et Ebeling, 1997 ; 2010 ; Wold et coll. 2014). Les techniques de contrôle des solides décantables et en suspension sont bien connues et développées, et une documentation abondante existe sur le sujet. Par exemple, l'utilisation de réservoirs à double drain, de séparateurs à tourbillons, de séparateurs d'écoulement radial et de bassins de décantation est un moyen populaire de contrôler les solides décantables (Couturier et al., 2009 ; Davidson et Summerfelt, 2004 ; De Carvalho et al., 2013 ; Ebeling et al., 2006 ; Veerapen et al., 2005). Les filtres à microécran sont la méthode la plus populaire pour contrôler les solides en suspension (Dolan et al., 2013 ; Fernandes et al., 2015) et sont souvent utilisés dans l'industrie pour contrôler les solides décantables et en suspension à l'aide d'une seule technique. D'autres dispositifs de capture de solides populaires sont les filtres de profondeur tels que les filtres à billes (Cripps et Bergheim 2000) et les filtres à sable rapides, qui sont également populaires dans les applications de piscine. De plus, des directives de conception visant à prévenir l'accumulation de solides dans les réservoirs, les tuyauteries, les puisards et d'autres composants du système sont également disponibles dans la littérature (Davidson et Summerfelt 2004 ; Lekang 2013 ; Wong et Piedrahita 2000). Enfin, les solides fins du RAS sont couramment traités par ozonation, bioclarification, fractionnement de mousse ou une combinaison de ces techniques. Au cours des dernières années, l'élaboration du RAS a porté sur une meilleure compréhension de la façon de contrôler la fraction de solides fins et de comprendre son effet sur le bien-être des poissons et le rendement du système.
# 3.2.4 Dioxyde de carbone (COSub2/Sub)
Dans le RAS, le contrôle des gaz dissous ne s'arrête pas à fournir de l'oxygène aux poissons. D'autres gaz dissous dans l'eau d'élevage peuvent nuire au bien-être des poissons s'ils ne sont pas contrôlés. Les concentrations élevées de dioxyde de carbone dissous (COSub2/sub) dans l'eau inhibent la diffusion du COSub2/sub dans le sang des poissons. Chez les poissons, l'augmentation du COsub2/sub dans le sang réduit le pH du sang et, à son tour, l'affinité de l'hémoglobine pour l'oxygène (Noga, 2010). Des concentrations élevées de COsub2/sous ont également été associées à la néphrocalcinose, aux granulomes systémiques et aux dépôts calcaires dans les organes des salmonidés (Noga, 2010). Le COsub2/sub dans le RAS est un produit de la respiration hétérotrophe par les poissons et les bactéries. En tant que gaz hautement soluble, le dioxyde de carbone n'atteint pas l'équilibre atmosphérique aussi facilement que l'oxygène ou l'azote et, par conséquent, il doit être mis en contact avec des volumes élevés d'air à faible concentration de COSub2/sub pour assurer un transfert hors de l'eau (Summerfelt 2003). En règle générale, les RAS qui sont alimentés en oxygène pur nécessiteront une forme quelconque de décapage au dioxyde de carbone, tandis que les RAS qui sont alimentés en aération pour la supplémentation en oxygène ne nécessiteront pas de décapage actif COSub2/sub (Eshchar et al., 2003 ; Loyless et Malone, 1998).
En théorie, tout dispositif de transfert ou d'aération de gaz ouvert à l'atmosphère offrira une certaine forme de décapage COSub2/Sub. Cependant, les dispositifs spécialisés de décapage du dioxyde de carbone exigent que de grands volumes d'air soient mis en contact avec l'eau de procédé. Les conceptions de décapants COSub2/Sub se sont surtout concentrées sur les dispositifs de type cascade tels que les aérateurs en cascade, les biofiltres et, plus important encore, l'aérateur à colonne emballée (Colt et Bouck 1984 ; Moran 2010 ; Summerfelt 2003), qui est devenu un équipement standard dans le RAS commercial fonctionnant avec de l'oxygène pur. Bien que le développement de la technologie d'aération des colonnes emballées ait progressé au cours des dernières années, la plupart des recherches effectuées sur cet appareil ont porté sur la compréhension de son rendement dans différentes conditions (c.-à-d. eau douce par rapport à eau de mer) et les variations de conception telles que la hauteur, les types d'emballage et les taux de ventilation . On sait que l'effet du débit de charge hydraulique (débit unitaire par unité de surface du dégazeur) a un effet sur l'efficacité d'un dégazeur, mais des recherches plus poussées sont nécessaires pour mieux comprendre ce paramètre de conception.
# 3.2.5 Pression totale du gaz (TGP)
La pression totale des gaz (TGP) est définie comme la somme des pressions partielles de tous les gaz dissous dans une solution aqueuse. Moins un gaz est soluble, plus il occupe de « place » dans la solution aqueuse et, par conséquent, plus il y exerce de pression. Parmi les principaux gaz atmosphériques (azote, oxygène et dioxyde de carbone), l'azote est le moins soluble (par exemple 2,3 fois moins soluble que l'oxygène et plus de 90 fois moins soluble que le dioxyde de carbone). Ainsi, l'azote contribue à la pression totale du gaz plus que tout autre gaz, mais n'est pas consommé par les poissons ou les bactéries hétérotrophes, de sorte qu'il s'accumule dans l'eau à moins qu'il ne soit décapé. Il est également important de noter que l'oxygène contribuera également à un taux élevé de TGP si le processus de transfert de gaz ne permet pas de déplacer les gaz excédentaires hors de la solution. Un exemple classique de cela sont les étangs avec une activité photoautotrophique en eux. Les photoautotrophes (généralement des organismes végétaux qui effectuent la photosynthèse) libèrent de l'oxygène dans l'eau tandis qu'une surface d'eau calme peut ne pas fournir suffisamment d'échange gazeux pour que l'excès de gaz s'échappe dans l'atmosphère et, par conséquent, une sursaturation peut se produire.
Les poissons ont besoin de pressions totales de gaz égales à la pression atmosphérique. Si les poissons respirent de l'eau avec une pression de gaz totale élevée, l'excès de gaz (généralement de l'azote) sort de la circulation sanguine et forme des bulles, ce qui entraîne souvent de graves effets sur la santé des poissons (Noga, 2010). En aquaculture, c'est ce qu'on appelle la maladie des bulles de gaz.
Pour éviter un TGP élevé, il faut examiner attentivement toutes les zones du SAR où le transfert de gaz peut se produire. L'injection d'oxygène à haute pression sans dégazage (permettant le déplacement de l'excès d'azote hors de l'eau) peut également contribuer à un taux élevé de TGP. Dans les systèmes de poissons très sensibles au TGP, l'utilisation de dégazeurs sous vide est une option (Colt et Bouck 1984). Cependant, maintenir un RAS exempt de zones de pressurisation non contrôlée des gaz, en utilisant des décapants au dioxyde de carbone (qui dépouilleront également l'azote) et en dosant l'oxygène technique avec soin, est suffisant pour maintenir le TGP à des niveaux sûrs dans les RAS commerciaux.
3.2.6 Nitrate
Le nitrate (NOSub3/sub) est le produit final de la nitrification et est généralement le dernier paramètre à contrôler dans la RAS, en raison de sa toxicité relativement faible (Davidson et al., 2014 ; Schroeder et al., 2011 ; van Rijn, 2013). Cela est principalement attribuable à sa faible perméabilité à la membrane branchiale des poissons (Camargo et Alonso, 2006). L'action toxique du nitrate est similaire à celle du nitrite, affectant la capacité des molécules porteuses d'oxygène. Le contrôle des concentrations de nitrates dans le RAS a traditionnellement été obtenu par dilution, en contrôlant efficacement le temps de rétention hydraulique ou le taux de change quotidien. Cependant, le contrôle biologique des nitrates à l'aide de réacteurs de dénitrification est un domaine de recherche et de développement croissant dans le RAS.
La tolérance au nitrate peut varier selon les espèces aquatiques et le stade vital, la salinité ayant un effet d'amélioration sur sa toxicité. Il est important que les opérateurs SAR comprennent les effets chroniques de l'exposition au nitrate plutôt que les effets aigus, car les concentrations aiguës ne seront probablement pas atteintes pendant le fonctionnement normal du SRA.
3.2.7 Alcalinité
L'alcalinité est, en termes généraux, définie comme la capacité tampon du pH de l'eau (Timmons et Ebeling, 2010). Le contrôle de l'alcalinité dans le RAS est important car la nitrification est un processus de formation d'acide qui la détruit. En outre, les bactéries nitrifiantes nécessitent un apport constant d'alcalinité. Une faible alcalinité dans le RAS entraînera des sauts de pH et un dysfonctionnement du biofiltre nitrifiant (Summerfelt et al., 2015 ; Colt, 2006). L'addition d'alcalinité dans le RAS sera déterminée par l'activité de nitrification dans les systèmes, qui est à son tour liée à l'ajout d'aliments, par la teneur en alcalinité de l'eau de maquillage (échange quotidien) et par la présence d'une activité dénitrifiante, qui rétablit l'alcalinité (van Rijn et al. 2006).
3.3 Faits nouveaux dans le SAR
Original publication · Publié pour la première fois sur FarmHub Learn · Aquaponics Food Production Systems
Ces dernières années, le nombre et la taille des exploitations aquacoles en recirculation ont augmenté, en particulier en Europe. Avec l'acceptation croissante de la technologie, des améliorations par rapport aux approches techniques traditionnelles, aux innovations et aux nouveaux défis techniques ne cessent d'émerger. La section suivante décrit les principales tendances en matière de conception et d'ingénierie ainsi que les nouveaux défis auxquels fait face la technologie de recirculation de l'aquaculture.
3.3.1 Oxygénation du débit principal
Le contrôle de l'oxygène dissous dans le RAS moderne vise à augmenter l'efficacité du transfert d'oxygène et à diminuer les besoins énergétiques de ce processus. L'amélioration de l'efficacité du transfert d'oxygène peut être obtenue en concevant des systèmes qui maintiennent l'oxygène gazeux en contact avec l'eau plus longtemps, tandis qu'une diminution des besoins énergétiques peut être obtenue par l'utilisation de systèmes de transfert d'oxygène à faible tête ou par l'utilisation de systèmes qui n'utilisent pas du tout l'électricité, comme l'oxygène liquide systèmes connectés à des diffuseurs d'oxygène fonctionnant uniquement par pression. Un facteur déterminant des oxygénateurs à faible tête est la concentration dissoute relativement faible qui peut être atteinte par rapport aux systèmes à haute pression. Pour surmonter cette limite, les dispositifs d'oxygénation à faible tête sont stratégiquement placés pour traiter le flux de recirculation complet au lieu d'utiliser un dérivation plus petit d'eau hautement sursaturée, assurant ainsi un transport de masse suffisant de l'oxygène. L'utilisation de dispositifs d'oxygénation installés dans le flux principal de recirculation permet de réaliser des économies dans la consommation d'électricité, car l'utilisation de systèmes haute pression à forte intensité énergétique qui sont nécessaires pour atteindre des concentrations élevées d'OD dans les petits débits est évitée. Les systèmes d'oxygénation à faible tête peuvent également réduire la quantité de systèmes de pompage nécessaires, étant donné que les systèmes d'oxygénation à haute pression sont généralement placés sur un dérivation dans les canalisations qui vont aux bassins à poissons. En revanche, les dispositifs d'oxygénation à faible tête ont tendance à être relativement plus grands en raison de leur nécessité de gérer des débits plus importants et, par conséquent, leur coût initial peut être plus élevé. Parmi les dispositifs qui peuvent traiter la totalité du débit, mentionnons l'oxygénateur à tête basse (LHO) (Wagner et al., 1995), actionné par gravité lorsque l'eau est d'abord pompée dans un biofiltre et une colonne remplie (Summerfelt et al., 2004), les cônes d'oxygène à tête basse et les variantes du cône Speece (Ashley et al., 2008 ; Timmons et Losordo 1994) fonctionnait à basse pression, les cônes de puits profonds (Kruger Kaldnes, Norvège), également une variante du cône Speece conçu pour atteindre des pressions de fonctionnement plus élevées au moyen d'une pression hydrostatique accrue résultant de placer les dispositifs plus bas que les bassins à poissons et les puisards de pompe, l'oxygénateur à tube en U et ses variantes de conception telles que le tube Farrell ou le système breveté de dissolveur d'oxygène (AquaMoof, Israël) et l'utilisation de l'oxygénation diffuse dans les bassins à poissons profonds (fig. 3.5).
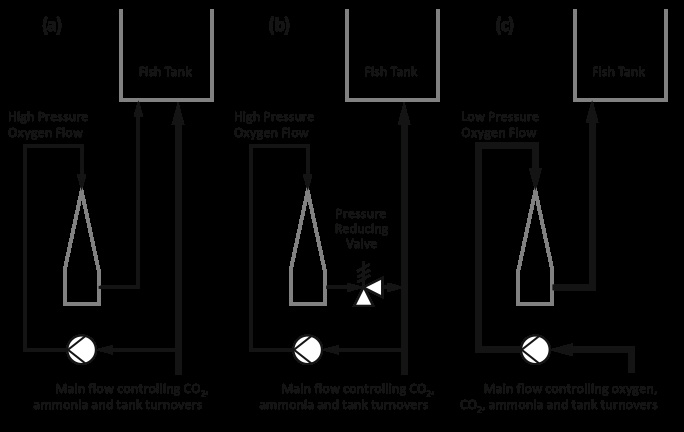
Fig. 3.5 Alternatives de transfert de gaz pour la recirculation de l'eau qui retourne dans les bassins à poissons. Si le récipient en contact avec le gaz permet une pressurisation, l'oxygène peut être transféré à des concentrations élevées dans des flux à haute pression relativement petits (a, b). Cependant, l'oxygène à des concentrations plus faibles peut être transféré dans la boucle principale de recirculation, mais pour cela, le dispositif de transfert d'oxygène doit être beaucoup plus grand pour gérer l'écoulement complet du système (c)
3.3.2 Alternatives de biofiltration nitrifiantes
Bien que les biofiltres nitrifiants continuent d'être la principale méthode commercialement acceptée d'élimination de l'ammoniac dans les SAR commerciaux, de nouvelles technologies d'élimination de l'azote ont été mises au point au cours des dernières années. Certaines de ces technologies envisagent d'autres voies biologiques pour éliminer l'ammoniac de l'eau de culture, tandis que d'autres visent à remplacer ou à travailler en parallèle avec les biofiltres nitrifiants afin de réduire les limites inhérentes. Il s'agit notamment de la grande taille des réacteurs, de la susceptibilité aux collisions, des temps de démarrage longs et des performances plus faibles dans les systèmes d'eau froide et les systèmes marins.
Procédés basés sur Anammox
Une autre voie biologique d'élimination de l'ammoniac envisagée pour le RAS est le processus d'anammox (Tal et al., 2006), qui se produit dans des conditions anaérobies. L'oxydation anaérobie de l'ammoniac est un procédé qui élimine l'azote en combinant l'ammoniac et le nitrite pour produire de l'azote gazeux (van Rijn et al., 2006). Le procédé de l'anammox présente un intérêt pour le RAS car il permet une élimination autotrophique complète de l'azote, contrairement aux combinaisons traditionnelles de biofiltres nitrifiants avec des systèmes de dénitrification hétérotrophe nécessitant une addition de carbone organique (van Rijn et al. 2006). De plus, dans la voie de l'anammox, seule la moitié de l'ammoniac libéré par les poissons est oxydé aérobiquement en nitrite (nécessitant de l'oxygène), tandis que l'autre moitié est convertie en azote gazeux avec le nitrite produit. Cela pourrait permettre d'économiser de l'oxygène et de l'énergie dans le RAS (van Rijn et al., 2006).
Des prototypes de réacteurs anammox ont été démontrés avec succès (Tal et al., 2006, 2009), tandis que l'activité de l'anammox a été suspectée dans les systèmes de dénitrification marine (Klas et al., 2006). Le projet européen DEAMNRECIRC a également réussi à créer des prototypes de réacteurs anammox pour les applications en eau froide et en eau de mer. Toutefois, les applications commerciales de la technologie n'ont pas encore été identifiées par les auteurs.
Élimination chimique de l'ammonia
Des systèmes d'élimination de l'ammoniac basés sur des processus d'échange d'ions et d'oxydation électrochimique sont proposés comme solutions de rechange aux biofiltres nitrifiants. Les processus d'échange d'ions reposent sur l'utilisation de matériaux adsorbants tels que les zéolites ou les résines sélectives d'ions pour extraire l'ammoniac dissous de l'eau (Lekang, 2013), tandis que les processus d'oxydation électrochimique convertissent l'ammoniac en azote gazeux grâce à un certain nombre de réactions d'oxydation complexes (Lahav et al., 2015). En comparaison, les processus d'échange d'ions conviennent aux eaux à faible concentration d'ions (c.-à-d. d'eau douce), tandis que les processus d'oxydation électrochimique tirent parti des ions chlorures présents dans l'eau pour produire des espèces de chlore actives qui réagissent facilement avec l'ammoniac (Lahav et al. 2015) et sont donc convient aux eaux où les concentrations d'ions chlorure sont plus élevées (c'est-à-dire les eaux saumâtres et marines).
Bien que les processus d'échange d'ions ne soient pas nouveaux, leur application dans le RAS a été limitée par leur capacité à maintenir la performance dans le temps : le matériau filtrant devient finalement « saturé », perdant sa capacité d'adsorption et, par conséquent, doit être régénéré. Gendel et Lahav (2013), ont proposé une nouvelle approche pour un procédé d'ammoniac basé sur un échange d'ions en tandem avec un procédé innovant de régénération adsorbant utilisant l'oxydation électrochimique. L'oxydation électrochimique de l'ammoniac est un processus qui a reçu une plus grande attention ces dernières années, et plusieurs concepts ont été étudiés et ont été lancés commercialement, par exemple EloXiras en Espagne.
Les facteurs limitant l'application de ces technologies dans les RAS commerciaux comprennent, dans le cas des processus d'échange d'ions, la mauvaise performance économique, la difficulté à régénérer de grandes quantités de matériaux adsorbants à la demande (Lekang 2013), la complexité du système nécessitant l'ajout de réactifs chimiques, la la consommation d'électricité et un degré élevé d'élimination des solides en suspension (Lahav et al. 2015), ce qui est souvent peu pratique dans les RAS à grande échelle. Dans le cas des procédés d'électrooxydation de l'ammoniac, la production d'espèces réactives toxiques nécessitant une élimination active est leur principale limite, bien que leur exigence élevée de contrôle des solides, souvent possible uniquement avec des filtres mécaniques pressurisés, constitue également un défi dans le système de gestion des eaux usées fonctionnant avec de grands débits et basse pression.
# 3.3.3 Contrôle des solides fins
Les solides fins sont la fraction solide dominante dans le RAS, les particules \ 30 μm formant plus de 90 % du total des solides en suspension dans l'eau de culture. Des études récentes ont révélé que plus de 94 % des solides présents dans l'eau de culture d'un RAS ont une taille <20 μm ou « fine » (Fernandes et al., 2015). L'accumulation de solides fins se produit principalement lorsque les solides plus gros contournent les filtres mécaniques (qui ne sont pas 100% efficaces) et sont finalement décomposés par les pompes, le frottement avec les surfaces et l'activité bactérienne. Une fois que la taille des solides est réduite, les techniques traditionnelles de filtration mécanique sont rendues inutiles.
Au cours des dernières années, on continue d'étudier les effets sur la production, le contrôle, le bien-être du poisson et les effets sur le rendement du système des solides fins. Les effets des solides fins sur le bien-être des poissons ont d'abord été étudiés dans le cadre de recherches sur les pêches (Chen et al., 1994). Cependant, les effets directs des solides fins dans le RAS sur le bien-être des poissons n'ont pas fait l'objet d'une étude approfondie jusqu'à récemment. Étonnamment, des travaux distincts sur la truite arc-en-ciel réalisés par Becke et al. (2016) et Fernandes et al. (2015) n'ont révélé aucun effet négatif sur le bien-être dans les systèmes dont les concentrations de solides en suspension atteignaient 30 mg/l dans les essais d'exposition de 4 et 6 semaines, respectivement. Malgré ces résultats, les effets indirects de l'accumulation de solides fins dans le RAS sont connus (Pedersen et al., 2017) et seraient principalement liés à la prolifération de micro-organismes opportunistes (Vadstein et al., 2004 ; Attramadal et al., 2014 ; Pedersen et al., 2017) puisque les solides fins fournissent une surface élevée substrat de zone pour les bactéries à coloniser. Un autre effet négatif important de l'accumulation de solides fins est l'augmentation de la turbidité, ce qui rend l'inspection visuelle des poissons difficile et peut entraver les stratégies de contrôle de la photopériode qui exigent une pénétration de la lumière dans la colonne d'eau. Les stratégies de lutte contre les solides fins utilisées dans les RAS modernes comprennent l'ozonation, l'écrémage des protéines, la flottaison, la filtration des cartouches et la filtration membranaire (Couturier et al., 2009 ; Cripps et Bergheim, 2000 ; Summerfelt et Hochheimer, 1997 ; Wold et al., 2014). Les écrémeuses protéiques, aussi connues sous le nom de fractionneurs de mousse, sont aussi des dispositifs de contrôle relativement populaires des solides fins, surtout dans les systèmes marins (Badiola et al., 2012).
3.3.4 Ozonation
Les connaissances sur l'application de l'ozone (O<sub3/sub) dans la RAS existent depuis les années 1970 et 1980 (Summerfelt et Hochheimer, 1997). Cependant, son application n'a pas été aussi répandue que d'autres procédés comme les biofiltres nitrifiants ou les filtres mécaniques (Badiola et al., 2012). Outre le traitement des solides fins, l'ozone, en tant que comburant puissant, peut être utilisé dans le RAS pour éliminer les micro-organismes, les nitrites et les substances humiques (Gonçalves et Gagnon, 2011). Au cours des dernières années, on a constaté une augmentation des connaissances sur les possibilités et les limites de l'ozone appliqué à la fois dans les ZAR d'eau douce et marine. Fait important, les doses d'ozone qui peuvent être atteintes sans danger pour améliorer la qualité de l'eau dans les systèmes d'eau douce et d'eau de mer ont été confirmées dans plusieurs publications (Li et al., 2015 ; Park et al., 2013, 2015 ; Schroeder et al., 2011 ; Summerfelt, 2003 ; Timmons et Ebeling, 2010), avec la conclusion que les doses d'ozone au-delà des limites recommandées (1) n'améliorent pas davantage la qualité de l'eau et (2) peuvent avoir des effets négatifs sur le bien-être, en particulier dans les systèmes d'eau de mer où une ozonation excessive provoquera la formation d'oxydants résiduels toxiques. Dans le RAS d'eau froide, les exigences en matière d'ozonation pour obtenir une désinfection complète du débit du procédé ont été déterminées (Summerfelt et al., 2009).
L'ozonation améliore le rendement du filtre microécran et minimise l'accumulation de matière dissoute affectant la couleur de l'eau (Summerfelt et al., 2009).
Toutefois, une ozonation excessive peut avoir des effets néfastes sur les poissons d'élevage, notamment des dommages histopathologiques aux tissus (Richardson et al., 1983 ; Reiser et al., 2010) et des altérations du comportement alimentaire (Reiser et al., 2010) ainsi que du stress oxydatif (Ritola et al., 2000, 2002 ; Livingstone, 2003). De plus, les sous-produits de l'ozonation peuvent être nocifs. Le bromate est l'un de ces produits et est potentiellement toxique. Tango et Gagnon (2003) ont montré que les SAR marins ozonés ont des concentrations de bromate susceptibles de nuire à la santé des poissons. Reiser et coll. (2011) ont étudié la toxicité chronique et sublétale des oxydants produits par l'ozone (BOA) chez le flétan juvénile, tandis que Good et coll. (2011) ont évalué la santé et le bien-être de la truite arc-en-ciel dans la RAS ozonée et non ozonée. L'augmentation de la truite arc-en-ciel à la taille du marché dans le RAS ozoné a amélioré la performance des poissons sans avoir d'incidence significative sur leur santé et leur bien-être, tandis que des doses élevées du BOA affectent le bien-être du flétan juvénile
3.3.5 Dénitrification
Dans la plupart des systèmes aquacoles en recirculation, le nitrate, produit final de la nitrification, tend à s'accumuler. Cette accumulation est généralement contrôlée par dilution (introduction d'eau nouvelle dans le système). Le contrôle du nitrate par dilution peut être un facteur limitant à l'exploitation d'un SAR en raison de la réglementation environnementale, de la faible disponibilité d'eau nouvelle, du coût du traitement des flux d'eau entrant et d'effluents ou des coûts associés au refroidissement ou au chauffage de l'eau nouvelle.
L'élimination biologique du nitrate dans le RAS peut être obtenue par des bactéries anaérobies facultatives utilisant une voie dissimilatoire pour convertir le nitrate en azote gazeux en présence de carbone et de nitrate comme donneurs d'électrons (van Rijn et al., 2006). Les réacteurs de dénitrification sont donc des réacteurs biologiques généralement exploités dans des conditions anaérobies et généralement dosés avec un certain type de source de carbone comme l'éthanol, le méthanol, le glucose, la mélasse, etc. La technologie de dénitrification est en cours de développement depuis les années 1990 (van Rijn et Riviera, 1990), mais sa popularité auprès de l'industrie aquacole en recirculation n'a fait qu'augmenter au cours des dernières années, offrant des solutions novatrices pour les réacteurs de dénitrification.
L'une des applications les plus notables des systèmes de dénitrification en aquaculture est le RAS « zéro échange » (Yogev et al. 2016), qui utilise la digestion anaérobie des biosolides produits dans le système pour produire des acides gras volatils (VFA) qui sont ensuite utilisés par les dénitrificateurs comme source de carbone. Klas, à al. (2006), a mis au point un système de dénitrification « singlesludge », où la production de VFA à partir de biosolides et la dénitrification se produisent dans un seul réacteur mixte. Suhr et al. (2014) ont développé le concept de ludge simple en l'adaptant pour le traitement en bout de tuyau des effluents de pisciculture et en ajoutant une étape supplémentaire qui sépare la production de VFA du réacteur de dénitrification dans un réservoir d'hydrolyse. Ces travaux ont fourni des informations précieuses sur les possibilités d'utiliser des biosolides aquacoles plutôt que des sources de carbone inorganique coûteuses pour la dénitrification. De plus, Christianson et al. (2015) ont étudié l'efficacité des réacteurs autotrophes de dénitrification à base de soufre comme alternative aux réacteurs de dénitrification hétérotrophe conventionnels. Les réacteurs autotrophes produisent moins de biomasse (solides) et peuvent être alimentés en particules de soufre, qui sont moins chers que les sources classiques de carbone inorganique.
Les VFA sont également la composante précurseur de la production de biopolymères tels que les polyhydroalcanoates (PHA), utilisés pour produire des plastiques biodégradables (Pittmann et Steinmetz, 2013). Cela pourrait permettre aux exploitations piscicoles employant des procédés anaérobies de boues activées de faire partie du concept de « bioraffinerie » appliqué aux usines de traitement des eaux usées.
3.3.6 Contrôle microbien
Les communautés microbiennes sont des constituants importants de l'écosystème aquatique. Dans les systèmes de production aquacole, ils jouent un rôle important dans le recyclage des éléments nutritifs, la dégradation de la matière organique et le traitement et le contrôle des maladies (Zeng et al., 2017). La mise au point d'un RAS efficace, productif, biologiquement sûr et exempt de maladies exige une compréhension approfondie de tous les processus de maintien de la vie, des processus physiques et chimiques (transfert de gaz, traitement thermique, ozonation, irradiation UV, ajustement du pH et de la salinité) aux processus biologiques (nitrification, dénitrification et l'activité hétérotrophique aérobie). Bien que les processus physiques et chimiques puissent être contrôlés, les systèmes de filtration biologique reposent sur l'interaction des communautés microbiennes les unes avec les autres et avec leur environnement en raison de l'apport d'éléments nutritifs (production de déchets de poisson) et, par conséquent, ne sont pas aussi faciles à contrôler (Schreier et al., 2010). Des études récentes utilisant des outils moléculaires ont non seulement permis d'évaluer la diversité microbienne dans les SAR, mais elles ont également fourni un aperçu de leurs activités, ce qui devrait permettre de mieux comprendre les interactions entre les communautés microbiennes. Il est certain que ces approches fourniront de nouvelles modalités de processus du SAR ainsi qu'un aperçu des nouveaux processus et outils permettant d'améliorer et de surveiller ces systèmes (Schreier et coll., 2010). La compréhension actuelle de la diversité microbienne des biofiltres RAS dans les systèmes d'eau douce et marins est fondée sur des études utilisant l'ARNr 16S et des sondes fonctionnelles spécifiques aux gènes ou des bibliothèques de gènes d'ARNr 16S plutôt que sur des techniques basées sur la culture (tableau 3.1).
Les connaissances sur la dynamique temporelle et spatiale du microbiote dans le SRA sont également limitées (Schreier et al., 2010), et les solutions possibles pour maintenir ou restaurer les communautés microbiennes bénéfiques dans le SRA font défaut (Rurangwa et Verdegem, 2015). En plus d'une communauté microbienne qui purifie l'eau, le microbiote de la RAS peut aussi abriter des agents pathogènes ou produire des composés non aromatisants (Guttman et van Rijn, 2008). Étant donné la difficulté de traiter la maladie pendant l'opération sans nuire au microbiote bénéfique, la prise en charge microbienne dans le SRA est plutôt une nécessité depuis le démarrage jusqu'à l'ensemble du processus de production. Les micro-organismes sont introduits dans le RAS par différentes voies : eau de maquillage, air, vecteurs animaux, nourriture, empoissonnement de poissons, équipement sale et par le personnel ou les visiteurs (Sharrer et al., 2005 ; Blancheton et al., 2013). D'autre part, des microbes spécifiques peuvent également être appliqués intentionnellement pour orienter la colonisation microbienne afin d'améliorer le rendement du système ou la santé animale (Rurangwa et Verdegem, 2015).
Tableau 3.1 Activités primaires associées aux unités de biofiltration SAR et aux micro-organismes participants. (Extrait de Schreier et coll. 2010)
table thead tr class="en-tête » THprocessus/TH Threaction/TH th Colspan="2"Microorganisme/TH /tr tr td/td td/td TDEau fraîche/TD TDmarine/TD /tr /thead tbody tr class="même » TDnitrification/TD td/td td/td td/td /tr tr class="impair » Tdammonium oxydation/td td NHsub4/subsup+/SUP + 1.5Osub2/sub → νosub2/sub + 2HSUP+/SUP + HSub2/Subo /td Tdinitrosomonas oligotropha/i/td TDinitrosomonas sp. /i/td /tr tr class="même » td/td td/td td/td Tdinitrosomonas cryotolérans/i/td /tr tr class="impair » td/td td/td td/td Tdinitrosomonas europaea/i/td /tr tr class="même » td/td td/td td/td Tdinitrosomonas cinnybus/ nitrosa/i/td /tr tr class="impair » td/td td/td td/td TDinitrosoCoccus mobilis/i/td /tr tr class="même » TDnitrite oxydation/td td νO2sup-/SUP + H2O → No3sup-/SUP + 2HSUP+/SUP + 2esup -/sup
/td TDinitroSpira spp. /i/td td/td /tr tr class="impair » td/td td/td TdinitroSpira marina/isupa/sup/td TdinitroSpira marina/isupa/sup/td /tr tr class="même » td/td td/td TDinitroSpira moscoviensis/isupa/sup/td TDinitroSpira moscoviensis/isupa/sup/td /tr tr class="impair » TDDénitrification/TD td/td td/td td/td /tr tr class="même » TDAutotrophique/TD td Ssub2/Subsup-/SUP + 1.6NoSub3/Subsup-/SUP + 1.6Hsup +/sup
→ /td td/td Tdithiomicrosporia dénitrificans/i/td /tr tr class="impair » td (dépendant du sulfure) /td td SOSub4/Subsup2-/SUP + 0.8NSub2/Sub (g) + 0.8HSub2/Subo /td td/td TDIthioThrix disciformis/isupa/sup/td /tr tr class="même » td/td td/td td/td TdirhodoBacter litoralis/isupa/sup/td /tr tr class="impair » td/td td/td td/td TDIHydrogenophaga sp. /i/td /tr tr class="même » TDHétérotrophique/TD td 5CHSub3/sous-coosup-/SUP + 8NOSub3/Subsup-/SUP + 3Hsup +/sup
→ /td td/td TDIPseudomonas fluorescens/i/td /tr tr class="impair » td/td td 10HCOSub3/Subsup-/SUP + 4NSub2/Sub (g) + 4HSub2/Subo /td TDIPseudomonas sp. /i/td TDIPseudomonas stutzeri/i/td /tr tr class="même » td/td td/td TDiComamonas sp. /i/td TDIPseudomonas sp. /i/td /tr tr class="impair » td/td td/td td/td TDIParacocus denitrificans/i/td /tr tr class="même » TDNitrate dissimilateur/td td NoSub3/Subsup-/SUP + 2HSUP+/SUP + 4HSub2/sub → NHsub4/subsup+/SUP + 3Hsub2/subO /td td/td TDIDiverses protéobactéries et firmicutes/I/TD /tr tr class="impair » TdReduction à l'ammoniac (DNRA) /td td/td td/td td/td /tr tr class="même » TdanAerobium/td td NHsub4/Subsup+/SUP + Nosub2/Subsup-/SUP → NSub2/Sub (g) + 2HSub2/Subo /td td/td TDiplanctoMycetes spp. /i/td /tr tr class="impair » tdoxidation (Anammox) /td td/td td/td TDibrocadia sp. /isupa/sup/td /tr tr class="même » TDsulfate réduction/td td SO4sup2-/SUP + CHsub3/sous-coosup-/SUP + 3HSUP+/SUP → /td td/td TDideSulfoVibrio sp. , /i/td /tr tr class="impair » td/td TDHSSUP-/SUP + 2HCOsub3/Subsup-/SUP + 3HSUP+/SUP/TD td/td Tdidethiosulfovibrio sp. , /i/td /tr tr class="même » td/td td/td td/td Tdifusibacter/I sp., ibacteroides sp. /i/td /tr tr class="impair » Oxydation du sulfure de TD/td td HSSUP-/SUP + 2OSub2/sub → SOSub4/Subsup2-/SUP + HSUP+/SUP /td td/td TdithiomicroSpira sp. /i/td /tr tr class="même » TDméthanogenèse/TD td 4HSub2/Sub + HSUP+/SUP + HCOSub3/Subsup-/SUP → CHSub4/Sub (g) + 3HSub2/Subo /td td/td TDMethanogenic Archaea [Mirzoyan et Gross, non publié] /td /tr /tbody /table
Supa/Supmicro-organismes identifiés uniquement sur la base de gènes partiels de l'ARNr 16S ou de séquences de gènes fonctionnels
L'une des approches pour inhiber la colonisation par les agents pathogènes est l'utilisation de bactéries probiotiques qui peuvent concurrencer les nutriments, produire des inhibiteurs de croissance ou, étancher la communication cellulaire à cellule (détection du quorum) qui permet de se déposer dans les biofilms (Defoirdt et al. 2007, 2008 ; Kesarcodi-Watson et al. 2008). Les bactéries probiotiques comprennent Bacillus, Pseudomonas (Kesarcodi-Watson et al., 2008) et Roseobacter spp. (Bruhn et al., 2005), et des bactéries apparentées ont également été identifiées dans les biofiltres RAS (Schreier et al., 2010) (tableau 3.1). Afin d'obtenir l'information nécessaire à la gestion de la stabilité microbienne dans le SRAS, Rojas-Tirado et al. (2017) ont identifié les facteurs influant sur les changements de la dynamique bactérienne en termes d'abondance et d'activité. Leurs études montrent que l'activité bactérienne n'était pas un paramètre prévisible simple dans la phase aqueuse, car les concentrations de nitrate N dans le même RAS ont montré des changements soudains et des fluctuations inattendues dans l'un des systèmes. Les particules en suspension dans le RAS fournissent une surface qui peut être colonisée par des bactéries. Plus de particules s'accumulent à mesure que l'intensité de la recirculation augmente, ce qui augmente potentiellement la capacité de charge bactérienne des systèmes. Pedersen et coll. (2017) ont exploré la relation entre la surface totale des particules (TSA) et l'activité bactérienne dans la RAS d'eau douce. Ils ont indiqué une forte corrélation linéaire positive entre la TSA et l'activité bactérienne dans tous les systèmes dont l'intensité de recirculation est faible à modérée. Cependant, la relation a apparemment cessé d'exister dans les systèmes ayant l'intensité de recirculation la plus élevée. Cela est probablement dû à l'accumulation de nutriments dissous qui soutiennent des populations bactériennes libres, et/ou à l'accumulation de colloïdes en suspension et de particules fines de moins de 5 μm de diamètre, qui n'ont pas été caractérisés dans leur étude, mais qui peuvent fournir une surface importante.
Dans le RAS, divers composés chimiques (principalement les nitrates et le carbone organique) s'accumulent dans l'eau d'élevage. Ces substrats chimiques régulent l'écophysiologie des communautés bactériennes sur le biofiltre et ont un impact sur son efficacité et sa fiabilité de nitrification. Michaud et coll. (2014) ont étudié le déplacement de la structure de la communauté bactérienne et de l'abondance relative des principaux taxons dans deux filtres biologiques différents et ont conclu que la dynamique et la souplesse de la communauté bactérienne pour s'adapter aux changements d'eau influents semblaient être liées à la performance du biofiltre. L'un des aspects clés de l'amélioration de la fiabilité et de la durabilité du RAS est la gestion appropriée des populations bactériennes du biofiltre, qui est directement liée à la disponibilité du C (carbone) (Avnimelech 1999). Il convient de noter que les RAS ont des propriétés qui peuvent effectivement contribuer à la stabilisation microbienne, notamment un long temps de rétention d'eau et une grande surface de biofiltres pour la croissance bactérienne, ce qui pourrait limiter les chances de prolifération de microbes opportunistes dans l'eau d'élevage ( Attramadal et al. 2012a).
Attramadal et al. (2012a) ont comparé le développement de la communauté microbienne dans un RAS avec une ozonation modérée (jusqu'à 350 mV) à celui d'un système d'écoulement continu conventionnel (FTS) pour le même groupe de morues franches, Gadus morhua. Ils ont trouvé moins de variabilité dans la composition bactérienne entre les bassins à poissons répliqués du RAS qu'entre les réservoirs du FTS. Le RAS avait une structure de communauté microbienne plus uniforme avec une plus grande diversité d'espèces et périodiquement une fraction plus faible d'opportunistes. Les poissons du RAS ont obtenu de meilleurs résultats que leur contrôle dans le FTS, bien qu'ils aient été exposés à une qualité physico-chimique apparente inférieure à celle de l'eau. Alors qu'ils étudient les effets de l'ozonation modérée ou de l'irradiation UV de haute intensité sur l'environnement microbien de la RAS chez les larves de poissons marins, Attramadal et al. (2012b) ont souligné qu'un RAS pour ces larves ne devrait probablement pas inclure une désinfection forte parce qu'il entraîne une réduction du nombre de bactéries, ce qui risque de déstabiliser la communauté microbienne. De plus, leurs résultats appuient l'hypothèse selon laquelle le RAS est une stratégie de contrôle microbien au cours de la première alimentation des larves de poissons.
Le RAS et la maturation microbienne comme outils de sélection K des communautés microbiennes ont fait l'objet de l'étude d'Attramadal et al. (2014) dans laquelle ils ont émis l'hypothèse que les larves de poissons qui sont élevées dans l'eau dominée par des stratèges K (communautés microbiennes matures) seront plus performantes, car elles sont moins probables de rencontrer des microbes opportunistes (sélectionnés R) et de développer des interactions hôte-microbe nuisibles. Les résultats de leur expérience ont montré un potentiel élevé d'augmentation de la survie des poissons en utilisant la sélection K des bactéries, méthode peu coûteuse et facile qui peut être utilisée dans toutes sortes de systèmes aquacoles nouveaux ou existants. De petits changements dans la gestion (charge organique et maturation de l'eau) du traitement de l'eau donnent des microbiotes significativement différents dans les bassins à poissons (Attramadal et al., 2016). D'autre part, les substances humiques (SH) sont des composés organiques naturels, comprenant un large éventail de polymères pigmentés de poids organique élevé. Ils sont des produits finaux dans la dégradation de composés organiques complexes et, lorsqu'ils sont abondants, ils produisent une couleur typique du sol et de l'eau de couleur brune à brunâtre foncé (Stevenson, 1994). Dans un système d'aquaculture à décharge zéro, des substances semblables à HS ont été détectées dans l'eau de culture ainsi que dans le sang des poissons (Yamin et al., 2017a). Un effet protecteur du HS a été signalé chez des poissons exposés à des métaux toxiques (Peuranen et al., 1994 ; Hammock et al., 2003) et à des concentrations toxiques d'ammoniac et de nitrite (Meinelt et al., 2010). De plus, des preuves ont été fournies quant à leur effet fongistatique sur l'agent pathogène du poisson, Saprolengia parasitica (Meinelt et al., 2007). Chez la carpe commune (Cyprinus carpio) exposée a) à de l'eau riche en humicité et à des boues provenant d'un système de recirculation, b) à un acide humique synthétique et c) à un extrait riche en humique dérivé de Leonardite, les taux d'infection ont été réduits à 14,9 %, 17,0 % et 18,8 % respectivement, comparativement à un taux d'infection de 46,8 % chez le témoin traitement (Yamin et al. 2017b). De même, l'exposition des poissons guppy (Poecilia reticulata), infectés par les monogénées Gyrodactylus turnbulli et Dactylogyrus sp. à l'eau et à l'alimentation riches en humies, a réduit à la fois la prévalence de l'infection ( % de poissons infectés) et l'intensité de l'infection (parasites par poisson) des deux parasites (Yamin et al. 2017c).
On croit que la recherche fondamentale dans le domaine de l'écologie microbienne des systèmes de réacteurs de nitrification et de dénitrification dans le RAS pourrait apporter des innovations qui pourraient modifier et/ou améliorer radicalement le rendement du réacteur dans le RAS. Jusqu'à présent, la communauté microbienne des réacteurs est encore difficile à contrôler (Leonard et al., 2000, 2002 ; Michaud et al., 2006, 2009 ; Schreier et al., 2010 ; Rojas-Tirado et al., 2017) et bon nombre des inefficacités du système en découlent (Martins et al., 2010b).
3.3.7 Efficacité énergétique
La viabilité économique de la production de poissons dans un système d'aquaculture en recirculation dépend, en partie, de la réduction des besoins énergétiques liés à l'exploitation de ces installations. Le RAS exige une infrastructure technique plus élevée que les systèmes ouverts, de sorte que les coûts énergétiques du RAS ont déjà été considérés comme des contraintes majeures qui pourraient empêcher l'application généralisée de cette technologie (Singh et Marsh, 1996). De tous les coûts associés à la consommation d'électricité dans le RAS, la ventilation et le refroidissement par eau sont généralement les plus importants. Dans le RAS intérieur, la ventilation des bâtiments est importante pour contrôler l'humidité et les niveaux de dioxyde de carbone. Un mauvais contrôle de l'humidité peut entraîner une détérioration rapide des structures des bâtiments, tandis que l'accumulation de dioxyde de carbone atmosphérique affectera les processus de décapage du dioxyde de carbone opérant dans le RAS et provoquera des étourdissements chez les travailleurs. Afin de maintenir une atmosphère acceptable à l'intérieur des installations, les installations de ventilation ou de climatisation sont largement exploitées (Gehlert et al., 2018). Ces systèmes de ventilation peuvent être équipés de mesures visant à réduire la consommation d'énergie. En outre, afin de mettre au point un RAS écologiquement viable, l'énergie peut être considérée comme un paramètre clé et, en particulier, l'énergie peut être considérée comme un indicateur important. Kucuk et al. (2010) ont effectué une analyse du rendement énergétique du RAS afin de contribuer à la gestion de l'énergie dans le RAS. Afin d'améliorer la performance énergétique du RAS, ils ont recommandé que les conditions de fonctionnement des composants, en particulier les pompes, soient optimisées et améliorées en fonction de la capacité de production de poisson du système.
Pour accroître l'efficacité, les gestionnaires du RAS ont besoin de lignes directrices et d'outils pour optimiser la production. Les audits énergétiques peuvent fournir des données réelles qui peuvent être utilisées pour la prise de décision. Badiola et al. (2014) ont étudié la consommation totale d'énergie (kWh) d'un système de cabillaud RAS en continu pendant 14 mois et ont identifié la pompe à chaleur comme un consommateur d'énergie le plus important pour les poissons d'élevage nécessitant un traitement thermique à haute eau. Gehlert et coll. (2018) ont conclu que les unités de ventilation offraient un potentiel important d'économies d'énergie dans le SAR. La plupart du temps, lorsque les paramètres climatiques de l'installation restent dans la plage souhaitée, les débits d'air peuvent être maintenus à de faibles niveaux pour économiser de l'énergie. En outre, les mesures d'économie d'énergie dans le RAS peuvent comprendre : des logiciels contenant des données sur la performance énergétique, des sources d'énergie alternatives pour chauffer l'eau et l'utilisation de convertisseurs de fréquence (Badiola et al., 2014).
3.4 Questions relatives au bien-être des animaux
Original publication · Publié pour la première fois sur FarmHub Learn · Aquaponics Food Production Systems
3.4.1 Introduction
Au cours de la dernière décennie, le bien-être des poissons a attiré beaucoup d'attention, ce qui a amené l'industrie aquacole à intégrer un certain nombre de pratiques et de technologies d'élevage spécialement conçues pour améliorer cet aspect. Le néocortex, qui, chez l'homme, est une partie importante du mécanisme neuronal qui génère l'expérience subjective de la souffrance, manque chez les poissons et les animaux non mammifères, et on a soutenu que son absence chez les poissons indique que les poissons ne peuvent pas souffrir. Un autre point de vue fort, cependant, est que les animaux complexes aux comportements sophistiqués, comme les poissons, ont probablement la capacité de souffrir, même si le degré et le caractère peuvent différer de l'expérience humaine de cet état (Huntingford et al., 2006).
Le Farm and Animal Welfare Committee (FAWC) du gouvernement du Royaume-Uni a fondé ses lignes directrices sur le cadre des « cinq libertés », qui définit les États idéaux plutôt que des niveaux spécifiques de bien-être acceptable (FAWC 2014). Le fait de ne pas souffrir de la faim et de la soif, de l'inconfort, de la douleur, des blessures, de la maladie, de la peur et de la détresse, ainsi que la liberté d'exprimer un comportement normal, nous fournit un cadre défini pour évaluer les questions de bien-être social. La santé physique est la mesure de bien-être la plus universellement acceptée et est sans aucun doute une condition nécessaire à un bon bien-être. Dans une industrie compétitive, en expansion et émergente, les aquaculteurs qui intègrent des considérations de bien-être dans leurs pratiques quotidiennes d'élevage peuvent obtenir un avantage concurrentiel et une prime de prix supplémentaire (Olesen et al., 2010) en améliorant la perception et la confiance des consommateurs envers leurs produits. Grimsrud et coll. (2013) ont démontré qu'il y avait une forte volonté de payer, parmi tous les ménages norvégiens, pour améliorer le bien-être du saumon atlantique d'élevage grâce à une résistance accrue aux maladies et aux poux du saumon, ce qui pourrait impliquer moins d'utilisation de médicaments et de produits chimiques dans le processus de production.
Dans les RAS intensifs, le bien-être des animaux est étroitement lié à la performance des systèmes. Au cours des dernières années, le bien-être des animaux dans le RAS a été principalement étudié du point de vue de la qualité de l'eau et des effets de l'encombrement des poissons sur le rendement de la croissance, les bioindicateurs du stress ou le développement de troubles de la santé. Le principal objectif de la recherche sur le bien-être des animaux dans le RAS était de construire et d'exploiter des systèmes qui maximisent la productivité et minimisent le stress et la mortalité. Les sujets d'intérêt ont été les limites de densité d'ensemencement (Calabrese et al., 2017), les limites de concentration de composés azotés dans l'eau d'élevage (Davidson et al., 2014), les limites de concentration pour le dioxyde de carbone dissous (Good et al., 2018), les effets de l'ozonation (Good et al., 2011 ; Reiser et al., 2011) et un dans une moindre mesure, l'accumulation de composés récalcitrants dans la RAS (van Rijn et Nussinovitch, 1997) avec des échanges d'eau et un bruit limités (Martins et al., 2012 ; Davidson et al., 2017).
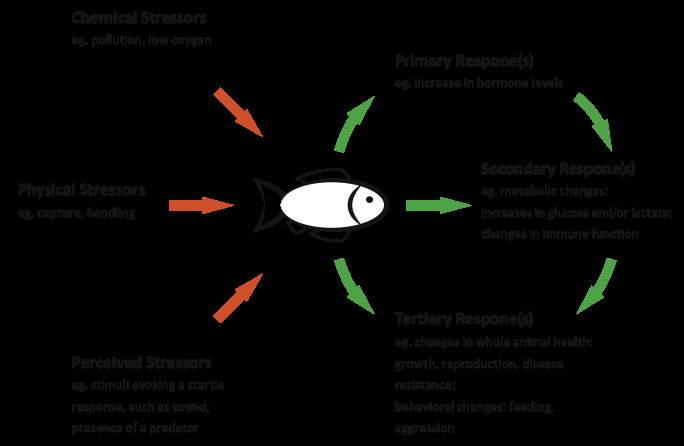
Fig. 3.6 Les facteurs physiques, chimiques et autres facteurs de stress perçus peuvent affecter les poissons et provoquer des réactions primaires, secondaires et/ou corporelles. (Après Barton 2002)
3.4.2 Contrainte
La réponse au stress chez les poissons est une fonction d'adaptation face à une menace perçue pour l'homéostasie et la physiologie du stress n'équivaut pas nécessairement à la souffrance et à la diminution du bien-être (Ashley, 2007) (figure 3.6). Les réponses au stress jouent une fonction très importante pour préserver l'individu. Les mesures de bien-être en aquaculture sont donc largement associées aux effets tertiaires de la réponse au stress qui sont généralement révélateurs d'un stress prolongé, répété ou inévitable (Conte, 2004).
La densité d'ensemencement est un facteur essentiel qui influe sur le bien-être des poissons dans l'industrie aquacole, en particulier dans le RAS où les densités élevées en milieu confiné visent à une productivité élevée. Bien que rarement définie, la densité d'ensemencement est le terme normalement utilisé pour désigner le poids des poissons par unité de volume ou par unité de volume dans le temps unitaire d'écoulement de l'eau dans l'environnement d'exploitation (Ellis et al., 2001). Le concept d'espace minimal pour un poisson est plus complexe que pour les espèces terrestres puisque les poissons utilisent un milieu tridimensionnel (Conte, 2004).
En plus de répondre aux besoins physiologiques, la FAWC (2014) recommande que les poissons « aient besoin d'un espace suffisant pour montrer un comportement normal avec un minimum de douleur, de stress et de peur ». La densité d'ensemencement est donc une zone qui illustre à la fois l'importance des différences entre les espèces et l'existence d'un réseau complexe de facteurs interactifs qui influent sur le bien-être des poissons. Calabrese et al. (2017) ont étudié les limites de densité d'ensemencement des saumons atlantiques post-saumoneaux (Salmosalar L.), en mettant l'accent sur la performance de production et le bien-être, où des dommages aux nageoires et des cataractes ont été observés dans des densités d'ensemencement de 100 kg msup-3/sup et plus. Cependant, l'effet de la densité d'ensemencement sur les mesures du bien-être varie d'une espèce à l'autre. Par exemple, le bar (Dicentrarchus labrax) a montré des niveaux de stress plus élevés à des densités élevées, comme l'indiquent le cortisol, la réponse immunitaire innée et l'expression de gènes liés au stress (Vazzana et al., 2002 ; Gornati et al., 2004). Les fortes densités d'ensemencement chez les daurades dorades juvéniles (S. aurata) produisent également une situation de stress chronique, reflétée par des taux élevés de cortisol, une immunosuppression et une altération du métabolisme (Montero et al., 1999). En revanche, l'omble chevalier (Salvelinus alpinus) se nourrit et se développe bien lorsqu'il est ensemencé à des densités élevées, tout en affichant un apport alimentaire et des taux de croissance faibles à de faibles densités (Jorgensen et al., 1993).
L'alimentation peut également jouer un rôle important dans la sensibilité au stress. Le poisson-chat africain (Clarias gariepinus) recevant un régime alimentaire avec une forte supplémentation en acide ascorbique (vitamine C) au début du développement a montré une sensibilité plus faible au stress (Merchie et al., 1997). D'autre part, la carpe commune (Cyprinus carpio), nourrie de fortes doses de vitamine C, a montré une augmentation plus prononcée du cortisol (hormone stéroïde libérée avec le stress) en réponse au stress par rapport aux niveaux recommandés de vitamine chez les poissons nourris (Dabrowska et al., 1991). Tort et coll. (2004) ont montré qu'un régime modifié fournissant une dose supplémentaire de vitamines et de minéraux minéraux pour aider le système immunitaire peut contribuer à réduire de façon concomitante certains des effets du syndrome de la maladie hivernale. D'autres maladies courantes de l'aquaculture concernant le bien-être des animaux et le stress sont examinées dans Ashley (2007).
3.4.3 Accumulation de substances dans l'eau de procédé
Les RAS intensifs et « à décharge zéro » offrent des avantages environnementaux significatifs. Cependant, la culture du poisson dans de l'eau recyclée en continu soulève la question de savoir si les substances rejetées par les poissons dans l'eau peuvent s'accumuler, ce qui entraîne une diminution des taux de croissance et une détérioration du bien-être. Martins et coll. (2010a) ont étudié l'existence d'un retard de croissance chez le tilapia du Nil (Oreochromis niloticus) en comparant la croissance, le comportement alimentaire et la réponse au stress des poissons cultivés dans le RAS avec différents niveaux de substances accumulées (TAN, NOsub2/sub-N et NOsub3/sub-N, orthophosphate-P). . Les résultats ont montré que les grands individus avaient une tendance à un retard de croissance dans la plus forte accumulation de RAS, tandis que les petits individus, au contraire, semblent mieux se développer dans de tels systèmes en se basant sur des niveaux élevés de glycémie comme indicateur de stress. Une étude similaire réalisée par le même auteur sur les embryons et les larves de carpes (Martins et al., 2011) a révélé des résultats qui suggèrent que la concentration de substances (orthophosphate-P, nitrate, arsenic et cuivre) était susceptible d'affecter le développement. Malgré ces résultats, les auteurs affirment que, dans l'ensemble, le pourcentage de mortalités et de difformités enregistrés dans l'étude était relativement faible comparativement à d'autres études. Dans les deux études, les auteurs ont utilisé des systèmes avec des taux d'échange d'eau très limités à l'aide de réacteurs de dénitrification (30 litres d'eau neuve par kg d'alimentation par jour). De même, l'accumulation d'hormones dans le RAS des salmonidés d'eau froide a été étudiée par Good et al. 2014, 2017). Leurs recherches en 2014 n'ont révélé aucune relation entre le taux d'échange d'eau et l'accumulation d'hormones (sauf pour la testostérone) ni aucun lien entre l'accumulation d'hormones et la maturation précoce chez le saumon atlantique, mais d'autres études ont été suggérées. Leur étude en 2017 a porté sur l'utilisation de l'ozonation pour la réduction des hormones dans le même RAS, avec des résultats non concluants concernant l'accumulation d'hormones stéroïdes, mais avec une réduction positive de l'œstradiol par l'ozone.
D'autre part, l'accumulation de substances humiques dans le RAS « zéro échange » a montré un effet protecteur contre les infections bactériennes (Yamin et al. 2017a) et les ectoparasites (Yamin et al. 2017b). Il a également été démontré que les acides humiques réduisent la toxicité de l'ammoniac et des nitrites (Meinelt et al., 2010). Cela a des conséquences pour le RAS opéré avec l'ozonation, car l'ozone peut améliorer la qualité de l'eau tout en sacrifiant les effets apparemment bénéfiques des substances humiques.
3.4.4 Santé et comportement
Les caractéristiques fondamentales d'un bon bien-être sont une bonne santé, l'absence de maladie et, en ce qui concerne l'aquaculture, une bonne productivité (Turnbull et Kadri, 2007 ; Volpato et al., 2007). Bien que la santé physique d'un animal soit fondamentale pour le bien-être (Ashley, 2007 ; Duncan, 2005), le fait qu'un animal soit en bonne santé ne signifie pas nécessairement que son statut de bien-être est adéquat. Ainsi, le bien-être social est un concept plus large et plus global que le concept de santé. Les mesures physiologiques et comportementales sont intrinsèquement liées et dépendent les unes des autres pour une interprétation correcte du bien-être (Dawkins 1998).
Le comportement des animaux et, dans notre cas, des poissons, représente une réaction à l'environnement au fur et à mesure que les poissons le perçoivent et le comportement est donc un élément clé du bien-être des poissons. Les changements dans le comportement d'alimentation, l'activité de ventilation des branchies, l'agressivité, le comportement de nage individuel et de groupe, les comportements stéréotypés et anormaux ont été associés à des facteurs de stress aigus et chroniques en aquaculture et peuvent donc être considérés comme des indicateurs probables d'un mauvais bien-être (Martins et al., 2011). Les indicateurs de bien-être comportementaux ont l'avantage d'être rapides et faciles à observer et sont donc de bons candidats à une utilisation « à la ferme ». Des exemples de comportement couramment utilisés comme indicateurs de bien-être sont les changements dans le comportement d'anticipation alimentaire, l'apport alimentaire, l'activité de natation et les taux de ventilation (Huntingford et al., 2006). Cependant, Barreto et Volpato (2004) mettent en garde l'utilisation de la fréquence de ventilation comme indicateur du stress chez les poissons, car bien que la fréquence de ventilation soit une réponse très sensible aux perturbations, elle est d'une utilité limitée parce qu'elle ne reflète pas la gravité du stimulus.
3.4.5 Bruit
Les poissons d'élevage sont cultivés pendant de longues périodes dans les mêmes bassins de même couleur et de même forme et exposés aux mêmes bruits de fond potentiellement nocifs (Martins et al., 2012). Les systèmes d'aquaculture intensive et particulièrement les systèmes de recirculation utilisent des équipements tels que des aérateurs, des pompes à air et à eau, des souffleurs et des systèmes de filtration qui augmentent par inadvertance les niveaux de bruit dans les bassins de pisciculture. Les niveaux sonores et les fréquences mesurés dans les systèmes d'aquaculture intensive se situent dans la plage de l'ouïe des poissons, mais les effets du bruit de production aquacole propres à chaque espèce ne sont pas bien définis (Davidson et al., 2009).
Bart et al. (2001) ont constaté que les niveaux moyens de pression acoustique à large bande (SPL) différaient d'un système aquacole intensif à l'autre. Dans son étude, un niveau sonore de 135 dB re 1μPa a été mesuré dans un étang en terre près d'un aérateur en service, alors que les grands réservoirs en fibre de verre (14 m de diamètre) d'un système de recirculation présentaient les SPL les plus élevés de 153 dB re 1 μPa.
Des études sur le terrain et en laboratoire ont montré que le comportement et la physiologie des poissons peuvent être influencés négativement par des sons intenses. Terhune et al. (1990) ont observé une diminution des taux de croissance et de smoltification du saumon atlantique, Salmo salar, dans des réservoirs en fibre de verre dont les niveaux sonores sous-marins étaient 2—10 dB re 1μPa plus élevés à 100—500 Hz que dans des réservoirs en béton. Par conséquent, l'exposition chronique au bruit de la production aquacole pourrait entraîner une augmentation du stress, une réduction des taux de croissance et de l'efficacité de la conversion des aliments et une diminution de Cependant, Davidson et coll. (2009) ont constaté qu'après 5 mois d'exposition au bruit, aucune différence significative n'a été relevée entre les traitements pour le poids moyen, la longueur, les taux de croissance spécifiques, le facteur de condition, la conversion des aliments ou la survie de la truite arc-en-ciel, Oncorhynchus mykiss. Des résultats similaires sont décrits par Wvysocki et coll. (2007). Cependant, ces résultats ne devraient pas être généralisés pour toutes les espèces de poissons d'élevage, car de nombreuses espèces, y compris le poisson-chat et les cyprinidés, ont une sensibilité auditive beaucoup plus grande que la truite arc-en-ciel et pourraient être affectées différemment par le bruit. Par exemple, Papoutsoglou et al. (2008) ont fourni des preuves initiales selon lesquelles la transmission de musique dans des conditions d'élevage particulières pourrait avoir des effets accrus sur la performance de croissance de S. aurata, du moins à des tailles précises de poissons. De plus, les effets musicaux observés sur plusieurs aspects de la physiologie des poissons (p. ex. enzymes digestives, composition en acides gras et neurotransmetteurs cérébraux) impliquent que certaines musiques pourraient améliorer encore davantage la croissance, la qualité, le bien-être et la production.
3.5 Défis d'évolutivité dans le SAR
Original publication · Publié pour la première fois sur FarmHub Learn · Aquaponics Food Production Systems
Les SAR sont des opérations à forte intensité de capital et nécessitent des dépenses financières élevées pour l'équipement, l'infrastructure, les systèmes de traitement des influents et des effluents, l'ingénierie, la construction et la gestion. Une fois la ferme RAS construite, le fonds de roulement est également nécessaire jusqu'à ce que les récoltes et les ventes réussissent. Les dépenses opérationnelles sont également importantes et comprennent principalement des coûts fixes tels que le loyer, les intérêts sur les prêts, l'amortissement et les coûts variables tels que les aliments pour poissons, les semences (alevins ou œufs), la main-d'œuvre, l'électricité, l'oxygène technique, les tampons de pH, l'électricité, les ventes/commercialisation, les coûts d'entretien, etc.
En comparant la productivité et l'économie, le RAS concurrencera invariablement d'autres formes de production de poissons et même d'autres sources de production de protéines destinées à la consommation humaine. Cette concurrence est susceptible d'exercer une pression à la baisse sur le prix de vente du poisson, qui, à son tour, doit être suffisamment élevé pour rendre rentable une entreprise RAS. Comme dans d'autres formes de production aquacole, atteindre des économies d'échelle plus élevées est généralement un moyen de réduire le coût de production et ainsi d'accéder aux marchés. Voici quelques exemples de réduction des coûts de production qui peuvent être atteints avec des installations plus importantes :
-
Réduction des coûts de transport sur les commandes en vrac d'aliments pour animaux, de produits chimiques et d'oxygène.
-
Réductions sur l'achat de plus grandes quantités d'équipement.
-
Accès aux tarifs d'électricité industrielle.
-
Automatisation des processus agricoles tels que la surveillance et le contrôle des procédés, l'alimentation, la récolte, l'abattage et la transformation.
-
Maximisation de l'utilisation de la main d'œuvre : la même main-d'œuvre était nécessaire pour s'occuper de 10 tonnes de poisson que celle nécessaire pour s'occuper de 100 tonnes de poisson ou plus.
À la suite de l'augmentation des économies d'échelle dans le secteur de l'aquaculture en enclos filets, de plus grandes ZR sont en cours d'élaboration à des échelles non considérées il y a dix ans. La dernière décennie a vu la construction d'installations avec des capacités de production de milliers de tonnes par an, et cette augmentation de la taille des installations RAS pose de nouveaux défis techniques, qui sont explorés dans la section suivante.
3.5.1 Hydrodynamique et transport par eau
Un contrôle adéquat des conditions hydrodynamiques dans les bassins à poissons est essentiel pour assurer une qualité uniforme de l'eau et un transport adéquat des matières solides vers les sorties des réservoirs (Masaló 2008 ; Oca et Masalo 2012). Les réservoirs qui ne sont pas capables de purger les métabolites assez rapidement auront moins de capacité de charge. Assurer une bonne performance hydrodynamique dans les bassins à poissons est un important sujet de recherche en génie aquacole qui a aidé l'industrie à concevoir et à exploiter des réservoirs de différentes formes et tailles. Toutefois, l'augmentation de la taille des réservoirs utilisés dans les RAS commerciaux pose de nouveaux défis techniques aux concepteurs et aux exploitants. Des recherches récentes sont en cours pour optimiser les caractéristiques hydrodynamiques des grands bassins octogonaux utilisés pour la production de saumoneaux (Gorle et al., 2018), en étudiant l'effet de la biomasse, de la géométrie et des structures d'entrée et de sortie des grands bassins utilisés dans les installations de saumoneaux norvégiennes. De même, Summerfelt et al. (2016) ont constaté une tendance à la baisse du taux de charge d'alimentation par unité de débit dans les réservoirs modernes comparativement aux réservoirs construits il y a plus d'une décennie dans les installations de saumoneaux norvégiennes. Une réduction de la charge d'alimentation entraîne une amélioration de la qualité de l'eau du réservoir, car l'eau en recirculation est traitée à un rythme plus rapide, ce qui empêche l'accumulation de métabolites et l'épuisement de l'oxygène dans le réservoir encore plus important que les réservoirs plus anciens qui fonctionnaient avec des charges d'alimentation plus élevées. Les travaux futurs fourniront probablement plus d'informations sur l'hydrodynamique des réservoirs de plus de 1000 msup3/sup en volume. D'autres exemples de chars énormes actuellement utilisés sont les réservoirs utilisés dans les systèmes RAS 2020 (Kruger, Danemark) ou le concept Niri (Niri, Norvège). L'adoption de ces nouveaux concepts utilisant des réservoirs plus grands jouera un rôle essentiel dans leur rentabilité, tant que des conditions hydrodynamiques adéquates seront atteintes.
3.5.2 Risque de perte de stock
Dans le RAS, les conditions d'élevage intensives peuvent entraîner une perte soudaine et catastrophique de poissons en cas de défaillance du système. Les sources de défaillance du système peuvent inclure la défaillance mécanique des systèmes de pompage et de l'équipement SAR, les pannes de courant, la perte de systèmes d'oxygénation et d'aération, l'accumulation et le rejet de sulfure d'hydrogène, les accidents de fonctionnement et plus encore. Ces risques et ces solutions doivent être identifiés et intégrés dans les procédures opérationnelles.
L'augmentation de la taille des opérations SAR peut également entraîner un risque accru de pertes financières en cas de perte catastrophique de poisson. D'autre part, les mesures d'atténuation des risques et la redondance des systèmes peuvent également augmenter le coût d'un projet de RAS et, par conséquent, les concepteurs et les ingénieurs doivent trouver un équilibre entre ces éléments.
Mis à part les reportages de l'industrie et des médias, peu de recherches universitaires ont été effectuées sur le risque des entreprises commerciales de RAS. Badiola et coll. (2012) ont enquêté sur les fermes de la RAS et analysé les principaux problèmes techniques, concluant que la mauvaise conception du système, les problèmes de qualité de l'eau et les problèmes mécaniques étaient les principaux éléments de risque affectant la viabilité du RAS.
3.5.3 Économie
Le débat sur la viabilité économique du RAS porte principalement sur les coûts élevés de démarrage des exploitations aquacoles en recirculation et sur le long délai avant que le poisson ne soit prêt à être commercialisé, ainsi que sur la perception que les exploitations de RAS ont des coûts d'exploitation élevés. De Ionno et coll. (2007) ont étudié la performance commerciale des exploitations agricoles RAS, concluant que la viabilité économique augmente avec l'ampleur de l'exploitation. Selon cette étude, les exploitations dont la capacité de production est inférieure à 100 tonnes par an ne sont que marginalement rentables dans le contexte australien où l'étude a eu lieu. Timmons et Ebeling (2010) justifient également de réaliser de grandes économies d'échelle (de l'ordre de grandeur de milliers de tonnes de production par an) qui permettent de réduire les coûts de production grâce à des projets d'intégration verticale tels que l'inclusion d'installations de transformation, d'écloseries ou d'aliments pour animaux moulins. Liu et al. (2016) ont étudié la performance économique d'une ferme RAS théorique d'une capacité de 3300 tonnes par an, comparativement à une ferme traditionnelle en enclos de même capacité. À cette échelle, l'opération RAS atteint des coûts de production similaires à ceux de l'exploitation en enclos net, mais l'investissement en capital plus élevé double la période de récupération, même lorsque le poisson de la ferme RAS est vendu à un prix plus élevé. À l'avenir, l'octroi de permis coûteux et rigoureux exigeant une bonne performance environnementale pourrait accroître la viabilité du RAS en tant qu'option concurrentielle pour la production du saumon atlantique.
3.5.4 Manipulation du poisson
Dans les fermes terrestres, la manutention du poisson est souvent nécessaire pour diverses raisons : séparer les poissons en classes de poids, réduire les densités d'ensemencement, transporter les poissons dans les départements de culture (c.-à-d. d'une pépinière à un service en croissance) ou récolter les poissons lorsqu'ils sont prêts à être commercialisés. Selon Lekang (2013), les poissons sont manipulés le plus efficacement avec des méthodes actives telles que les pompes à poisson et aussi avec des méthodes passives telles que l'utilisation de signaux visuels ou chimiques qui permettent aux poissons de se déplacer d'un endroit à l'autre.
Summerfeltet al. (2009) a étudié plusieurs moyens de fouler et de récolter des salmonidés dans de grands réservoirs circulaires à l'aide de drains doubles de type Cornell. Les stratégies comprenaient le surpeuplement des poissons à l'aide de sennes coulissantes, les foules de barreaux à clapets et l'élevage de poissons entre les bassins en profitant de leur réaction innée à l'évitement du dioxyde de carbone. Les techniques de récolte comprenaient l'extraction du poisson par l'orifice de décharge du flanc d'un réservoir à double drain de type Cornell ou l'utilisation d'un ascenseur aérien pour soulever le poisson surpeuplé jusqu'à une boîte d'assèchement. AquamaOF (Israël) utilise des voies de baignade et des réservoirs partageant un mur commun pour transférer passivement le poisson à travers la ferme, la récolte étant effectuée à l'aide d'un pescalator (pompe à vis Archimède) à l'extrémité d'une voie de baignade. Le concept RAS2020 de Kruger (Danemark) utilise des niveleuses et des foules installés en permanence dans un réservoir circulaire ou en forme de donuts pour déplacer et encombrer les poissons sans avoir besoin de pompes à poisson.
Malgré les développements continus sur ce sujet, la taille croissante des fermes de la RAS continuera de poser des défis aux concepteurs et aux exploitants quant à la façon de manipuler le poisson de façon sécuritaire, économique et sans stress. L'élargissement de la gamme des conceptions, des espèces en production et de l'intensité de l'exploitation des fermes de la SRA peut donner lieu à des technologies diverses et novatrices de transport et de récolte du poisson.
-
3.6 RAS et Aquaponie
Original publication · Publié pour la première fois sur FarmHub Learn · Aquaponics Food Production Systems
Les systèmes aquaponiques sont une branche de la technologie de recirculation de l'aquaculture dans laquelle les cultures végétales sont incluses soit pour diversifier la production d'une entreprise, fournir une capacité supplémentaire de filtration de l'eau, soit une combinaison des deux.
En tant que branche du RAS, les systèmes aquaponiques sont liés aux mêmes phénomènes physiques, chimiques et biologiques qui se produisent dans le RAS. Par conséquent, les mêmes principes fondamentaux de l'écologie de l'eau, de la mécanique des fluides, du transfert de gaz, de la dépuration de l'eau, etc. s'appliquent en termes plus ou moins égaux à l'aquaponie, à l'exception du contrôle de la qualité de l'eau, car les plantes et les poissons peuvent avoir des exigences spécifiques et différentes.
Les réalités économiques fondamentales du RAS et de l'aquaponie sont également liées. Ces deux technologies sont à forte intensité de capital et très techniques et sont affectées par les économies d'échelle, la conception appropriée des composants, la dépendance aux conditions du marché et l'expertise des opérateurs.
3.6.1 Bien-être
Dans les systèmes aquaponiques, l'absorption des nutriments devrait être maximisée pour une production saine de biomasse végétale, mais sans négliger les meilleures conditions de bien-être des poissons en termes de qualité de l'eau (Yildiz et al., 2017). Des mesures visant à réduire les risques d'introduction ou de propagation de maladies ou d'infections et à accroître la biosécurité en aquaponie sont également importantes. Les impacts possibles des substances allélochimiques, c'est-à-dire des substances chimiques rejetées par les plantes, devraient également être pris en compte. En outre, l'effet de la digestibilité du régime alimentaire, de la taille des particules de matières fécales et du taux de décantation sur la qualité de l'eau doit être soigneusement pris en considération Il existe encore un manque de connaissances sur la relation entre les niveaux appropriés de minéraux dont les plantes ont besoin et le métabolisme, la santé et le bien-être des poissons (Yildiz et al., 2017), ce qui nécessite des recherches plus poussées.
3.6.2 Diversité microbienne et contrôle
Comme mentionné précédemment dans le chapitre, l'aquaponie combine un système d'aquaculture en recirculation avec une unité hydroponique. L'une de ses caractéristiques les plus importantes est la dépendance à l'égard des bactéries et de leurs produits métaboliques. De plus, Sect. 3.2.6 .a discuté de l'importance des communautés microbiennes et de leur contrôle dans le SAR. Les bactéries servent de pont qui relie les excréments de poissons, à forte concentration d'ammonium, à l'engrais végétal, qui devrait être une combinaison de faible teneur en ammonium et de nitrate élevé (Somerville et al., 2014). Comme les systèmes aquaponiques peuvent avoir des sous-unités différentes, c'est-à-dire des réservoirs à poissons, des biofiltres, des filtres à tambour, des réservoirs de colons et des unités hydroponiques, chacune ayant des conceptions possibles différentes et des conditions optimales différentes, les communautés microbiennes de ces composants peuvent différer considérablement. Il s'agit là d'un sujet de recherche intéressant dans le but ultime d'améliorer les processus de gestion du système. Schmautz et al. (2017) ont tenté de caractériser la communauté microbienne dans différentes zones des systèmes aquaponiques. Ils ont conclu que les excréments de poissons contenaient une communauté distincte dominée par des bactéries du genre Cetobacterium, alors que les échantillons provenant de racines végétales, de biofiltre et de périphyton étaient plus semblables les uns aux autres, avec des communautés bactériennes plus diversifiées. Les échantillons de biofiltres contenaient un grand nombre de Nitrospira (3,9 % de la communauté totale) qui n'ont été trouvés qu'en faible nombre dans le périphyton ou les racines des plantes. Par contre, seuls de faibles pourcentages de Nitrosomonadales (0,64 %) et Nitrobacter (0,11 %) ont été trouvés dans les mêmes échantillons. Ce deuxième groupe d'organismes est couramment testé pour leur présence dans les systèmes aquaponiques, car ils sont principalement responsables de la nitrification (Rurangwa et Verdegem 2015 ; Zou et al. 2016) ; Nitrospira n'a été décrit que récemment comme un nitrifiant total (Daims et al. 2015), capable de convertir directement ammonium en nitrate dans le système. La domination de Nitrospira est donc une nouveauté dans de tels systèmes et pourrait être corrélée à une différence dans la configuration de base (Graber et al., 2014).
Schmautz et coll. (2017) ont également souligné que la présence accrue de Nitrospira ne correspond pas nécessairement à une activité plus importante de ces organismes dans le système, car ses activités métaboliques n'ont pas été mesurées. De plus, de nombreuses espèces de bactéries et de coliformes sont intrinsèquement présentes dans les biofiltres recirculants aquaponiques effectuant des transformations de matières organiques et de déchets de poisson. Cela implique la présence de nombreux micro-organismes qui peuvent être des agents pathogènes pour les plantes et les poissons, ainsi que pour les personnes. À cette fin, certains micro-organismes ont été considérés comme des indicateurs de sécurité pour les produits et la qualité de l'eau dans le système (Fox et al., 2012). Certains de ces indicateurs de sécurité sont Escherichia coli et Salmonella spp. Des recherches très nécessaires ont donc été menées récemment afin de déterminer l'innocuité microbienne des produits aquaponiques (Fox et al., 2012 ; Sirsat et Neal, 2013). Munguia-Fragozo et al. (2015) ont défini une orientation future pour l'analyse de l'activité microbienne en aquaponie, qui ont examiné les technologies Omic pour l'analyse de la communauté microbienne. Ils ont conclu que l'analyse de la métagénomique et de la métatranscriptomique sera cruciale dans les futures études de la diversité microbienne dans les biosystèmes aquaponiques.
-
D'une période de consolidation technologique à une nouvelle ère de mise en œuvre industrielle, la technologie RAS s'est considérablement développée au cours des deux dernières décennies. Au cours des dernières années, le nombre et l'ampleur des exploitations aquacoles en recirculation ont augmenté. Avec l'acceptation croissante de la technologie, des améliorations par rapport aux approches techniques traditionnelles, aux innovations et aux nouveaux défis techniques ne cessent d'émerger.
-
Aquaponics combine un système d'aquaculture en recirculation avec une unité hydroponique. Les RAS sont des systèmes de production aquatique complexes qui impliquent une gamme d'interactions physiques, chimiques et biologiques.
-
L'oxygène dissous (OD) est généralement le paramètre de qualité de l'eau le plus important dans les systèmes aquatiques intensifs. Cependant, l'ajout d'oxygène suffisant à l'eau d'élevage peut être obtenu relativement simplement et, par conséquent, le contrôle d'autres paramètres de l'eau devient plus difficile.
-
Des concentrations élevées de dioxyde de carbone dissous (COSub2/sub) ont un effet négatif sur la croissance des poissons. L'élimination du COsub2/sub de l'eau à des concentrations inférieures à 15 mg/L est difficile en raison de sa haute solubilité et de l'efficacité limitée de l'équipement de dégazage.
-
L'ammoniac a été traditionnellement traité dans les systèmes de recirculation avec des biofiltres nitrifiants. Certaines technologies émergentes sont à l'étude comme solutions de rechange à l'élimination de l'ammoniac.
-
Les biosolides présents dans les RAS proviennent d'aliments pour poissons, de matières fécales et de biofilms et constituent l'un des paramètres de qualité de l'eau les plus critiques et les plus difficiles à contrôler. Un système de traitement en plusieurs étapes où les solides de différentes tailles et éliminés par différents mécanismes, est l'approche la plus courante.
-
L'ozone, en tant qu'oxydant puissant, peut être utilisé dans le RAS pour éliminer les micro-organismes, les nitrites et les substances humiques. L'ozonation améliore la performance du filtre microécran et minimise l'accumulation de matière dissoute affectant la couleur de l'eau.
-
Les réacteurs de dénitrification sont des réacteurs biologiques fonctionnant généralement dans des conditions anaérobies et généralement dosés avec un certain type de source de carbone comme l'éthanol, le méthanol, le glucose et la mélasse. L'une des applications les plus notables des systèmes de dénitrification en aquaculture est le RAS « zéro échange ».
-
Dans les systèmes de production aquacole, les communautés microbiennes jouent un rôle important dans le recyclage des éléments nutritifs, la dégradation de la matière organique et le traitement et la lutte contre les maladies. L'idée d'utiliser de l'eau mature microbienne pour lutter contre les agents pathogènes opportunistes remet en question le rôle de la désinfection de l'eau dans les RAS.
-
Dans le RAS intensif, le bien-être animal est étroitement lié à la performance des systèmes. Le principal objectif de la recherche sur le bien-être des animaux dans le RAS était de construire et d'exploiter des systèmes qui maximisent la productivité et minimisent le stress et la mortalité.
-